Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
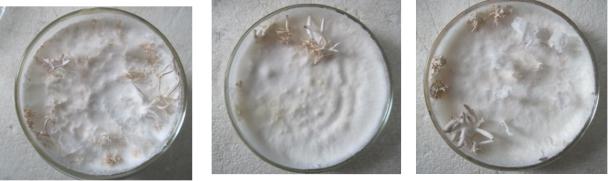
Развитие полиенрезистентных штаммов P. ostreatus происходило несколько иначе, чем описанного выше вида G. lucidum. Прорастание всех штаммов отмечалось в значительно более поздние сроки от момента инокуляции. Кроме того, морфологически отмечались две стратегии развития. Часть культур характеризовалась исключительно медленным ростом, колонии имели неровные края, радиальные круги и белесый оттенок мицелия; другие, составляющие большую часть, имели относительно более высокие темпы роста, насыщенный белый цвет (рис. 25). Воздушный мицелий, по сравнению с контролем, был слабо выражен у всех полиенрезистентных штаммов вешенки. Таким образом, получено пять устойчивых к действию нистатина штаммов P. ostreatus
(Pl-ун1, Plун2, Pl-ун3, Pl-ун4, Pl-ун5).
а) б) в)
Рисунок 25 – Морфология колоний различных штаммов
P. ostreatus: а) полиенчувствительный штамм ПН10 (тканевый изолят); б) полиенрезистентный штамм Pl-ун1; в) полиенрезистентный штамм Plун2
Эксперименты, проведенные с полиенчувствительными и полиенрезистентными штаммами P. ostreatus позволили обнаружить несколько иные, относительно G. lucidum, закономерности. Показатели содержания эргостерина у обычных, взятых из коллекции штаммов вешенки устричной, различались несущественно, и находились в среднем на уровне 0,409 мг%, что выше показателей, полученных для штаммов G. lucidum. Средние значения, рассчитанные для полиенрезистентных штаммов, в среднем, ниже, чем у обычных (полиенчувствительных), однако
130
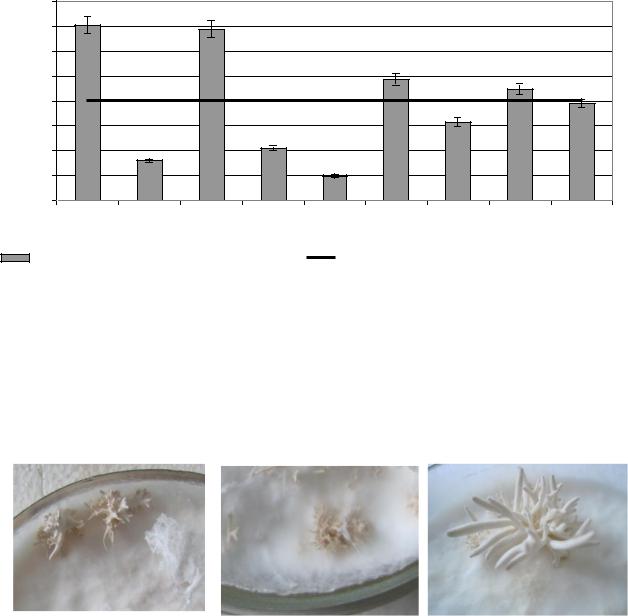
такие результаты не являются достоверными (Р>0,05). Действительно, среди полиенрезистентных штаммов P. ostreatus обнаружены как характеризующиеся очень высокими, так и пониженными, по сравнению с контрольными штаммами, показателями содержания эргостерина (табл. 11, рис. 26).
Таблица 11 – Показатели содержания эргостерина в мицелии различных штаммов P. ostreatus
Штамм |
Масса |
на- |
Содержание |
э |
% эргостерина |
Среднее, |
|
вески, мг |
|
гостерина, мг |
|
от сухой массы |
мг% |
Pl-ун1* |
2311,1±11,0 |
16,22±0,48 |
|
0,702±0,068 |
0,371 |
|
Pl-ун2* |
1012,6±14,9 |
1,63±0,03 |
|
0,160±0,015 |
|
|
Pl-ун3* |
2071,2±15,6 |
14,25±0,29 |
|
0,688±0,029 |
|
|
Pl-ун4* |
1016,1±10,1 |
2,14±0,08 |
|
0,210±0,043 |
|
|
Pl-ун5* |
1994,6±3,5 |
1,97±0,11 |
|
0,098±0,012 |
|
|
ПН-10 |
2178,1±12,3 |
10,62±0,85 |
|
0,487±0,099 |
0,409 |
|
PlО(K)-05 |
2463,7±22,0 |
7,75±0,11 |
|
0,315±0,076 |
|
|
PlО-I-09 |
2015,2±19,8 |
8,98±0,14 |
|
0,446±0,063 |
|
|
PlО-I-10 |
2018,9±25,1 |
7,86±0,22 |
|
0,389±0,084 |
|
|
*полиенрезистентные штаммы; прочие – полиенчувствительные
Полученные результаты свидетельствуют, что механизмы формирования резистентности к действию нистатина у штаммов P.ostreatus более разнообразны, чем у описанного выше вида, но также связаны с изменением продукции эргостерина. Впоследствии было установлено, что штаммы с повышенным содержанием эргостерина обладали наиболее выраженной склонностью к образованию примордиев, и, напротив, штаммы с пониженным его содержанием не обнаружили образования зачатков плодовых тел в обычные для вида сроки.
131
мг% |
0,8 |
|
|
0,7 |
|
|
|
, |
|
|
|
эргостерина |
0,6 |
|
|
0,5 |
|
|
|
0,4 |
|
|
|
|
|
|
|
Содержание |
0,3 |
|
|
0,2 |
|
|
|
0,1 |
|
|
|
|
|
|
|
|
0 |
|
|
|
Pl-ун1 Pl-ун2 Pl-ун3 Pl-ун4 |
Pl-ун5 |
ПН-10 PlО(K)-05 PlО-I-09 PlО-I-10 |
|
Содержание эргостерина в разных штаммах |
Среднее для полиенчувствительных штаммов |
|
Рисунок 26 – Содержание эргостерина в образцах мицелия раз- |
|||
|
ных штаммов P. ostreatus (р<0,05, планки погреш- |
||
|
ностей – ошибка средней) |
||
Это служит очередным подтверждением связи интенсивности синтеза эргостерина с процессами плодообразования у базидиомицетов (рис. 27).
а) |
б) |
в) |
Рисунок 27 |
– Примордии на мицелии штаммов |
P. ostreatus: |
а) полиенчувстви-тельный штамм ПН-10 (тканевый изолят); б) полиенрезистентный штамм Plун1; б) полиенрезистентный штамм Pl-ун2
Таким образом, изученные виды ксилотрофных базидиомицетов, являющиеся в свою очередь исключительно важными объектами биотехнологии, характеризуются разными стратегиями формирования устойчивости к экзогенному воздействиию поли-
132
енов. Установленные закономерности могут быть использованы при скрининге штаммов, перспективных продуцентов эргостерина, а также склонных к плодоношению в условиях культуры.
133
Глава 6. ИСПОЛЬЗОВАНИЕ КОМПЛЕКСНЫХ ИСТОЧНИКОВ ЦЕЛЛЮЛОЗЫ И ЛИГНИНА ПРИ КУЛЬТИВИРОВАНИИ ШТАММОВ КСИЛОТРОФНЫХ БАЗИДИОМИЦЕТОВ
6.1 Влияние различных по структуре комплексных источников целлюлозы и лигнина на рост и развитие мицелия ксилотрофных базидиомицетов
По мнению ряда авторов, лигнин, как компонент природного субстрата ксилотрофов, может влиять на морфогенез гриба в естественных условиях (Фенгел, 1988). Известно, что разнообразное сочетание ферментных комплексов у грибов, связано, в первую очередь, с экологическими особенностями последних, их трофической специализацией и является следствием длительной эволюции (Решетникова, 1997). В процессе микробиологического разложения субстратов, содержащих лигнин, образуются разнообразные соединения как фенольной, так и нефенольной природы, которые могут выполнять ростовые, индукторные, корригирующие и целый ряд прочих функций, влияющих на ход развития мицелия. Довольно сложно создать условия, приближенные к природным, в условиях культуры. Сведения, касающиеся значения разных форм лигнина в качестве трофического и регуляторного фактора для чистых культур, в настоящее время довольно ограничены. В грибоводстве широко используются твердые органические субстраты на основе опилок, однако, как показывает опыт, использование таких субстратов не всегда обеспечивает нормальное развитие культуры и ее высокую продуктивность. Частичным решением этих проблемы может стать модификация питательного субстрата внесением лигноцеллюлозных компонентов; дериватизация таких источников путем метанолиза. Подобная информация способна пролить свет на некоторые малоизученные, частные стороны развития культур дереворазрушающих грибов, что, безусловно, раскроет новые возможности использования последних в биотехнологии.
В ходе исследований нами проведено изучение особенностей развития мицелиальных культур базидиальных макромице- тов-ксилотрофов на питательных средах, содержащих одинаковое количество целлюлозы, но формы лигнина с разной степенью
134