Материал: Курс лекций техноген рад-дов в почве
3. Поступление радионуклидов в растения
3.1. Аэральное поступление радионуклидов в растения
Известно, что в растениях может накапливаться, не повреждая их и не снижая урожайность, такое количество радионуклидов, при котором растениеводческая продукция становится непригодной для использования в качестве продуктов питания человека. Радионуклиды в растения могут поступать через вегетативные органы — аэральный путь поступления и через корневую систему — корневой путь поступления. Аэральное поступление наиболее значимо при радиоактивном загрязнении воздушной среды сразу после радиационной аварии. При попадании радионуклидов в почву преобладает корневой путь поступления.
При аэральном загрязнении на наземные органы растений оседают радиоактивные аэрозоли, оплавленные силикатные и карбонатные частицы грунта, частицы топлива, высокорадиоактивные “горячие” частицы, входящие в состав “сухого” и “мокрого” выпадения. Осевшие на растения радиоактивные выпадения слабо закрепляются в наземных органах, потому что одновременно с осаждением радионуклидов происходят потери радиоактивности. Степень удержания радиоактивных выпадений растительностью оценивается по величине первичного удержания, которая выражается отношением количества радиоактивных частиц, осевших на растения, к общему количеству радиоактивных частиц, выпавших на данную площадь. Первичное удержание и последующие процессы потерь радиоактивности зависят от многих факторов, в том числе от размера частиц и вида выпадений, площади удерживающей поверхности и плотности растительного покрова, морфологии растений и типа травостоя, урожайности наземной массы, метеоусловий во время и после выпадения радиоактивных осадков и других факторов.
Максимальные потери радиоактивности происходят при ветреной и дождливой погоде. Мелкие частицы и водорастворимые формы закрепляются в 4-7 раз прочнее, чем крупные и твердые нерастворимые частицы. Потери радиоактивности растениями, обусловленные всеми факторами, кроме радиоактивного распада, называются полевыми потерями радиоактивности. Скорость удаления радиоактивных веществ с растительного покрова характеризует период полупотерь — это время, за которое смывается дождем и сдувается ветром 50% активности. Максимальные потери радиоактивности происходят в первые 2-3 суток, а за 7 суток она снижается на 70-90%. Потери фиксированных радионуклидов мало зависят от погодных условий и определяются свойствами радионуклидов и биологическими особенностями растений. Период полупотерь для слабозакрепленной фракции йода-131 составляет 14 суток, цезия-137 – 14 суток, для стронция-90 – 5 суток, а для прочнозакрепленных фракций этих радионуклидов – соответственно 27, 90 и 70 суток.
На поверхности листьев радионуклиды могут находиться в свободном или сорбированном состоянии. Сорбция зависит от температуры и влажности воздуха и листьев, морфологии листьев, солевого состава и кислотности осадков, вида радионуклида и его формы.
Основными механизмами аэрального поступления радионуклидов являются ионно-обменные реакции и диффузия. Водорастворимые формы поступают с водой через цитоплазму в клетки основной ткани, через стенки клеток и межклетники, через клетки, расположенные над поверхностью жилок, через устьица. Чем толще кутикула, тем слабее происходит диффузия и ионно-обменные реакции. Поступление через устьица усиливается на свету, когда они открываются для дыхания растений. На растительности естественных луговых ценозов радионуклиды задерживаются в нижней части растений и в верхнем слое дернины. Здесь происходит дополнительное поступление радионуклидов через основание стебля и через поверхностные корни, поэтому растительность естественных лугов загрязняется радионуклидами сильнее, чем растительность окультуренных кормовых угодий.
После проникновения в листья часть радионуклидов остается в листьях, а часть разносится по растению и концентрируется в других органах. Продвижение радионуклидов по растению зависит от физико-химических свойств радионуклидов и, в меньшей степени, от биологических особенностей растений. Наиболее активно продвигается по растению радиоцезий, являющийся аналогом калия, а стронций, рутений и церий концентрируются в листьях в небольших количествах, поэтому переход этих радионуклидов из листьев в генеративные органы в десятки раз меньше, чем цезия.
На Полесье 50% площади подвержено ветровой эрозии, в результате которой теряется до 3-5 т земли с 1 га за год. Здесь возможны пыльные бури, при которых дальность переноса радионуклидов возрастает. Ветровая эрозия более интенсивна на осушенных торфяниках и песчаных почвах при выращивании однолетних и пропашных культур. На эрозированных полях различия в загрязнении пахотного горизонта цезием-137 составляют 1,5–3 раза.
Водная эрозия почвы происходит в результате стока поверхностных вод в водные системы и бессточные понижения рельефа. Водная миграция радионуклидов осуществляется со стоком вод во время осадков, паводков, разливов рек, сезонного таяния снега, а также с грунтовыми водами. Миграция растворенных радионуклидов называется жидким стоком. Миграция взвесей илистых и глинистых частиц, содержащих радионуклиды в поглощенном состоянии, называется твердым стоком. Стоки радионуклидов в речные системы составляют несколько процентов в год от общего запаса их на площади водосбора. Твердый сток наиболее значим на легких пахотных землях и в местах с высокой скоростью потоков поверхностных вод, т.е. на склонах. Большую роль в миграции радионуклидов играет тип и увлажненность почвы водораздела. Радионуклиды в дерново-подзолистых супесчаных и песчаных почвах водоразделов имеют высокую подвижность, поэтому в стоке с этих почв концентрация радионуклидов высокая. Они выносятся в пойму, где их содержание в почве может быть в 2-3 раза выше, чем в почве водораздела. Водоразделы, сложенные черноземом, прочнее поглощают радионуклиды, поэтому стоки с них содержат мало радионуклидов, в результате чего в почвах поймы концентрация радионуклидов ниже, чем в почвах водораздела. Миграционная способность стронция-90 в 10 и более раз выше, чем цезия-137. Это связано с тем, что стронций находится в почве преимущественно в водорастворимой форме и в виде непрочных комплексов с органическим веществом. С поверхностными и грунтовыми водами радионуклиды выносятся в реки и мигрируют по течению рек до впадения в моря. В результате этого происходит очистка почвы водосбора и вторичное загрязнение водных систем радионуклидами.
На полях с неровным рельефом наблюдается смыв радионуклидов в пониженные участки, поэтому загрязнение почвы радионуклидами на таких полях неравномерное и изменяется в 1,5-3 раза. На склонах рельефа водная эрозия вызывает вторичное загрязнение почвы радионуклидами в результате смыва их в среднюю и нижнюю часть склона. Смыв радионуклидов происходит, в основном, с твердыми взвесями. Интенсивность смыва на склонах с дерниной в 100 раз ниже, чем на голых склонах. При выращивании на склонах пропашных культур смыв радионуклидов возрастает.
Анализ дождевого и талого стока показал, что смыв радионуклидов с талым стоком на порядок меньше, чем смыв с дождевым, что связано с температурным режимом почвы.
Газообразные техногенные радионуклиды тритий (3Н), углерод (14С), и изотопы йода (129I, 131I) мигрируют в атмосфере в различных состояниях. Тритий мигрирует в виде свободного газа или в составе тритиевой воды, углерод мигрирует в виде двуокиси углерода, а йод – в виде аэрозолей, паров молекулярного йода и сложных органических и не органических соединений. Они переносятся из почвы, воды и растений в атмосферу. Из атмосферы через вегетативные органы растений эти радионуклиды поступают в растения, а также с атмосферными осадками оседают на землю и включаются в миграционный процесс.
Радионуклиды, осевшие на почву в составе различных выпадений, могут подниматься ветром или дождем и оседать на растительность. Это явление называется вторичным радиоактивным загрязнением растений, интенсивность которого оценивается по величине коэффициента ветрового подъема. Его величина зависит, в основном, от свойств атмосферы (плотности, турбулентности, температуры, давления, влажности, скорости движения воздуха над поверхностью почвы), от свойств почвы (гранулометрического и минералогического состава, влажности, плотности, структуры), от хозяйственной деятельности человека (обработка почвы, выпас скота, автомобильное движение), а также от рельефа и вида растительности. Вторичное загрязнение растительности происходит при пыльных бурях, при горении торфяников, лесов, лугов и сжигании послеуборочных остатков на полях сельскохозяйственных угодий.
Кроме ветрового переноса, причиной вторичного загрязнения может быть забрызгивание грязью нижних частей растений во время выпадения сильных дождей. Установлено, что максимальная высота подъема частиц от земли может достигать 40 см, поэтому такое загрязнение наиболее значимо для низкорослых видов растений. Вклад вторичного загрязнения в общее загрязнение может составлять для зерновых культур до 10-12%, а для овощных – 30% и более. Значительное вторичное загрязнение товарной части овощных и листовых культур радионуклидами происходит в период образования и роста плодов и листьев, злаковых культур – в фазах колошения, цветения и молочной спелости. Практически не загрязняется зерно бобовых и крестоцветных культур, кукурузы, так как оно защищено створками бобов, стручков и листьями, а также клубни и корнеплоды, защищенные почвой.
3.2. Корневое поступление радионуклидов в растения
Механизм усвоения радионуклидов корневой системой растений подобен усвоению необходимых элементов питания. Основными механизмами усвоения радионуклидов корнями являются ионно-обменные реакции и диффузия. Главное отличие состоит в том, что радионуклиды находятся в почве в предельно низких концентрациях, а элементы питания – в более высоких концентрациях. Основное количество радионуклидов извлекается корнями из почвенного раствора, а также из почвенно-поглощающего комплекса, с частицами которого тесно контактируют корневые волоски, или зона поглощения корня. Поглощение ионов корнями и продвижение их вверх по растению происходит в три стадии. В первой стадии происходит адсорбция ионов мембранами поглощающих клеток корней. Адсорбция носит обменный и необменный характер. Обменными ионами растений являются Н+ и СО32-, которые образуются при диссоциации углекислоты, выделяемой при дыхании. Ион Н+ из цитоплазмы клеток проходит с корневыми выделениями через мембраны клеток и вступает в обмен преимущественно с одновалентными ионами почвенного раствора и частиц, где также могут находиться радионуклиды. В результате этого обмена ионы радионуклидов поступают в цитоплазму клеток корневых волосков. Механизм поступления цезия-137 и стронция-90 в корневую систему растений изучен недостаточно полно. На первом этапе усвоения радионуклидов важную роль играет катионно-обменная емкость корней, т.е. содержание обменных катионов, которая зависит от содержания в мембране клеток корня пектина и веществ белковой природы. Установлено, что стенки клеток несут отрицательный заряд, поэтому на них оседают положительно заряженные ионы почвенного раствора. Виды растений с высокой катионно-обменной емкостью корней поглощают из почвенного раствора больше двухвалентных катионов, например, кальция, чем катионов одновалентных элементов. Катионно–обменная емкость корней у злаковых культур составляет 10–23 мг-экв./100 г сухих корней, у бобовых — 40–60 мг-экв./100 г сухих корней. Этим можно объяснить повышенную способность бобовых культур к накоплению кальция и его химического аналога стронция. Существует прямая связь между скоростью поступления цезия-137 и величиной катионно-обменной емкости корней. Например, при добавлении в опытный раствор, содержащий цезий-137 и стронций-90, ионов калия и кальция катионно-обменная емкость стенок клеток может повышаться в результате ее насыщения этими катионами, поэтому адсорбция ионов цезия и стронция на клеточные стенки практически не происходит. При высокой концентрации калия в растворе ионы калия поступают преимущественно по калиевым каналам, поэтому поступление цезия значительно снижается, т.е. происходит дискриминация цезия относительно калия. У всех культур дефицит обменного калия в почве приводит к увеличению коэффициента накопления цезия. При поступлении стронция практически отсутствует дискриминация кальцием, однако при дефиците кальция поступление стронция значительно увеличивается. Известно, что дефицит ионов калия в растворе повышает также поступление стронция в корни. В корни растений цезия поступает больше, чем стронция. Установлено, что ионы стабильных и радиоактивных элементов могут вступать в реакцию взаимодействия с компонентами мембран с образованием различных соединений. В связанном состоянии в составе этих соединений, которые называются веществами–переносчиками, ионы поступают в цитоплазму, где комплекс распадается с образованием иона и вещества-переносчика. Ион мигрирует дальше по растению и включается в обмен веществ. Вещество-переносчик вновь возвращается к мембране и присоединяет новый ион. Во второй стадии происходит проникновение ионов в проводящие ткани, т.е. трахеиды и сосуды ксилемы. В третьей стадии происходит восходящее движение ионов по сосудам ксилемы с ксилемным соком в клетки и ткани наземных органов. В состав ксилемного сока входит вода, органические и неорганические вещества, элементы питания и другие соединения. Ксилемный сок перемещается по растению за счет корневого давления и транспирации. При транспирации вода испаряется, а все вещества, в том числе и радионуклиды, остаются в клетках и тканях наземных органов. Скорость продвижения радионуклидов по растению зависит от интенсивности транспирации. В жаркую и сухую погоду транспирация усиливается, поэтому может повышаться содержание радионуклидов в наземной части растений.
Ионный обмен между клеточной оболочкой корневого волоска и почвенными частицами происходит труднее, чем обмен ионами из почвенного раствора. При низкой концентрации радионуклидов в почве они поступают в растения в результате ионно-обменных реакций. При высокой концентрации радионуклидов в почве основным механизмом поступления является диффузия, поэтому поступление радионуклидов может значительно возрастать. Диффузия осуществляется в результате пассивного переноса радионуклидов, т.е. путем переноса по градиенту концентрации.
Цезий, как одновалентный элемент, из корней переносится в наземные органы быстрее, чем стронций, который может связываться в корнях. Радионуклиды распределяются в наземных органах растений неравномерно. Например, в созревших растениях фасоли Sr-90 распределяется следующим образом: в листьях – 53-68%, стеблях – 15-28%, створках бобов – 12-25% и зерне – 7-14%.
Для оценки поступления радионуклидов из почвы в растения используют различные показатели. Наиболее часто используются коэффициенты перехода (Кп). Коэффициент перехода (почвенный коэффициент пропорциональности) – это отношение радионуклида в растительной массе (Бк/кг или нКи/кг) к плотности поверхностного загрязнения почвы (кБк/м2 или Ки/км2), который показывает содержание радионуклида в одном килограмме урожая сельскохозяйственных культур в зависимости от агрохимических показателей почв при плотности загрязнения почвы 1 кБк/м2 или 1Ки/км2. Коэффициенты перехода дифференцируются в зависимости от гранулометрического состава почв, содержание обменного калия и реакции почвенного раствора. Кроме этого, иногда используют коэффициент накопления (Кн) и коэффициент биологического поглощения (КБП). Кн – это отношение содержания радионуклида в растительной массе к содержанию радионуклида в почве. Коэффициент накопления различными культурами Sr-90 изменяется от 0,02 до 12, Сs-137 – от 0,02 до 1,1. Стронций-90 в 2-6 раз интенсивнее поглощается бобовыми культурами, чем злаковыми. Кн цезия-137, как правило, выше в зернобобовых культурах по сравнению со злаковыми. Коэффициенты накопления рутения-106, церия-144 по видам растений изменяются более чем в 100 раз, кобальта-60 – до 19 раз, а цинка-65, марганца-54 и кадмия-115 – до 2-7 раз. Кн тяжелых естественных и трансурановых радионуклидов очень низкие (n·10-2 – 10-10) и изменяются в зависимости от вида растений в 10-100 раз. КБП показывает отношение концентрации радионуклида в золе растений к концентрации радионуклида в почве.
Скорость миграции радионуклидов в цепи почва-растение зависит от содержания их изотопных и неизотопных носителей. Концентрация неизотопных носителей в почве значительно выше, чем изотопных. Например, концентрация стабильного изотопного носителя стронция-88 для стронция-90 составляет 2-3·10-3%, а для неизотопного носителя – кальция-40 – 14%.
Для оценки переноса радиоактивного элемента относительно его стабильного носителя в радиоэкологических цепях используют коэффициент дискриминации, который показывает изменение соотношения радионуклида и его химического аналога при миграции по биологическим цепям и определяется по формуле:
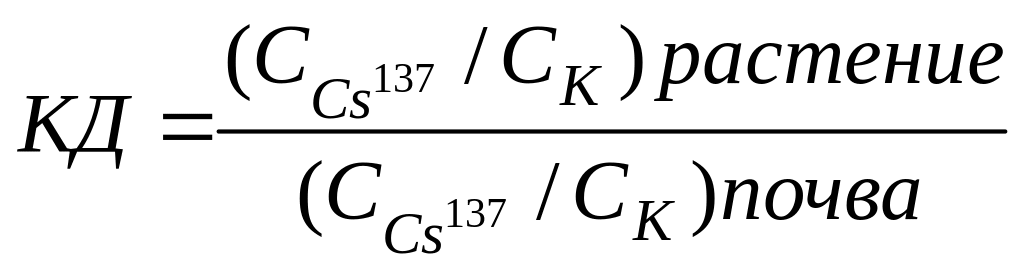 ,
где С – концентрация цезия-137 или калия в почве и растении.
Дискриминация цезия по отношению к калию наиболее значима в цепи почва-растение, дискриминация стронция по отношению к кальцию наиболее значима в цепи корм-животное.