Материал: Литусов Н.В. Частная вирусология
176
2.2. Герпесвирусы
Герпесвирусы представляют собой большую группу крупных вирусов, вызывающих у человека герпесвирусную инфекцию. Герпесвирусная инфекция является самой распространенной вирусной инфекцией человека. Проявления герпесвирусной инфекции многообразны - от локального лабиального герпеса (губной лихорадки) до генерализованных форм, врожденных уродств и злокачественных опухолей; от острых заболеваний до латентных инфекций. Герпесвирусная инфекция протекает как в виде спорадических случаев, так и в виде эпидемических вспышек. В организме человека отмечается длительная, часто пожизненная персистенция герпесвирусов, создающая постоянную угрозу рецидивов. Получив герпесвирусы в детстве или даже в утробе матери, почти каждый человек остается носителем этих вирусов на всю жизнь.
Таксономическое положение. Герпесвирусы относятся к порядку
Herpesvirales семейству Herpesviridae. Семейство Herpesviridae включает более 80
вирусов, поражающих человека и животных. Название семейства происходит от греческого слова herpes – опоясывающий, ползучий. Это связано с тем, что при герпетических поражениях слизистых оболочек и кожи формируются везикулы, которые лопаются с образованием расползающихся эрозий. Семейство Herpesviridae объединяет 3 подсемейства.
Подсемейство Alphaherpesvirinae включает следующие рода патогенных для человека вирусов:
-род Simplexvirus включает вирус простого герпеса типа 1 (Human alphaherpesvirus 1 или Herpes simplex virus 1, HHV-1) и вирус простого герпеса типа 2 (Human alphaherpesvirus 2 или Herpes simplex virus 2, HHV-2);
-род Varicellovirus включает вирус ветряной оспы - опоясывающего герпеса (опоясывающего лишая) или герпесвирус человека типа 3 (Human alphaherpesvirus 3, или Human herpesvirus 3, или Varicella-zoster virus, HHV-3).
Вирусы этого подсемейства характеризуются быстрой репликацией и цитопатическим действием на культуры клеток. Репродукция альфагерпесвирусов возможна в различных типах клеток (в эпителиальных клетках, фибробластах человека и животных). Альфагерпесвирусы способны к персистенции в нервных ганглиях, обусловливая латентную инфекцию.
Подсемейство Betaherpesvirinae включает следующие рода патогенных для человека герпесвирусов:
-род Cytomegalovirus включает цитомегаловирус или герпесвирус человека типа 5 (Human betaherpesvirus 5 или Human cytomegalovirus, HHV-5);
-род Roseolovirus, представителями которого являются герпесвирусы человека 6 и 7 (Human betaherpesvirus 6А, Human betaherpesvirus 6В и Human betaherpesvirus 7, HHV-6, HHV-7).
Вирусы подсемейства Betaherpesvirinae характеризуются медленным ростом
вразличных видах клеток (клетках эпителия слюнных желез, почек, лимфоцитах), которые при этом увеличиваются в размерах (цитомегалия). Вызванная ими инфекция может принимать генерализованную или латентную форму.
Подсемейство Gammaherpesvirinae включает следующие рода патогенных для человека герпесвирусов:
177
- род Lymphocryptovirus, включающий вирус Эпштейна-Барр или
герпесвирус человека типа 4 (Human gammaherpesvirus 4 или Epstein-Barr virus, HHV-4);
- род Rhadinovirus, включающий герпесвирус человека типа 8 (Human gammaherpesvirus 8 или герпесвирус, ассоциированный с саркомой Капоши, HHV- 8).
Вирусы этого подсемейства характеризуются тропностью к лимфоидным клеткам (Т- и В-лимфоцитам), в которых они способны длительно персистировать, вызывая лимфопролиферативное действие и развитие лимфом и сарком.
Морфология. Герпесвирусы представляют собой крупные сферические оболочечные ДНК-содержащие вирусы диаметром 150-200 нм. Вирион герпесвирусов состоит из генома, капсида, тегумента и суперкапсида.
Геном герпесвирусов представлен двухнитевой линейной молекулой ДНК, содержащей два ковалентно связанных между собой фрагмента (короткий S- фрагмент и длинный L-фрагмент). Геном герпесвирусов детерминирует синтез большого количества белков (свыше 200), причем часть из них является неструктурными (участвуют в репродукции вируса), а другая часть входит в состав вирионов (структурные белки). Геном герпесвирусов имеет вид тороида: молекула ДНК закручена вокруг волокнистого ядра, имеющего форму обруча.
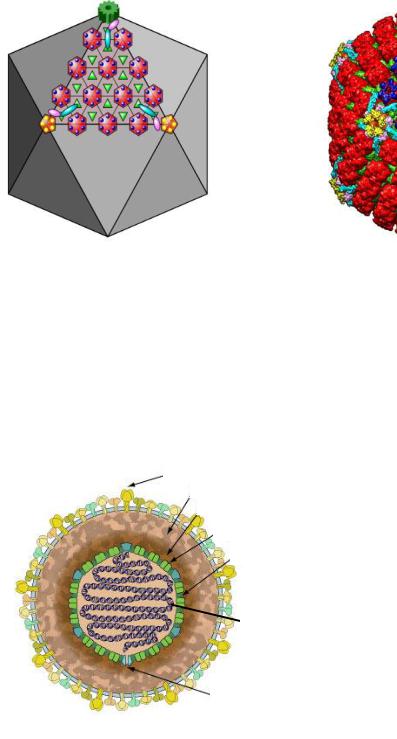
Геном покрыт капсидом, образуя нуклеокапсид (ядро, кор) кубической симметрии. Капсид представляет собой икосаэдрическую (двадцатигранную) структуру. Капсид содержит 162 капсомера, в том числе 150 шестиугольных капсомеров (гексамеров) и 12 пятиугольных капсомеров (пентамеров), сформированных из основного капсидного белка (major capsid protein). Каждый капсомер имеет форму удлиненной полой призмы. Капсомеры связаны с гетеротримерами, называемыми триплексами. Эти триплексы образованы одной молекулой триплексного протеина 1 (TRX1) и двумя молекулами триплексного протеина 2 (TRX2). Триплексные белки участвуют в транспорте ДНК в ядро клетки.
Вершинный переход (портал) представляет собой белковую структуру, предназначенную для входа вирусной ДНК в капсид и выхода из него.
Структура капсида герпесвирусов представлена на рисунке 182.
Снаружи вирион покрыт наружной оболочкой (суперкапсидом). Суперкапсидная оболочка герпесвирусов представляет собой липидный бислой с гликопротеиновыми шипами. Суперкапсид образован фрагментами ядерной и цитоплазматической мембран инфицированной клетки. Количество интегрированных в суперкапсид гликопротеинов у разных видов герпесвирусов различное.
178
 Портал
 Триплекс
 Гексамеры
 Пентамеры
Рисунок 182 – Структура капсида герпесвирусов. Заимствовано из Интернетресурсов.
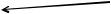
Между капсидом и суперкапсидом располагается покровная оболочка или тегумент (лат. tegumentum - покрытие). Тегумент содержит белки и ферменты, необходимые для репликации вирусного генома в инфицированной клетке. Выделяют два слоя тегумента: внутренний и внешний.
Строение вириона герпесвирусов представлено на рисунке 183.
Протеин оболочки
Внешний тегумент Внутренний тегумент
Капсид
Триплекс
ДНК
Вершинный переход
Рисунок 183 – Строение вириона герпесвирусов. Заимствовано и адаптировано с сайта ViralZone.
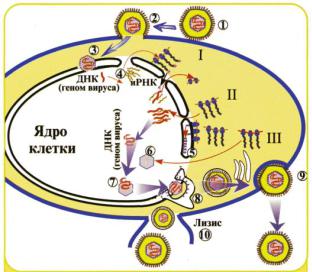
Жизненный цикл герпесвирусов. Проникновение герпесвируса внутрь клетки начинается с прикрепления вирусных суперкапсидных шипов (гликопротеинов) к клеточным рецепторам. Затем происходит слияние суперкапсида с клеточной мембраной. В цитоплазму клетки попадает нуклеокапсид, покрытый тегументом. В последующем нуклеокапсид освобождается от тегумента, и вирусная ДНК доставляется в ядро клетки. В ядре зараженной клетки происходит синтез ДНК дочерних вирионов с участием вирусной ДНК-зависимой ДНКполимеразы и иРНК с помощью клеточной полимеразы. Образовавшаяся иРНК
179
выходит в цитоплазму клетки, где синтезируются вирусные белки, часть из которых (капсидные белки) затем мигрирует в ядро. Внутри ядра незрелые капсиды заполняются дочерними молекулами ДНК, формируя нуклеокапсиды. Сборка вирусных частиц осуществляется на внутренней поверхности ядерной мембраны. Новое поколение вирионов (до 105 вирусных частиц) появляется в ядре клетки уже через 6 часов после заражения. Дочерние вирионы выходят из ядра клетки путем почкования через модифицированные мембраны ядерной оболочки и транспортируются к плазматической мембране клетки, в которую предварительно включаются белки суперкапсида. Таким образом, суперкапсид образуется из модифицированных фрагментов ядерной и цитоплазматической мембран. Выход дочерних вирионов из клетки происходит путем лизиса зараженной клетки или экзоцитоза. Жизненный цикл герпесвирусов представлен на рисунке 184.
Рисунок 184 – Схема репродукции герпесвируса (Воробьев А.А., Быков А.С., 2003). 1 – прикрепление вириона к рецепторам клетки; 2 – слияние оболочки вириона с клеточной мембраной; 3 – освобождение нуклеокапсида и его транспортировка в ядро клетки; 4 – транскрипция части вирусного генома с помощью клеточной ДНКзависимой РНК-полимеразы, образование иРНК, ее проникновение в цитоплазму клетки и синтез белков (I – ранние альфа-белки, II – ранние бета-белки, III – поздние гамма-белки); 5 – диффузное прилегание гликопротеинов к ядерной оболочке; 6 – формирование капсида; 7 – заполнение капсида вирусной ДНК; 8 – почкование нуклеокапсида через модифицированные мембраны ядерной оболочки; 9 – выход вирионов из клетки путем экзоцитоза; 10 – выход вирионов при лизисе клетки.
При экзоцитозе многие вирионы без завершения почкования переходят в соседние клетки, обусловливая очередной цикл репродукции вирусов. В результате такого механизма формируются многоядерные клетки (симпласты) с внутриядерными включениями. Симпласты являются нежизнеспособными образованиями.
Резистентность. Герпесвирусы термолабильны: они инактивируются при 52ОС в течение 30 минут, при 37ОС – в течение 10 часов. Герпесвирусы способны длительно сохраняться при низких температурах, особенно при температуре минус 70ОС. Они быстро инактивируются УФ лучами, спиртом, детергентами.
180
2.2.1. Вирусы простого герпеса
Вирусы простого герпеса 1 и 2 типов (Human alphaherpesvirus 1 и Human alphaherpesvirus 2) вызывают герпетическую инфекцию или простой герпес (herpes simplex), который характеризуется везикулезными высыпаниями на коже и слизистых оболочках ротовой полости, половых органов, глаз и возможным поражением ЦНС и внутренних органов. Герпесвирусная инфекция характеризуется пожизненным носительством вируса (персистенцией) и периодическими рецидивами болезни.
Оба типа вирусов могут вызывать поражения различной локализации. Однако вирус простого герпеса 1 типа (ВПГ-1) чаще поражает слизистые оболочки ротовой полости и глотки (лабиальный герпес, губная лихорадка), а вирус простого герпеса 2 типа (ВПГ-2) чаще поражает слизистые оболочки половых органов (генитальный герпес).
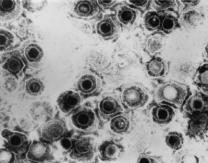
Особенности строения вирусов простого герпеса. Вирусы простого герпеса имеют структуру, характерную для других герпесвирусов (рисунок 185).
Рисунок 185 - Электронная микрофотография вируса простого герпеса. Заимствовано из Интернет-ресурсов.
На поверхности вириона располагаются гликопротеиновые шипы gA, gB, gC, gD и gF. Функция этих гликопротеинов различная: одни из них участвуют в слиянии вирионов с клеточной мембраной, другие обеспечивают уклонение от иммунных факторов организма, маскируя вирус и вирусинфицированные клетки. Основными иммуногенами являются гликопротеины gB, gC и gD, индуцирующие образование вируснейтрализующих антител.
Эпидемиология простого герпеса. Вирусы простого герпеса вызывают поражения практически у каждого человека. Инфицирование может произойти как в детские годы, так и в зрелом возрасте. Источником инфекции является инфицированный человек (больной или вирусоноситель). Основные механизмы передачи инфекции – контактный и вертикальный. Реже возможна реализация аэрогенного механизма воздушно-капельным путем. Основным путем передачи ВПГ-1 является непосредственный контакт (например, при поцелуях), а основным путем инфицирования ВПГ-2 является половой. ВПГ-1 обычно проникает через эпителий слизистой оболочки ротовой полости и носоглотки, а ВПГ-2 – через эпителий половых органов. Однако известны случаи генитальной инфекции, вызванной ВПГ-1, после орального полового акта. Возможно перинатальное