Материал: Принципы и основные методы генетической инженерии. (110
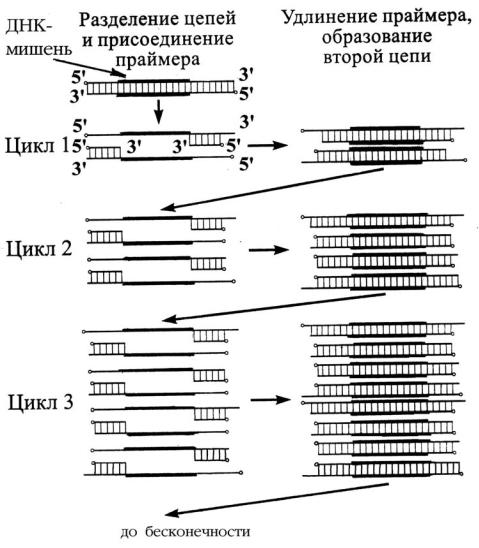
Рис. 9. Схема полимеразной цепной реакции
Раствор с полученными копиями ДНК снова подогревают для начала нового цикла амплификации, при котором только что синтезированные фрагменты ДНК (ампликоны) служат матрицей для синтеза новых цепей. То есть в каждом цикле число амплифицируемых фрагментов ДНК удваивается. Общее их количество может быть вычислено по формуле 2n, где n – число циклов амплификации. Поэтому, даже если в исходном растворе первоначально находилась только одна двухцепочечная молекула ДНК, то за 30–40 циклов амплификации синтезируется около 1 млрд (108) копий фрагментов (ампликонов), что по времени занимает 3–4 ч. То есть используя очень небольшое, следовое количество матричной ДНК (несколько нанограммов), можно получить миллионы копий необходимой ДНК, что делает возможным визуальный учет результатов после гель-электрофореза и не требует гибридизации с радиоактивным зондом.
26
4.2. Визуализация и учет результатов реакции
После окончания ПЦР для учета ее результатов используют агарозный гель-электрофорез ДНК. Готовят пластину агарозного геля, представляющего собой застывшую после расплавления в электрофорезном буфере агарозу в концентрации 1,5–2,5 %, со специальными лунками, в которые вносят продукты амплификации. При электрофорезе скорость миграции ДНК через агарозный гель определяется пятью главными параметрами.
Размер молекул ДНК. Молекулы линейной двуцепочечной ДНК перемещаются в геле предположительно одним концом вперед со скоростью, обратно пропорциональной десятичному логарифму их молекулярных масс.
Концентрация агарозы. Фрагменты ДНК данного размера перемещаются в геле, содержащем разные концентрации агарозы, с разными скоростями. Чем больше концентрация агарозы, тем выше сопротивление, действующее на ДНК со стороны геля и, следовательно, меньше путь, который пройдет в нем нуклеиновая кислота. Таким образом, применяя гели разных концентраций, можно разделить большой набор различающихся по размеру фрагментов ДНК.
Конформация ДНК. ДНК, имеющие одинаковую молекулярную массу, но разные конформации (линейная, кольцевая и т.д.), движутся с разными скоростями.
Напряженность электрического поля. При низких значениях напря-
женности скорость перемещения фрагментов линейной ДНК пропорциональна величине напряженности электрического поля. Однако с увеличением напряженности электрического поля подвижность фрагментов ДНК с высокой молекулярной массой возрастает. А следовательно, эффективность разделения ДНК снижается. Максимальное разделение фрагментов происходит при значениях напряженности, не превышающих 5 В/см.
Температура. Обычно электрофорез в агарозных гелях ведут при комнатной температуре. Однако гели, содержащие менее 0,5 % агарозы, очень мягкие, поэтому с ними лучше работать при 4 0С.
При прочих равных условиях расстояние в геле, пройденное более длинной молекулой ДНК, будет меньше, чем путь более короткой ДНК. Визуализация результатов ПЦР основана на принципе этого метода: в ходе амплификации образуется огромное количество (миллионы, миллиарды) фрагментов ДНК одинаковой длины. Следовательно, в электрическом поле они пройдут одинаковый путь и выстроятся в одну полосу.
Наиболее удобный метод визуализации ДНК в агарозных гелях – окрашивание ее флюоресцирующим красителем бромистым этидием, который обычно добавляют непосредственно в гель. Молекула этого вещества содержит плоскую группу, которая интеркалирует между соседними основаниями ДНК. В результате такой интеркаляции в непосредственной близости от оснований краситель связывается с ДНК, что сопровождается увеличе-
27
нием интенсивности флюоресценции. УФ-излучение, поглощаемое ДНК в области 260 нм и передаваемое на краситель (или же излучение, поглощаемое самим красителем при длинах волн 300 и 360 нм), испускается затем в красно-оранжевой области видимого спектра (590 нм).
После окончания электрофореза, продолжающегося от 10 мин до 1 ч гелевую пластину помещают на фильтр трансиллюминатора, излучающий свет в УФ-диапазоне. В случае успешно прошедшей ПЦР на геле видны полосы продуктов амплификации. Яркость полос может быть различной. Поэтому часто в ПЦР-лабораториях принято оценивать результат по трех-, четырехили пятибальной системе. Если же амплификация в силу каких-либо причин не произошла, флюоресцирующие полосы на геле отсутствуют.
4.3. Полимеразная цепная реакция в реальном времени
Наиболее современный метод детекции основан на накоплении в результате амплификации флюоресцентного продукта. Как правило, флюоресцентно меченный зонд добавляется к смеси нуклеотидов или используются флюоресцентные производные нуклеотидтрифосфатов. Накопление длинноцепочечных продуктов амплификации приводит к интеркаляции зондов и росту интенсивности флюоресценции. Амплификатор оснащается системой детекции флюореценции и позволяет отслеживать ее изменение при каждом цикле амплификации. Специальное программное обеспечение позволяет отслеживать, на каком цикле достигается некий контрольный уровень флюореценции, и рассчитывать количество исходных копий гена в пробе. Данный метод широко используется для количественного определения концентрации мРНК для различных генов.
5. ОБЛАСТИ ПРИМЕНЕНИЯ И ПРИМЕРЫ ИСПОЛЬЗОВАНИЯ ПЦР
5.1. Диагностические технологии на базе ПЦР
Метод ПЦР вряд ли мог получить столь широкое распространение, если бы не его уникальная чувствительность, позволяющая найти всего одну определенную молекулу ДНК из миллионов других. На этой сверхчувствительности основаны главные диагностические технологии ПЦР. ПЦР позволяет амплифицировать любые интересующие участки генома (длиной до 4 тыс. пн) с использованием специфичных или произвольных (случайных) праймеров. ПЦР-маркеры различаются длиной амплифицированной последовательности. Для определения размера полученных ПЦР-фрагментов (ПЦР-продуктов) их разделяют с помощью гель-электрофореза.
О полиморфизме ДНК организмов судят по присутствию или отсутствию полосы в каждом паттерне (рисунке расположения полос) при элек-
28
трофоретическом разделении фрагментов ДНК, их окраске и фотографировании в УФ свете. Такие различия в паттерне могут быть связаны с делециями или инсерциями в амплифицируемом фрагменте.
Благодаря большой информативности и экономичности, возможности достаточно быстрого изучения многочисленных выборок и локусов (100–1000 локусов против 10–20 локусов аллозимов) метод ПЦР-анализа с применением различных молекулярных ДНК-маркеров в настоящее время широко используются в генетических исследованиях. Метод ПЦР лежит в основе картирования различных геномов, ДНК-идентификации личности, установления родства людей, в судебной медицине (поскольку позволяет проводить генетическую «дактилоскопию» по одной единственной клетке, диагностики наследственных (выявление мутантных генов), а также инфекционных заболеваний бактериальной и вирусной природы (обнаружение генетического материала патогенных микроорганизмов в клинических образцах).
Например, данный метод используется для диагностики бессимптомного носительства возбудителей инфекционного заболевания – вируса иммунодефицита человека (ВИЧ), которые в латентной стадии инфекции могут присутствовать в организме человека лишь в небольшом числе копий. Другой пример: С.А. Булатом (одним из первых применивших в нашей стране метод ПЦР для идентификации грибов и анализа их генетической изменчивости) были сконструированы геноспецифичные праймеры (обозначенные как Cs5), амплифицирующие только фрагменты ДНК, специфичные для патогенного гриба ячменя и пшеницы Cochliobolus sativus, что позволяет выявлять устойчивые к данному грибу растения (рис. 10).
В зависимости от природы праймера (специфичный, полуспецифичный, произвольный = случайный) и способа идентификации продуктов амплификации различают несколько методов и маркеров ПЦР-анализа. Остановимся на молекулярных маркерах, которые наиболее широко используются для выявления генетического полиморфизма и картирования генома животных, человека, растений и микроорганизмов.
К числу таких маркеров, основанных на ПЦР, относятся RAPDмаркеры и микросателлиты.
RAPD-маркеры – random amplified polymorphic DNA (RAPD-PCR –
случайно амплифицированная полиморфная ДНК).
При необходимости амплификации гена или фрагмента ДНК с известной нуклеотидной последовательностью используют два геноспецифичных праймера, фланкирующих (ограничивающих) нужную последовательность. В этом случае прямой праймер соответствует по нуклеотидной последовательности началу нужного гена, а обратный комплементарен второй цепи в конце этого гена. Таким образом можно исследовать полиморфизм конкретных локусов, для которых хотя бы частично известна нуклеотидная последовательность.
29
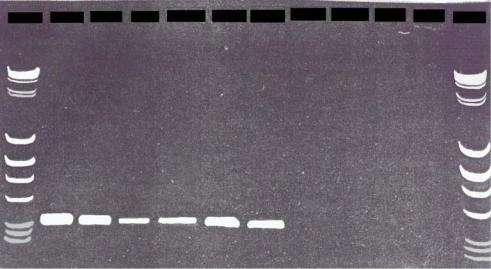
Рис. 10. Иллюстрация применения ПЦР-анализа со специфичными праймерами для диагностики патогенного для ячменя и пшеницы гриба
Cochliobolus sativus.
Амплифицированный фрагмент строго специфичен для C. sativus. Шесть первых дорожек – в исследуемых образцах присутствует ДНК патогена, четыре пустых дорожки – устойчивые к данному патогену растения. По краям (М) – маркер молекулярных масс (электрофорез маркерных макромолекул с известными молекулярными массами: ДНК фага лямбда,
расщепленная Hind III, и ДНК плазмиды pBR322, расщепленная Alu I)
Методика ПЦР позволяет амплифицировать ДНК из любого участка генома, в том числе фрагменты ДНК с неизвестной (анонимной) нуклеотидной последовательностью (при использовании RAPD-маркеров). При RAPD-методе используют стандартные наборы праймеров – случайные (произвольные) праймеры. Использование олигонуклеотидных праймеров произвольной структуры основано на том, что в больших геномах для них имеются множественные сайты посадки, а следовательно, и инициации ПЦР. В этом случае используется, как правило, только один праймер и амплифицируются участки между этим праймером и его обратной (инвертированной) последовательностью. Праймер связывается с геномной ДНК в двух различных участках – инвертированных повторах (ип). Инвертированные повторы – это участки молекулы ДНК, два сегмента которых имеют одинаковую нуклеотидную последовательность, но противоположную ее ориентацию.
Обычно используются произвольные праймеры из 10 нуклеотидов, содержащие не менее 50 % GC. Так как пара G-C содержит три водородных связи, а пара A-T – только две, гибрид «ДНК-праймер», содержащий менее 50 % GC, плавится до того, как полимераза начинает полимеризацию и про-
30