Материал: Принципы и основные методы генетической инженерии. (110
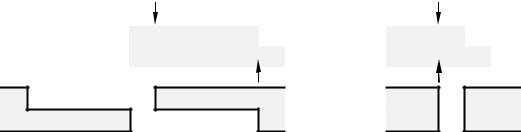
гут гибридизироваться между собой. Это обеспечивает возможность объединения различных молекул ДНК и создание рекомбинантных (гибридных) молекул ДНК. Рестриктазы были названы биологическими ножами, которыми манипулируют генные инженеры или хирурги.
Примером рестриктаз, образующих «липкие концы», являются широко используемые в генно-инженерных работах ферменты бактериального происхождения – EcoRI (присутствует у E.coli) и BamHI (обнаружена в клетках Bacillus amyloliquefaciens). Например, EcoRI распознает последовательность из 6 нуклеотидов (GAATTC), делая ступенчатые разрезы между нуклеотидами G и А (рис. 1), HaeIII – узнает 4 нуклеотида (GGCC), делая прямые разрезы и образуя «тупые» концы. Для соединения «тупых» концов к ним ферментативным путем присоединяют «липкие» концы. Ферменты рестрикции обозначают по названию организмов, из которых они изолированы. Используют три буквы из названия вида бактерии, например, EcoRI
из E.coli, HindIII – из Haemophilus influenzae, HaeIII – из Haemophilus aegyptius и т.д. После трех букв курсивом следуют определенный буквенный символ, обозначающий генетическую линию или штамм, и римская цифра. В настоящее время известно более 400 рестриктаз, способных расщеплять ДНК в различных сайтах.
EcoRI HaeIII
C G A A T T C C A T A G G C C G C
G C T T A A G G T A T C C G G C G
C G |
|
|
G C T |
T |
A A |
A A T T C C A T A G G |
C C G C |
G G T A T C C |
G G C G |
«липкие» концы |
«тупые» концы |
Рис. 1. Последовательность нуклеотидов, которая содержит сайты (сайты рестрикции), распознаваемые различными рестриктазами
2. ЭТАПЫ СОЗДАНИЯ ТРАНСГЕННЫХ ОРГАНИЗМОВ. ВЕКТОРНАЯ ТРАНСФОРМАЦИЯ
Основными этапами создания трансгенных организмов являются следующие.
1. Получение нужного гена (трансгена), намеченного для переноса. Ген может быть выделен из естественных источников (из подходящего генома) или геномной библиотеки. Он может быть синтезирован искусственно: химическим путем (по имеющейся последовательности нуклеотидов)
6
или ферментативным путем с использованием механизма обратной транскрипции (синтез кДНК на матрице мРНК с помощью обратной транскриптазы), получен с помощью полимеразной цепной реакции (ПЦР).
2.Создание специальных генетических конструкций – векторов (переносчиков), в составе которых гены (трансгены) будут внедряться в геном другого вида или клонированы в клетках проили эукариот. Клонирование предполагает получением большого числа копий фрагментов ДНК, идентичных исходному.
3.Генетическая трансформация, т.е. перенос и включение генетических векторов (рекДНК) в клетки-мишени хозяина (реципиента).
4.Молекулярная селекция – отбор клонов, несущих рекДНК, что осуществляется с использованием различных маркерных генов, которые находятся в векторной молекуле наряду с трансгеном.
5.Выращивание измененных клеток в целые трансгенные организмы. Рассмотрим подробнее некоторые из этих процедур.
2.1.Понятие о векторе. Типы векторов, их конструирование
Обязательной генетической конструкцией, используемой в экспериментах по генной инженерии, является вектор. Векторы – это молекулы ДНК, способные переносить включенные в них чужеродные гены в клетку, где эти молекулы реплицируются автономно или после интеграции с геномом (хромосомой). Таким образом, векторы используются в генной инженерии для переноса трансгена от организма-донора в организм-реципиент, а также для клонирования генов. Однако нельзя ввести чужеродный фрагмент ДНК сразу в клетку эукариот или некоторых бактерий (без вектора). Это связано с тем, что при обычном введении ДНК в клетку она, как правило, подвергается атаке ферментов, которые разрезают ее на отдельные фрагменты. Для того, чтобы рекДНК стала составной частью генетического аппарата клетки, она должна либо встроиться в ее геном (интегрировать в хромосому) и реплицироваться за его счет, либо быть способной к автономной репликации.
Вектор должен обладать следующими свойствами.
1.Способность к автономной (т.е. независимо от хромосомы реципиента) репликации в клетке реципиента. Например, для репликации в клетке бактерии вектор должен содержать сайт ori (участок инициации репликации).
2.Наличие сайта, в котором возможно встраивание желаемого фрагмента ДНК. Для этого вектор должен содержать один, или самое большое - два участка (сайта рестрикции), чувствительных к определенной рестриктазе, которая расщепляет вектор и позволяет встроить желаемый трансген.
3.Наличие одного или нескольких маркерных генов, благодаря которым клетка-реципиент будет обладать новыми признаками, позволяющими
7
отличить трансформированные клетки (т.е. содержащие рекДНК) от исходных. Это могут быть селективные гены, которые придают клеткам селективное преимущество (устойчивость к антибиотикам, гербицидам). Такие гены кодируют ферменты, разрушающие или модифицирующие антибиотики, гербициды. В этом случае трансформанты отбирают на питательных средах с высоким содержанием этих веществ. Например, в присутствии гена лактомазы бактериальная клетка приобретает устойчивость к пенициллину и на среде с этим антибиотиком образует клон (несущий данный ген), тогда как обычные клетки (без этого гена) на данной среде погибают. В качестве маркерных используют и так называемые репортерные гены, экспрессия которых не дает селективных преимуществ, но продукты генов удобны для тестирования, например, по изменению окраски. Так, ген GFP контролирует синтез зеленого флюоресцирующего белка из медузы. При облучении трансгенных растений, содержащих этот белок, УФ-лучами появляется зеленое свечение. Гены luxA и luxB выделяют из ДНК светлячков. Они контролируют синтез люциферазы, которая обеспечивает переход люцефиринов из окисленной формы в основную, что и обеспечивает свечение трансгенных растений, накапливающих этот белок. Широко используемым в настоящее время репортерным геном является ген β-глюкоронидазы (GUS). Трансгенные клетки, экспрессирующие этот ген, при помещении их на специфический субстрат окрашиваются в голубой цвет.
4. Кроме того, чтобы чужеродный ген экспрессировался, необходимо его поместить под соответствующий промотор. У эукариотических организмов механизм регуляции транскрипции более сложный, чем у эукариот. Регуляторные последовательности эукариотических генов отличаются от прокариотических, и бактериальная РНК-полимераза не узнает их. Поэтому для экспрессии эукариотических генов в клетках прокариот нужно, чтобы гены находились под контролем бактериального промотора (т.е. промотора клетки-хозяина). В качестве промотора широко используется промотор гена β-лактомазы (ген устойчивости к ампициллину), локализованного в векторе рBR322, lac-промотор E. coli и др.
То есть создается целая генетическая конструкция, в состав которой, помимо трансгена, вводятся маркерные гены и соответствующие регуляторные последовательности.
В качестве векторных молекул могут быть использованы плазмиды бактерий или дрожжей (простых эукариотических организмов), ДНК бактериофагов или вирусов, искусственные хромосомы дрожжей (YAK) и бактерий (BAK). Созданы также гибридные (искусственные) векторы – космиды, объединяющие преимущества плазмид и фагов.
Плазмиды – внехромосомные генетические элементы про- и эукариот, которые автономно реплицируются в клетке. Природные плазмиды часто содержат гены, полезные для бактерий: придающие устойчивость к анти-
8
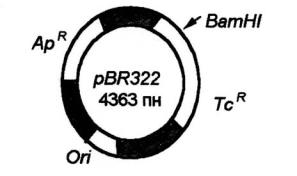
биотикам, контролирующие способность разрушать различные трудноразлагаемые токсические соединения (нафталин, камфору, толуол, ксилол, различные пестициды и др.). Благодаря этому, например, бактерии рода Pseudomonas существуют в различных экологических нишах, в неблагоприятных условиях окружающей среды, их используют для очистки почвы, воды и загрязнений токсическими соединениями. С плазмидами связана способность ряда почвенных бактерий вступать в симбиоз с бобовыми растениями, обусловливая их способность к образованию корневых клубеньков, необходимых для усвоения почвенного азота. Для геннной инженерии большой интерес представляют многокопийные (мультикопийные) плазмиды, которые в клетке представлены большим числом копий (до 10–200 копий на клетку). Используя их, можно достичь сверхсинтеза нужных белковых продуктов. Чаще всего векторы конструируют на основе природных плазмид, удаляя целый ряд лишних генов. Например, широко используемый для этих целей плазмидный вектор рBR322 создан на основе плазмиды E.coli. Плазмида рBR322 имеет сайт ori (область, ответственную за репликацию плазмиды), гены устойчивости к антибиотикам ампициллину (Ap′) и тетрациклину (Tc′). В гене TC′имеется уникальный сайт, разрезаемый рестриктазой Bam HI (рис. 2). Для растений используются векторы, сконструированные на основе Ti- и Ri-плазмид почвенных агробактерий. Эти бактерии поражают до 60 % двудольных растений и некоторые однодольные растения, вызывая формирование опухолей – корончатых галлов (Agrobacterium tumefaciens) или образование «косматых» корней (A. rhizogenes). В плазмидах можно клонировать фрагменты ДНК размером не более 10 тпн.
Рис. 2. Схема строения плазмиды pBR322.
Селективные маркерные гены, определяющие устойчивость к антибиотикам: ампициллину (ApR) и тетрациклину (TcR); В гене TcR имеется уникальный сайт, разрезаемый рестриктазой BamHI; Ori – участок ДНК, ответственный за репликацию плазмиды в клетках E. coli
9
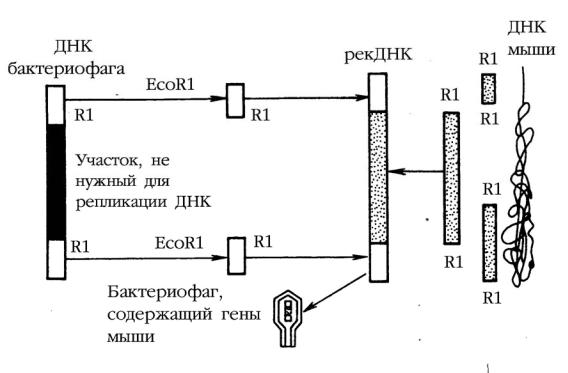
Фаговые векторы чаще всего создают на базе умеренного бактериофага λ, содержащего двухцепочечную линейную молеклул ДНК (рис. 3). Левое и правое плечи фага имеют все гены, необходимые для литического цикла (репликации, размножения). Средняя же часть генома бактериофага λ (содержащая гены, контролирующие лизогению, т.е. его интеграцию в ДНК бактерии-хозяина) не существенна для его размножения и около 50 % (≈ 25тпн) может быть заменена на чужеродный фрагмент ДНК. Такие модифицированные фаги проходят литический цикл, но лизогения не происходит. Векторы на основе бактериофага λ используют для клонирования фрагментов ДНК эукариот (т.е. более крупных генов) размером до 23 тпн. Причем, фаги без вставок (< 38 тпн) или, напротив, со слишком большими вставками (> 52 тпн) не развиваются и не поражают бактерии.
Космида – это векторная плазмида, предназначенная для клонирования больших фрагментов ДНК эукариот (до 45тпн) в клетках E. coli. Термин обозначает, что вектор является плазмидой, внутри которой вставлен cosучасток фага λ (cos-sites), представляющий собой нуклеотидную последовательность, которая отвечает за упаковку фаговой ДНК в ее протеиновую капсулу (рис. 4). Как следствие и плазмидная ДНК, включающая чужеродные гены, может быть упакована в космидах в протеиновую капсулу бактериофага.
Рис. 3. Структура вектора, созданного на основе ДНК бактериофага λ
10