Материал: учебник-1-часть-2017
клетках, обеспечивая формирование жировой инфильтрации и жировой дистрофии.
Воспалительные, токсико-инфекционные поражения печени (отравления фосфором, мышьяком, алкоголем), цирроз печени, авитаминозы, вызывая расстройства функций окислительно-восстанови- тельных и гидролитических ферментов печени, также сопровождаются ее ожирением. Это обусловлено усилением липолиза, нарушением окисления жирных кислот и торможением мобилизации жира.
Дефицит метионина и холина — важнейших субстратов, входящих в состав β-липопротеинов, ведет к недостатку последних и, как следствие, к торможению мобилизации жира из печени с развитием жировой инфильтрации и жировой дистрофии.
В норме липиды составляют 5-10 % веса печени взрослого человека. Об ожирении печени говорят тогда, когда 50 % печеночных клеток имеют отложения жира, или содержание триглицеридов в печени
превышает 10 % сухого вещества. Ожирение печени происходит преимущественно за счет накопления триглицеридов.
Нарушения образования и превращения холестерина. Холе-
стерин входит в состав всех липопротеиновых фракций крови. Больше всего его в β-липопротеинах. В крови человека содержится 150-250 мг % (3,9—6,5 ммоль/л) холестерина. Синтез холестерина происходит почти во всех тканях, но больше всего в кишечнике и печени. При избыточном поступлении пищевого холестерина синтез его в печени тормозится по принципу обратной связи. Повышение синтеза холестерина в печени наблюдается при отсутствии желчных кислот. При их дефиците синтез холестерина в слизистой тонкой кишке увеличивается в 5—10 раз.
Основное влияние на уровень холестерина оказывает содержание жира, особенно ненасыщенных жирных кислот в пище. Так, превалирование ненасыщенных жирных кислот снижает уровень холестерина и повышает выделение желчных кислот. Важным путем элиминации холестерина является синтез из продуктов его распада желчных кислот в печени и удаление их с калом.
Нарушения кислотно-щелочного равновесия
Уздорового человека рН крови колеблется в пределах 7,36—7,44.
абольшинства клеток — 7,0 —7,2. Как известно, рН определяется соотношением недиссоциированных кислот и буферных анионов. Показано, что сумма катионов и анионов равна и обеспечивает нейтральность раствора. Мембраны клеток легко проницаемы для катионов и небелковых анионов. С помощью калиево-натриевого насоса поддерживается высокая концентрация калия в клетке и натрия во внеклеточной среде. Не проходят через мембрану только лишь анионы белковой природы. Все катионы плазмы и эритроцитов не обладают буферными свойствами, так как не связывают ни гидроксильные, ни водородные ионы. Сумма их дает титруемую щелочность. Анионы бикарбоната, белка, фосфорной кислоты связываются с ионами водорода и поэтому обладают буферными свойствами. Все они входят в состав так называемых оснований. Анионы хлора, серной кислоты, органических кислот не обладают буферными свойствами и обеспечивают титруемую кислотность. Таким
176

образом, буферными свойствами, то есть способностью компенсировать избыток образующихся в организме кислот, обладают бикарбонаты, белки, в том числе гемоглобин, и анионы фосфорной кислоты.
В условиях патологии сдвиги рН крови за пределы 7,0—7,8 несовместимы с жизнью. Роль оснований внеклеточной жидкости осуществляют ионы бикарбоната (НСО3—), двузамещенного фосфата (НРО4— —), хлора (Сl—) и белки (белки плазмы, клеток, в том числе гемоглобин).
Эффективное поддержание кислотно-щелочного равновесия осуществляется тремя путями: путем разбавления кислот и щелочей в жидкостях организма буферными системами крови и клеток, различными физиологическими механизмами. Самым простым, но малоэффективным способом поддержания рН является разбавление кислот и щелочей.
Буферная система представлена слабыми кислотами и сильными основаниями. Выделяют следующие буферы:
1. Бикарбонатный буфер. В межклеточной жидкости и плазме растворены углекислый газ (СО2), угольная кислота (Н2СО3), ионы бикарбоната (НСО3—) и карбоната (СО3— —). Углекислый газ реагирует с водой с образованием угольной кислоты, которая легко диссоциирует на ион водорода и бикарбонат.
СО2 + Н2О → Н2СО3 |
→ Н+ + НСО3— |
|||||
Однако транспорт через мембраны клеток осуществляется пре- |
||||||
имущественно в виде СО2. |
|
|||||
Бикарбонатный |
буфер |
состоит из слабой угольной кислоты |
||||
(Н2СО3) и щелочных |
солей |
(преимущественно NaНСО3). Соот- |
||||
ношение |
|
|
|
|
|
|
|
H2CO3 |
|
1 |
при накоплении сильной кислоты происходит реак- |
||
|
HCO -3 |
20 |
||||
|
|
|
|
|||
ция с бикарбонатами с образованием слабой угольной кислоты, которая в виде СО2 удаляется через легкие. При накоплении щелочных продуктов больше образуется бикарбоната натрия, который выделяется с мочой.
Расчет рН при исследовании кислотно-щелочного равновесия производится на основании уравнения Гендерсона-Гассельбаха.
HCO --
3 , а так как количество растворенного
H2CO3
СО2 во много раз превышает содержание угольной кислоты, то эта формула выглядит следующим образом:
|
|
(HCO-- ) |
|
— |
|
|||
|
|
3 |
, где |
(НСО3 ) и |
(СО2) выражены в |
|||
pH 6,1 lg 0,03 pCO2 |
||||||||
|
|
|
||||||
ммоль/л, а рСО2 |
в мм рт. ст. (И.С. Балаховский, Т.Д. Большакова). |
|||||||
pH 6,1 lg |
25 |
6,1 lg 20 |
6,1 1,3 7,4 |
|||||
|
||||||||
|
1,2 |
|
|
|
|
|||
2. Фосфатный буфер представлен в крови NaH2PO4 |
и Na2HPO4. При |
|||||||
этом NaH2PO4 |
выполняет роль кислоты, а Na2HPO4 — щелочи. |
|||||||
177

В |
крови соотношение |
NaH2PO4 |
|
1 |
|
Na2HPO4 |
4 |
|
|||
|
|
|
|
||
Кислоты |
связываются молекулами |
Na2HPO4, а щелочи - |
|||
NaH2PO4.
3. Белковый буфер. Белки, являясь амфолитами, способны диссоциировать в кислотной среде как основания, а в щелочной — как кислоты, что способствует связыванию кислот или щелочей.
4. Гемоглобиновый буфер. Гемоглобин, имея в своем составе белок, проявляет амфотерные свойства и, следовательно, как и любой белок в кислой среде реагирует как основание, а в щелочной - как кислота. Считают, что оксигемоглобин (НвО2) в 70—80 раз более сильная кислота, чем восстановленный гемоглобин (Нв), который имеет свойства слабого основания. Буферные свойства гемоглобина проявляются и в ходе газообмена, конечный продукт окисления белков, жиров и углеводов - СО2 - переходит в кровь и в эритроциты, где под влиянием карбоангидразы образуется угольная кислота. Она диссоциирует на ион водорода (Н+), который связывается с восстановленным гемоглобином, а НСО3— соединяется с калием и, частично переходя в плазму, соединяется с натрием, в венозной крови хлор переходит в эритроцит, а ионы натрия соединяются с бикарбонатом (НСО3—), вышедшим из эритроцита и при диссоциации угольной кислоты в плазме крови Н+ и НСО3—. В малом круге кислород соединяется с гемоглобином и вытесняет ион водорода (Н+), который соединяется с КНСО3, с освобождением в эритроците калия и образованием кислоты, которая под влиянием угольной ангидразы распадается до воды и углекислого газа, а последний переходит из эритроцитов в плазму, а затем в альвеолярный воздух. Одновременно хлор выходит из эритроцитов и в плазме соединяется с бикарбонатом натрия (NaHCO3), количество которого в крови снижается (И. А. Држевецкая).
Наибольшей буферной емкостью обладают бикарбонатный и белковый буферы, особенно гемоглобиновый (табл. 12.11).
Таблица 12.11
Количество ионов водорода (м- экв.), которое поглощается буферными системами крови (1 л) при снижении рН с 7,4 до 7,0. (Д.Р. Робинсон)
Бикарбонат — 18 + фосфат — 0,3 + белки плазмы — 1,7 + гемоглобин — 8,0
Всего — 28
В эритроцитах преобладают буферные свойства гемоглобина, а в плазме, наоборот, бикарбонат занимает первое место, а белки — второе. В межклеточной жидкости содержится только бикарбонатный буфер. Суммарная емкость бикарбонатного буфера межклеточной жидкости и крови равноценны. При компенсации буферные системы эритроцитов, плазмы и межклеточной жидкости реагируют как единое целое
(И.С. Балаховский, Т.Д. Большакова). |
|
||
Важное значение в |
регуляции рН крови, |
межклеточной |
|
жидкости и |
клеток принадлежит физиологическим |
системам, ко- |
|
торые обычно |
включаются |
при недостаточности буферных систем. |
|
|
|
178 |
|
Через легкие выделяется СО2 и поэтому при накоплении кислых продуктов, особенно угольной кислоты, происходит рефлекторное возбуждение дыхательного центра, учащение дыхания и избыточное выделение СО2. В условиях гипоксии учащение дыхания — один из механизмов, направленных на лучшее снабжение кислородом и предотвращение метаболического ацидоза. При уменьшении углекислоты и сдвиге рН в щелочную сторону рефлекторно уменьшается частота дыхания и ограничивается выделение СО2, что может способствовать за счет накопления угольной кислоты (Н2СОз) нормализации рН крови. Дыхательная компенсация начинает развиваться через 16—18 часов, достигает максимума через 2—3 суток, а по данным Г. Рут, через 5—7 дней после сдвига кислотно-основного равновесия. Нормализуется возбудимость дыхательного центра и дыхания в целом после устранения сдвигов рН также спустя 2—3 суток. Изменение со стороны дыхательного центра и системы дыхания в целом могут вести и к гиперкомпенсации (И.С. Балаховский, Т.Д. Большакова).
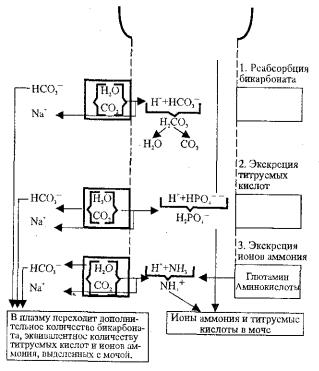
Важным физиологическим механизмом компенсации является выделение кислых и основных продуктов с мочой. Угольная кислота в эпителии канальцев служит источником секретируемых в мочу ионов водорода, а образовавшийся из угольной кислоты бикарбонат (НСО--3) и реабсорбция натрия, взамен секретировавшихся ионов водорода, обеспечивают поступление бикарбоната натрия в кровь. В моче ион водорода соединяется с фильтруемым ионом бикарбоната (НСО3—), образуется угольная кислота, которая распадается на СО2 и Н2О. В проксимальных канальцах почек секретируется наибольшее количество ионов водорода,
здесь же реабсорбируется и 80—90 %, а в |
петле Генле — 10—15 % |
бикарбонатов. |
|
Ион водорода в канальцах соединяется также с ионом НРО4— — и |
|
выделяется в виде кислых фосфатов, |
благодаря чему в конечной |
моче соотношение |
NaH2PO4 |
становится равным 9:1, т.е. с мочой |
|
Na2HPO4 |
|||
|
|
выводятся кислые фосфаты, и поэтому реакция мочи кислая. При снижении рН мочи ниже 4,5 фосфатная буферная система неэффективна, и секреция ионов водорода резко снижается. Выведение их осуществляется только за счет образования аммония (аммониогенез). Считают, что в норме NH4+ образуется очень мало. Выделение ионов водорода в виде иона аммония (NH4+) и его солей является резервным механизмом, который усиленно функционирует при увеличении в плазме ионов водорода. Именно аммониогенез в этом случае способствует поддержанию рН, так как аммиак, образуемый при дезаминировании аминокислот, легко диффундирует в канальцы, соединяется с ионом водорода и в виде хлористого аммония удаляется с мочой. Как уже говорилось, секреция ионов водорода сочетается с реабсорбцией бикарбоната натрия в кровь. Благодаря секреции ионов водорода моча остается кислой, если фильтруется много бикарбоната и тормозится секреция ионов водорода, моча имеет щелочную реакцию.
179
Компенсаторная функция почек развивается более медленно, чем дыхательная. Для ее полного функционирования необходимо 5—7 суток после нормализации рН крови, секреторная и реабсорбционная функция почек нормализуется только лишь спустя 2—3 дня.
рН мочи равен 5—7, но в условиях патологии может колебаться от
4 до 8.
Схематически роль почек в поддержании кислотно-щелочного равновесия представлена на рис. 12.2.
Рис. 12.2. Три фазы ионообмена в почечных канальцах (Р.Д. Робинсон)
Буферные компенсаторные механизмы реагируют быстро, тогда, как физиологические отставлены во времени. При острых расстройствах рН срабатывают, в первую очередь, буферные механизмы. Легочные и почечные более инертные. Поэтому, как их позднее включение, так и их более длительное функционирование могут приводить нередко к явлениям гиперкомпенсации.
Снижение РН крови называется а ц и д е м и е й , а повышение а л - к а л е м и е й . Изменение рН в кислую сторону в организме получило название ацидоза, а в щелочную — алкалоза.
По степени выраженности ацидоз и алкалоз могут быть компенсированными, субкомпенсированными и декомпенсированными. При
180