Материал: BILETY_BIOKEMISTRI
6 Билет
1. Субстратное фосфорилирование: сущность*, биологическое значение процесса**.
 *Субстратное
фосфорилирование
— реакция синтеза АТФ или ГТФ путём
прямого переноса фосфата (PO3)
на АДФ или ГДФ с высокоэнергетического
промежуточного продукта. Перенос может
происходить только с молекул с достаточно
высоким потенциалом переноса групп.
Энергия гидролиза хим.связей таких
молекул должна быть выше, чем энергия
гидролиза АТФ, чтобы за счёт
энергетич.сопряжения обеспечить синтез
АТФ из АДФ и Фн. К таким молекулам с
высоким потенциалом переноса групп
принадлежат фосфоенолпируват,
1,3-бисфосфоглицерат, ацильные производные
кофермента A и креатинфосфат.
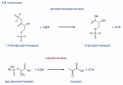 **Субстратное
фосфорилирование служит для быстрой
регенерации АТФ независимо от доступности
акцепторов электронов для дыхательной
цепи переноса, то есть в отсутствии
кислорода. У человека в эритроцитах вся
энергия генерируется исключительно за
счёт субстратного фосфорилирования
гликолиза. При недостатке кислорода
мышцы также получают энергию именно по
этому пути или за счёт креатинфосфата.
Также субстратное фосфорилирование
способствует более полному использованию
энергии окисляемых веществ. Без него
часть энергии просто бы терялась,
превращаясь в теплоту.
2. Механизмы трансмембранной передачи гормонального сигнала в клетку.
Мембранно-внутриклеточный механизм: при реализации биологических эффектов гормонов белково-пептидной природы и производных аминокислот (катехоламины). Рецепторы, чувствительные к гормонам, располагаются в плазматической мембране так, что часть, предназначенная для связывания лиганда, располагается на поверхности мембраны клетки. После образования гормон-рецепторного комплекса, внутри клетки запускается либо процесс биосинтеза вторичных посредников, либо активация уже имеющихся (вторичн.посред-в белковой природы).
Вторичные посредники – сигнальные молекулы, ктр явл компонентами каскадов передачи сигнала; они быстро образуются или активируются и далее актививруют эффекторные белки, ктр опосредуют ответ клетки; образуются из доступных субстратов; примеры: цАМФ, цГМФ, ионы кальция.
Цитозольный механизм: характерен для гормонов, способных проникать через липидный слой мембраны клетки в цитоплазму – стероидов, цодтиронинов. Внутри клетки гормоны связываются с рецепторами и далее регулируют скорость транскрипции специфических генов. В отсутствии гормона внутриклеточные рецепторы связаны с другими белками в цитозоле или ядре.
3.Эндотелиальная дисфункция и развитие ИБС. Роль NO.
Эндотелий – однослойный пласт специализированных клеток мезенхимного происхождения, выстилающих кровеносные, лимфатические сосуды и полости сердца. Дисфункция эндотелия наступает при возд-ии повреждающих агентов (механических, инфекционных, обменных, иммуннокомплексных и т.п.). Характеризуется дисбалансом вазодилатирующих и вазоконстрикторных вещ-в. Осн.вещ-во, продуцируемое эндотелием, явл NO (вазодилататор). NO снижает адгезию форменных эл-тов крови к сосудистой стенке, препятствует выделению факторов, повышающих вероятность тромбообразования.
Развитие эндотелиальной дисфункции и ИБС связано со снижением синтеза, выделения или усиленного распада NO.
Задача: Результат анализа мочи: суточный объём – 3,5 л, плотность – 1050 кг/м3, глюкоза (+), кетоновые тела (+). Сахарный диабет I типа.
Билет 9
1) Окислительное декарбоксилирование пировиноградной кислоты: схема процесса, связь с синтезом АТФ. Строение пируватдегидрогеназного комплекса: ферменты, коферменты, регуляция процесса.
Окислительное декарбоксилирование ПВК - многостадийный процесс, который катализирует пируватдегидрогеназный комплекс - митохондриальный мультиферментный комплекс, соединенный с внутренней мембраной со стороны матрикса. ПВК поступает к комплексу из матрикса, и туда же освобождаются продукты реакции.
П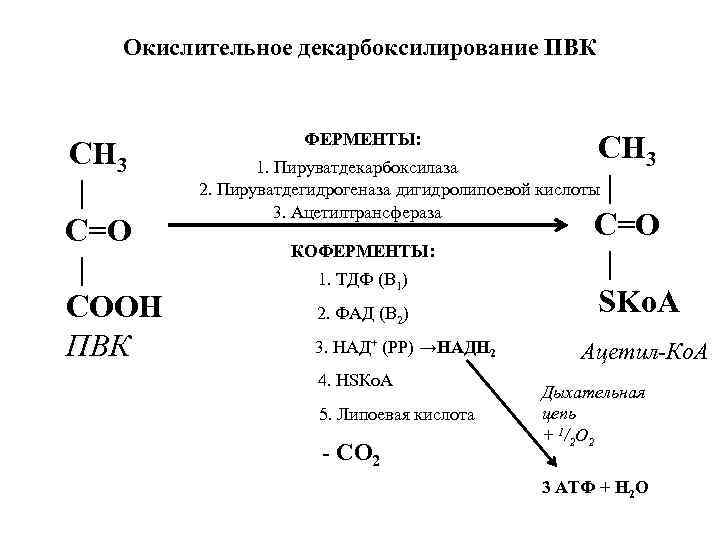 ервую
реакцию катализирует Е1, субстратами
являются ПВК и дегидролипоевая кислота,
являющаяся простетической группой Е2.
От ПВК отщепляется карбоксильная группа
и образуется СО2, а ацетильный остаток
соединяется с атомом серы липоевой
кислоты в составе ацетилтрансферазы.
Образуется ацетиллипоат-Е2.
Во второй реакции ацетилтрансфераза (Е2) катализирует перенос ацетильного остатка, соединенного с его простетической группой, на коэнзим А. Продукты этой реакции - дигидролипоевая кислота в составе Е2 и ацетил-KоА.
В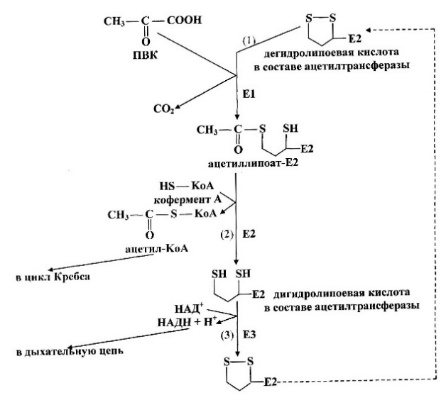 третьей реакции происходит дегидрирование
дигидролипоевой кислоты в составе
ацетилтрансферазы при воздействии
фермента Е3 (дегидрогеназа дигидролипоевой
кислоты), содержащего ФАД. ФАД передает
водород на НАД+. Образуются НАДН+Н+ и
дегидролипоевая кислота в составе Е2.
Последний фермент снова вступает в
окислительное декарбоксилирование
ПВК.
Ацетил-KоА (продукт второй реакции) затем окисляется в цикле Кребса. Водород с НАДН (продукт третьей реакции) поступает в дыхательную цепь, где образуется АТФ.
Энергетический выход окислительного декарбоксилирования пирувата – 3 АТФ.
Суммарное уравнение процесса: СH3-CО-COOH + HS-KoA + НАД+ СH3-CО-S-KoA + НАДН + Н+ + СО2.
2) Антидиуретический гормон (вазопрессин): химическая природа, механизм действия, органы-мишени, биологические эффекты. Несахарный диабет.
Вазопрессин (АДГ) – гормон задней доли гипофиза. Хим.природа: пептид. Механизм дей-я: мембранно-внутриклеточный; вторичные посредники – цАМФ. Органы-мишени – почки и кровеносные сосуды (гладкая мускулатура сосудов).
Биологич. эфф-ты: стимулирует реабсорбцию воды в почках, повышает арт.давл-е; стимулирует синтез белков – аквапоринов; индуцирует чувство тревоги и понижает реакцию на боль. Действуя на кл-ки печени, тормозит образование и ускоряет распад гликогена. Стимулирует липогенез в жировой ткани. \\\\ Стимулируют выброс в кровь вазопрессина гипотензия, гиповолемия и гиперосмоляльность.
Неса́харный диабе́т — заболевание, связанное с нарушением функции гипоталамуса\ гипофиза, которое характеризуется полиурией (обильное выделение мочи) и полидипсией (жажда). При недостаточности в крови вазопрессина происходит нарушение всасывания воды. Следствием этого является полиурия (обильное мочеиспускание)
3) Молекулярные механизмы малигнизации клеток.
Малигнизация — приобретение кл-ми нормальной или патологически изменённой ткани организма (в т.ч. доброкачеств. опухоли) свойств злокачественной опухоли. В основе малигнизации лежат нарушения процессов дифференцировки и пролиферации (размножаются путем деления) клеток. Малигнизация является следствием накопления мутаций и утратой механизма репарации ДНК (способность исправлять химические повреждения и разрывы) в клетках.
билет 10 1. Пищевые углеводы*. Схема переваривания углеводов в ЖКТ.
*Основным источником углеводов организма являются углеводы пищи, к которым относится крахмал. Кроме того, в пище содержатся глюкоза, фруктоза, сахароза и лактоза.
Крахмал представляет собой разветвленный полисахарид, мономером которого является глюкоза. Мономеры линейных участков соединены α1.4-гликозидными связями, а в местах разветвления α1,6-связью. Цепи между участками ветвления содержат примерно 24 мономера. Крахмал поступает в организм в составе растительной пищи.
Лактоза содержится в молоке и является основным углеводом в питании грудных детей. Лактоза состоит из остатков D-галактазы и D-глюкозы, связанных β1,4-гликозидной связью.
Сахароза - дисахарид растений, особенно ее много в сахарной свекле и сахарном тростнике. В сахарозе остатки D-глюкозы и D-фруктозы соединены α,β1,2-гликозидной связью.
М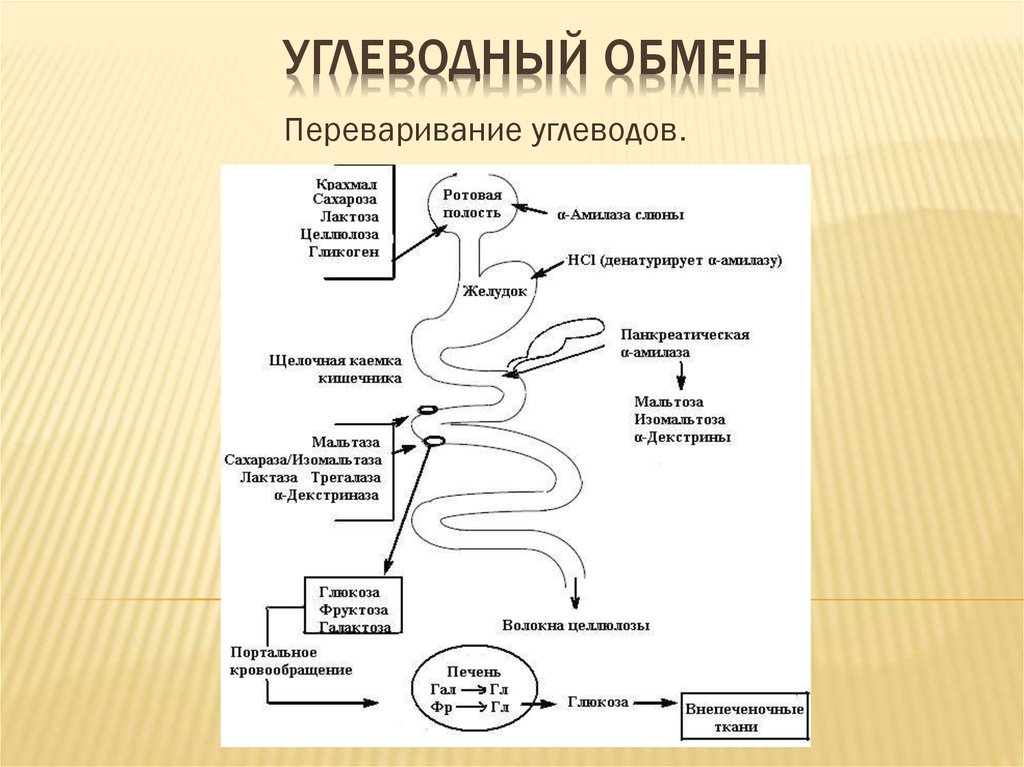 альтоза
поступает с продуктами, в которых крахмал
частично гидролизован (солод, пиво).
Мальтоза состоит из двух остатков
D-глюкозы, соединенных α1,4-гликозидной
связью. Глюкоза и фруктоза являются
моносахаридами и содержатся в меде и
фруктах.
Главное условие усвоения углеводов в организме — их растворимость. Этим качеством обладают моносахариды. Поэтому процесс переваривания углеводов в ЖКТ сводится к расщеплению высокомолекулярных углеводов до моносахаридов.
***Непереносимость лактозы является следствием дефицита лактазы, которая может быть обусловлена генетической предрасположенностью или влиянием факторов среды. Лактоза как дисахарид не может непосредственно всасываться через стенку тонкой кишки в кровь, и при отсутствии лактазы молекулы этого сахара проходят без ферментативного расщепления в толстый кишечник. Бактерии в толстой кишке могут метаболизировать лактозу и выделяют при этом смесь газов (водорода, углекислого газа и метана), что приводит к различным кишечным расстройствам. 2. Роль печени в пигментном обмене*. Виды желтух и причины их возникновения**. Физиологическая желтуха новорожденных***.
*Участие печени в пигментном обмене заключается в захвате из крови несвязанного, непрямого билирубина, образовавшегося в ретикулоэндотелиальной системе из гемоглобина при разрушении эритроцитов, конъюгации его с глюкуроновой кислотой и экскреции в желчь в форме коньюгированного (связанного с глюкуроновой кислотой, прямого) билирубина.
**1)Надпеченочная (гемолитическая) желтуха. Появляется при усиленном гемолизе. Когда распадается слишком много эритроцитов одновременно, высвобождается большое количество билирубина, с которым не может справиться печень. Например, при наследственных видах анемии, когда у человека эритроциты имеют особую форму и склонны к более быстрому разрушению.
2)Печеночная (паренхиматозная) желтуха. Этот вид связан с повреждениями печени, от которых страдает фильтрующая способность органа, и в кровь попадает слишком много билирубина. Такое возможно при инфекциях печени, гепатитах, циррозе.
3)Подпеченочная (механическая) желтуха. Возникает из-за блокирования желчных протоков, соединяющих печень, желчный пузырь и кишечник.
*** Физиологи́ческая желту́ха новорождённых — желтоватое подкрашивание белков глаз и кожи у новорождённого из-за высокого уровня билирубина; также могут быть сонливость и плохой аппетит. Это состояние в периоде адаптации, связанное с заменой фетального гемоглобина (HbF) на гемоглобин А (HbA), незрелостью ферментных систем и приспособлением детского организма к новым условиям окружающей среды.
3. Пигмент билирубин????
Билируби́н — жёлчный пигмент, один из главных компонентов жёлчи. Образуется как результат расщепления белков, содержащих гем: гемоглобина, миоглобина и цитохрома. Распад гемоглобина происходит в клетках костного мозга, селезёнки, лимфатических узлов и печени, откуда конечные продукты попадают в жёлчь и выводятся из организма. В крови билирубин содержится в небольших количествах в виде двух фракций: свободной и связанной. Задача: Ацетилсалициловая кислота (аспирин) широко применяется как противовоспалительное и жаропонижающее средство. Ацетилсалициловая кислота – неконкурентный, необратимый ингибитор фермента циклооксигеназы, контролирующего ключевой этап превращения полиеновых жирных кислот (в основном, арахидоновой [20:4, ω-6], в меньшем количестве эй-козапентаеновой [20:5, ω-3] и эйкозатриеновой [20:3, ω-6] кислот) в эйкозаноиды, многие из которых являются медиаторами воспаления.
Билет 11 1) Синтез гликогена в печени и скелетных мышцах. Регуляция процесса
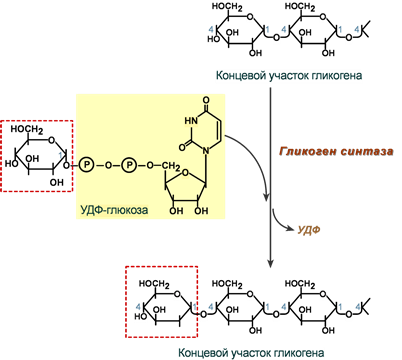 *Гликоген
способен синтезироваться почти во всех
тканях, но наибольшие запасы гликогена
находятся в печени и скелетных мышцах.
Накопление гликогена в мышцах отмечается
в период восстановления после нагрузки,
особенно при приеме богатой углеводами
пищи. В печени синтез гликогена происходит
только после еды, при гипергликемии.
Это объясняется особенностями печеночной
гексокиназы (глюкокиназы), которая имеет
низкое сродство к глюкозе и может
работать только при ее высоких
концентрациях, при нормальных концентрациях
глюкозы в крови ее захват печенью не
производится.
Непосредственно синтез гликогена осуществляют следующие ферменты: 1. Фосфоглюкомутаза – превращает глюкозо-6-фосфат в глюкозо-1-фосфат; 2. Глюкозо-1-фосфат-уридилтрансфераза; 3. Гликогенсинтаза – образует α1,4-гликозидные связи и удлиняет гликогеновую цепочку, присоединяя активированный С1 УДФ-глюкозы к С4 концевого остатка гликогена; 4. Амило-α1,4-α1,6-гликозилтрансфераза,"гликоген-ветвящий" фермент – переносит фрагмент с минимальной длиной в 6 остатков глюкозы на соседнюю цепь с образованием α1,6-гликозидной связи.
** В печени регуляция осуществляется при участии гормонов инсулина, глюкагона и адреналина, а в мышцах — инсулина и адреналина. Их действие на синтез и распад гликогена опосредовано изменением в противоположном направлении активности двух ключевых ферментов: гликогенсинтазы (гликогеногенез) и гликогенфосфорилазы (гликогенолиз) при помощи их фосфорилирования/дефосфорилирования.
-во время мышечной работы адреналин вызывает фосфорилирование внутримышечных ферментов обмена гликогена. В результате фосфорилаза гликогена активируется, синтаза инактивируется. В мышце происходит распад гликогена, образуется глюкоза для обеспечения энергией мышечного сокращения.
-при голодании в ответ на снижение глюкозы крови из поджелудочной железы секретируется глюкагон. Он воздействует на гепатоциты и вызывает фосфорилирование ферментов обмена гликогена, что приводит к гликогенолизу и повышению глюкозы в крови
2) Противосвёртывающая и фибринолитическая системы.
Противосвертывающая с-ма: состоит из антикоагулянтов. Первичные а: синтезируются в организме и выбрасываются в кровь, где взаимодействуют с активными факторами коагуляции, нейтрализуя их – антитромбин III (инактивирует факторы IIa, IXa, XIIa, Xa, XIIIa, из-за чего фибриноген не может превращаться в фибрин и образовывать сгустки), гепарин (блокирует активность тромбина и образование тромбокиназы). Вторичные а: образуются при свёртывании, фибрин, продукты деградации фибрина и тромбина.
Фибринолитическая с-ма: главный компонент – фибринолизин (плазмин), содержащийся в плазме в виде плазминогена; осуществляет лизис фибрина, препятствует чрезмерному росту тромба, удаляет образовавшиеся тромбы, восстанавливая проходимость сосуда. Активаторы фибринолиза – превращают плазминоген в плазмин; плазменные и тканевые. Игибиторы – препятствующие превращению плазминогена в плазмин, действию активного плазмина.
3) Маркеры заболеваний бронхолёгочной системы. Механизмы повреждающего действия полимеров α1-антитрипсина.
Нейтрофилы, макрофаги, эозинофилы, тучные кл-ки, лимфоциты.
Специфической мишенью действия α1-антитрипсина является нейтрофильная эластаза, содержащаяся в некоторых лейкоцитах, способна разрушать коллаген и эластин. Функция: защита легких от эластазы – она производится нейтрофилами в ответ на повреждения и воспаления. Эластаза расщепляет белки, которые затем перерабатываются организмом и удаляются. Если ее активность не контролируется альфа-1-антитрипсином, она начинает разрушать ткани легких.
Задача - ?
Билет 12 1. Гликолиз: общая характеристика*, стадии, реакции процесса**, регулируемые ферменты, энергетический эффект***.
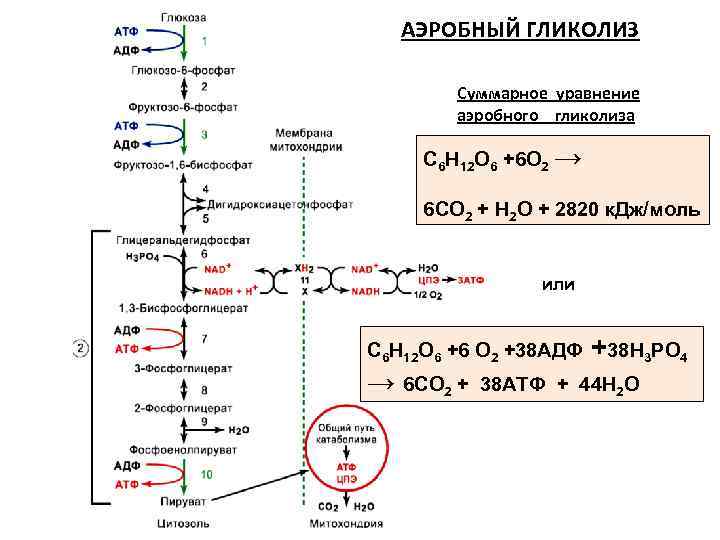
Глико́лиз — процесс окисления глюкозы, при котором из одной молекулы глюкозы образуются две молекулы пировиноградной кислоты. Гликолиз состоит из цепи последовательных ферментативных реакций и сопровождается запасанием энергии в форме АТФ и НАДH. Суммарное: Глюкоза + 2НАД+ + 2АДФ + 2P → 2 пируват + 2НАДH + 2Н+ + 2АТФ + 2Н2O.
Кислород не требуется для протекания гликолиза. В аэробных условиях пировиноградная кислота далее декарбоксилируется, соединяется с коферментом А и вовлекается в цикл Кребса. В анаэробных условиях (при гипоксии) пируват восстанавливается до молочной кислоты либо претерпевает дальнейшие превращения в ходе брожения.
**Распад шестиуглеродного сахара глюкозы на две молекулы трёхуглеродного пирувата осуществляется в 10 стадий, первые 5 которых составляют подготовительный этап с затратой АТФ, а 5 последующих — этап, сопряжённый с образованием АТФ. Все сахара и их производные, образующиеся при гликолизе, являются D-изомерами.
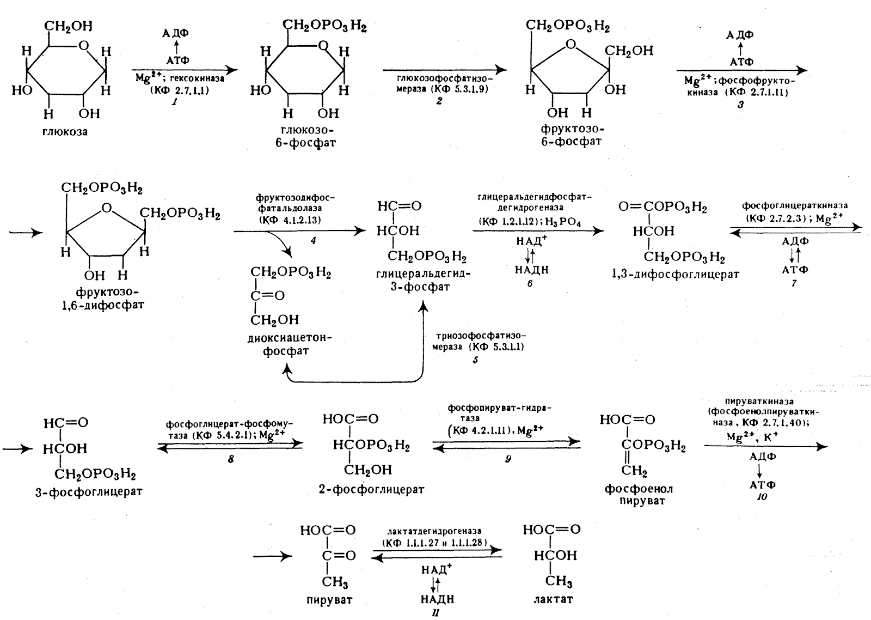
***Энергетический эфф-т гликолиза: на начальных этапах энергия затрачивается: при превращениях 1 мол. Глюкозы – 2 мол. АТФ; при превращениях 1 глюкозного фрагмента гликогена – 1 мол. АТФ.
****
2. Гемоглобин, структура и функции. Типы гемоглобина человека, смена типов в онтогенезе. Кооперативные свойства гемоглобина. Гемоглобинопатии. Железодефицитные анемии. Синдром дыхательных расстройств.
*В молекуле гемоглобина белковый компонент представлен белком глобином, небелковый компонент – гем. Глобин состоит из 4 субъединиц 2 α и 2 β. Каждая α-цепь содержит по 141 аминокислотному остатку, а β- по 146. Внутри каждой субъединицы имеется гидрофобный «карман», в котором располагается гем. Гем – плоская молекула, содержащая 4 пиррольных цикла и соединенных с ними атом железа: Гем соединяется с белковой частью (глобином) гидрофобными связями между пиррольными циклами и гидрофобными радикалами аминокислот.
*Функция: состоит в связывании и переносе кислорода от легких к тканям. Гемоглобин, связанный кислородом, называется оксигемоглобином.
Типы: Физиологические гемоглобины образуются на разных этапах нормального развития организма, а аномальные – вследствие нарушений последовательности аминокислот в глобине.
*Физиологические типы гемоглобина. 1. Примитивный – HbP(относятся гемоглобины, называемые Говер 1 и Говер 2. Фетальный гемоглобин HbF(гемоглобин плода). 3. Гемоглобин взрослых: HbА1, HbА2,HbА3.
HbР появляется на ранних стадиях развития эмбриона. Примитивные гемоглобины заменяются на HbF. На поздних стадиях развития плода появляются гемоглобины взрослых –HbА1, HbА2.
*В легких кооперативное взаимодействие субъединиц гемоглобина повышает его сродство к кислороду и ускоряет присоединение кислорода в 300 раз. В тканях идет обратный процесс, сродство снижается и ускорение отдачи кислорода также 300-кратное.
* Гемоглобинопатии — наследственные заболевания, обусловленные наличием в эритроцитах аномальных гемоглобинов либо угнетением синтеза полипептидных цепей нормальных гемоглобинов. Аномальные гемоглобины отличаются от HbA по первичной структуре, форме, величине заряда. При этом изменяются такие свойства как сродство к кислороду, растворимость, устойчивость к денатурации. Пример: серповидноклеточная анемия (замена глутаминовой кислоты в 6-м положении (с N-конца) на валин в β-цепях молекулы гемоглобина S).