Материал: BILETY_BIOKEMISTRI
Креатинин: участвует в энергетическом обмене мышечной и других тканей. Из организма креатинин выводится почками с мочой, его количество в крови — важный показатель деятельности почек.
Креатинфосфат: обеспечение стабильности выработки внутриклеточной энергии за счет постоянного поддержания необходимого уровня АТФ путем ресинтеза.
Молочная, пировиноградная, щавелевая, янтарная, уксусная, пропионовая, валериановая и другие кислоты. Их выделение с мочой не превышает 1г/сут. Увеличение их концентрации наблюдается при интенсивной мышечной нагрузке, гипоксии, сахарном диабете, голодании. Мочевая кислота (0,2-1,2г/сут). Содержание в моче растет при употреблении пищи, богатой нуклеотидами, при лейкемии, гепатитах, подагре, полицитемии, избытке стероидов.
Гиппуровая кислота выделяется с мочой около 0,7г/сут. Образуется при соединении глицина и бензойной кислоты. Повышается приупотреблении растительной пищи. Аммонийные соли выделяются с мочой около 1г/сут. Их количество повышается при ацидозах, снижается при алкалозах и поражениях дистальных канальцев, где протекают процессы аммониогенеза.
Минеральные соли (5-7 г/сут). Моча содержит натрий (3-6г/сут), хлор (3,6-9г/сут), калий (1,5-3,2г/сут), кальций (0,1-0,25г/сут), магний (0,1-0,2г/сут), неорганический фосфор (0,9-1,3г/сут), сульфаты (1,8 г/сут).
Выделение NaCl(норма 8-15г/сут) снижается при хронических нефритах, диарее, остром суставном ревматизме. Выведение NaC lувеличивается при введении гипертонических растворов.
Уровень бикарбонатов в моче повышается при алкалозе, снижается при ацидозе. Выделение фосфатов возрастает при ацидозе, гиперфункции паращитовидной железы, снижается при избытке витамина Д3. С мочой из организма выделяются различные ядовитые вещества, после их обезвреживания в печени путем конъюгации с серной или глюкуроновой кислотами.
Патологические компоненты мочи. Протеинурия (наличие белка в моче) наблюдается после тяжелой физической работы, при нефритах, гломерулонефритах, нефротическом синдроме, амилоидозе, острых инфекциях, отравлениях и т д. Патологическая глюкозурия - при сахарном диабете, почечном диабете, избытке стероидов, остром панкреатите, отравлении морфином, стрихнином, фосфором, хлороформом. Кетонурия (наличие кетоновых тел в моче) появляется при сахарном диабете, голодании, кахексии, гиперинсулинизме, тиреотоксикозах, послеоперационный период, гликогенозах (I,II,IV), акромегалиях, инфекциях, интоксикациях. Гемоглобинурия появляется после переохлаждении, при гемолитических анемиях, при сепсисе, ожогах, отравлениях сульфаниламидами, ядами грибов. Гематурия появляется при остром нефрите, гломерулонефрите, пиелонефрите мочекаменной болезни, циститах, инфаркте почек, ишемии почек, опухоли почек, амилоидозе почек, аденоме простаты, лихорадке.
3) Понятие о рекомбинантных днк.
Рекомбинантная ДНК - это молекулы ДНК, которые имеют фрагменты ДНК, полученные из двух или более источников. Образованы лабораторными методами генетической рекомбинации (например, молекулярное клонирование) для объединения генетического материала из нескольких источников, создания последовательностей, которые иначе не были бы обнаружены в геноме.
Задача. Одним из первых синтетических бактериостатических препаратов был сульфаниламид (стрептоцид). Сульфаниламидны, являясь структурными аналогами параминобензойной кислоты (ПАБК), действуют как антиметаболиты, приводя к синтезу аналога фолиевой кислоты, не обладающего её функциями, что делает размножение бактерий невозможным. Основой для синтеза фолиевой кислоты служит парааминобензойная кислота (ПАБК), которую бактерии получают из среды.
32 билет 1) Функции желчных кислот + энтерогепатическая циркуляция.
*Обеспечивают эмульгирование жира, а также стабилизируют уже образовавшуюся эмульсию. Меняют желудочное пищеварение на кишечное, то есть инактивируют пепсин. Подавляют гнилостные процессы в кишечнике. Активируют панкреатическую липазу.
** Энтерогепатическая циркуляция желчных кислот — циклическое обращение желчных кислот в органах пищеварения. Желчные кислоты синтезируются гепатоцитами печени, выводятся в составе желчи в двенадцатиперстную кишку, реабсорбируются в кишечнике, транспортируются кровотоком к печени и повторно используются при секреции желчи.
Холевая и хенодезоксихолевая кислоты синтезируются в гепатоцитах печени из холестерина. Синтез при этом ингибируется содержащимися в крови желчными кислотами. В желчи желчного пузыря желчные кислоты присутствуют главным образом в виде конъюгатов — парных соединений с глицином и таурином. При конъюгировании холевой, дезоксихолевой и хенодезоксихолевой кислот с глицином образуются, соответственно, гликохолевая, гликохенодезоксихолевая и гликодезоксихолевая кислоты. Продукты конъюгации желчных кислот с цистеином — предшественником таурина — таурохолевая, таурохенодезоксихолевая и тауродезоксихолевая кислоты.
В первых 100 см тонкой кишки при активном участии желчных кислот происходит всасывание целого ряда гидрофобных веществ: холестерина, жирорастворимых витаминов, растительных стероидов и им подобных. Сами желчные кислоты при этом не всасываются, остаются в химусе и всасывается в кровь позже, главным образом, в подвздошной кишке.
В толстой кишке желчные кислоты расщепляются под воздействием ферментов бактерий кишечника, в том числе энтерококков, некоторых видов эубактерий, Lactobacillus bifidus, Bacteroides vulgatus, Bacteroides uniformis.
Хенодезоксихолевая кислота при участии 7α-дегидроксилаз превращается в литохолевую. Холевая, в основном, в дезоксихолевую. Дезоксихолевая всасывается в кишечнике в кровь и участвует в энтерогепатической циркуляции наравне с первичными желчными кислотами, а литохолевая, в силу своей плохой растворимости, не реабсорбируется и выводится с калом.
Роль: образование вторичных желчных кислот, как компонента желчи; нет необходимости в новом синтезе желчи, транспорт жирных кислот в печень для синтеза желчи. 2) Обмен железа: основные функции, пул железа в организме. Всасывание железа в кишечнике, «ферритиновый» блок. Транспорт железа в плазме крови. Нарушения метаболизма железа (железодефицитные состояния, гемосидероз).
С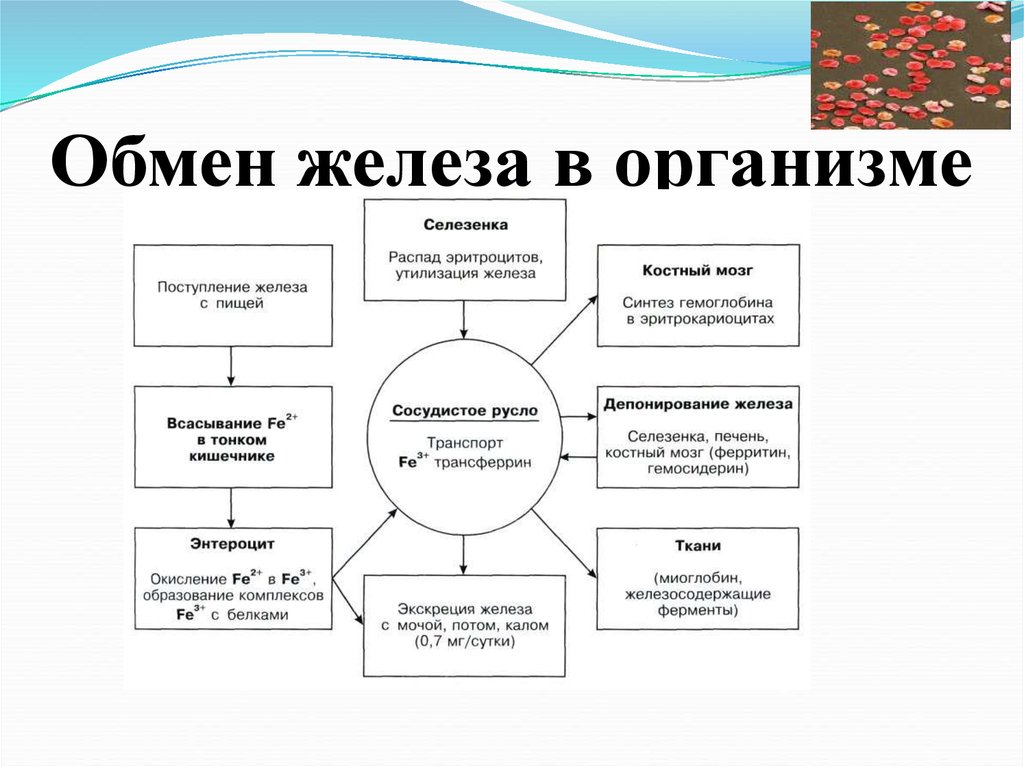 ывороточный
пул железа в большей части (до 80%) необходим
для формирования гемоглобина эритроцитов.
Повышение образования гемоглобина -
главное условие, оказывающее выраженное
влияние на метаболизм железа.
При попадании в желудок под действием HCl желудочного сока железо высвобождается из элементов пищи (гемопротеины, железосодержащие белки). Всасывание происходит в проксимальном отделе тонкого кишечника.
1. Образованный в желудке при участии HCl комплекс [железо(III)—муцин] взаимодействует с мембранным белком интегрином, железо переносится внутрь клетки и восстанавливается до Fe (II) параферритином, и далее при помощи мобилферрина перемещается к месту использования. Роль этого пути очень низка.
2. Другая часть негемового железа (III) восстанавливается до Fe (II) при помощи аскорбиновой кислоты или при участии ферроредуктазы (DcytB, дуоденальный цитохром B) и далее переносится внутрь белком DMT-1.
3.Основным способом всасывания (до 20-30% от полученного с пищей) является транспорт гемового железа. Гемовое железо связывается с белком НСР1, и в цитозоле высвобождается из гема при действии гемоксигеназы, и далее переносится по клетке.
После всасывания формируется пул внутриклеточного железа. Далее железо может: остаться в эпителиоците в составе ферритина (Fe3+), выходить из клетки при помощи ферропортина, окисляться гефестином (феррооксидазой) и связываться с транспортным белком трансферрином (Fe3+).
*Железо в сосудистом русле соединяется с трансферрином, ктр синтезируется в печени, связывает две молекулы Fe2+ и передает железо в костный мозг, ткани, депо.
Железодефици́тная анеми́я — нарушение синтеза гемоглобина вследствие дефицита железа и проявляющийся анемией. Скрытые кровотечения, недостаточное потребление железа с пищей и воспалительные заболевания тонкого кишечника. Гемосидероз — избыточное отложение гемосидерина в тканях организма. Усиленный распад эритроцитов, нарушение утилизации этого пигмента в процессе эритропоэза, усиленное всасывание его в кишечнике, нарушение обмена железосодержащих пигментов, 3) использование рекомбинантных ДНК в медицине.
Производство человеческий инсулин, гормон роста, вакцины, промышленные ферменты;
Механизмы репликации и экспрессии генов;
Исследование отцовства;
Диагностика генетических и инфекционных заболеваний;
Генная терапия; 4) задача про трипсин
33 билет 1) Буферные системы крови и механизм их действия. Роль почек и легких в поддержании буферной емкости крови. Параметры оценки кислотно-основного состояния организма. Причины развития и формы ацидоза и алкалоза.
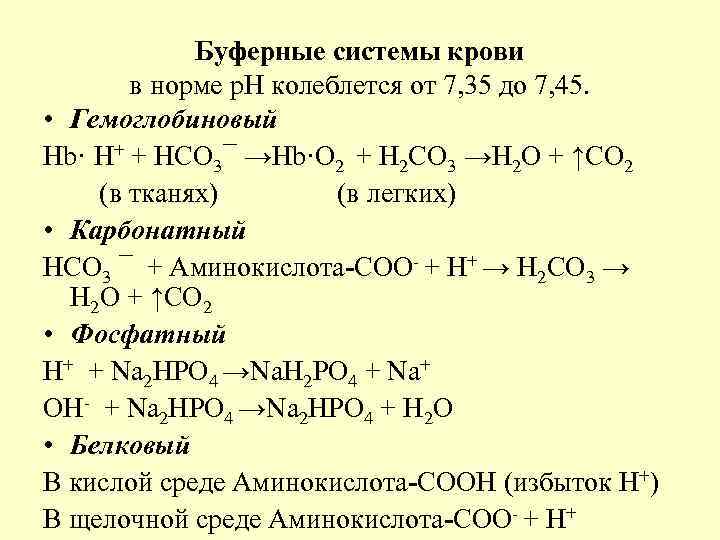
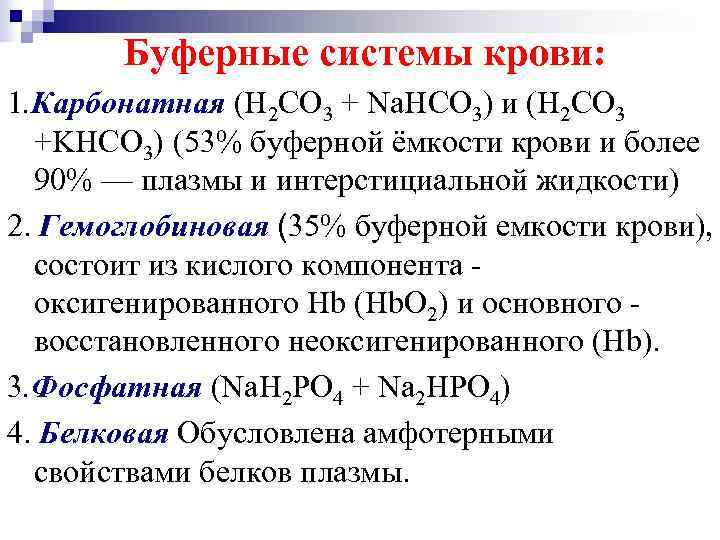
Буферные системы – это комплекс слабых кислоты и основания, который способен препятствовать сдвигу реакции в ту или иную сторону.
Почки: 1.секреция эпителием канальцев водородных ионов, образовавшихся из угольной кислоты, в мочу; 2. образование в клетках эпителия гидрокарбонатов, которые поступают в кровь и увеличивают ее щелочной резерв. Они образуются из угольной кислоты и катионов натрия и калия; 3. синтез аммиака, катион которого может связываться с катионов водорода; 4. обратное всасывание в канальцах из первичной мочи в кровь гидрокарбонатов; 5. фильтрация в мочу избытка кислых и щелочных соединений.
С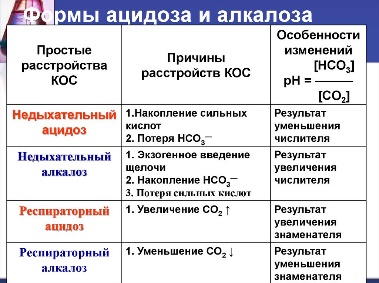 помощью легких из крови удаляется
угольная кислота. В капиллярах легких
из анионов угольной кислоты и протонов
вновь образуется угольная кислота,
которая под влиянием фермента
карбоангидразы расщепляется на углекислый
газ и воду, которые выдыхаются.
рН – Отрицательный десятичный логарифм концентрации водородных ионов. Главный показатель кислотно-основного состояния, характеризует состояние алкалоза или ацидоза.
2) Неферментативные системы антирадикальной защиты и их физиологическое значение.
АО вещ-ва, образующие менее активные радикалы и «гасят» цепные реакции (витамины А, Е, С, GSH; Адреналин, мочевина, билирубин, природные полифенолы, красители).
простым примером некаталитического разрушения радикалов является их гидролиз, лежащий в основе нейтрализации многих водорастворимых продуктов, например, ацилгалидов, эпоксидов, карбокатионов, изоцианатов, эписульфониум-иона и т.д.
Наиболее важной неферментативной реакцией "обезвреживания" радикалов является их взаимодействие с биологическими антиоксидантами, такими как витамин Е, глутатион, витамин С. В результате такого взаимодействия образуются нереакционноспособные вещества, прерывание каскад "наработки" свободных радикалов. 3) Роль нейраминидазы и гемаглютининов в вирусной репликации.
Гемагглютинин прикрепляется к полисахаридным цепочкам на поверхности эритроцитов, содержащим остатки сиаловой кислоты. Нейраминидаза специфически отщепляет остаток сиаловой к-ты от полисахаридов мембраны эритроцита, разрушая рецепторы к вирусу на клетках организма-хозяина. Далее вирус проникает в клетку.
Билет 34
1. Распад гликогена в печени и мышцах. Регуляция.
Гликоген печени расщепляется при снижении концентрации глюкозы в крови, прежде всего при кратком голодании между приемами пищи. Через 12-18 часов голодания запасы гликогена в печени полностью истощаются. Также распад гликогена в печени происходит при мышечной нагрузке под влиянием адреналина и, если развивается рабочая гипогликемия, глюкагона. \\\ В мышцах количество гликогена снижается обычно только во время физической нагрузки – длительной и/или напряженной. Гликоген здесь используется для обеспечения глюкозой самих миоцитов.
Мобилизация (распад) гликогена или гликогенолиз активируется при недостатке свободной глюкозы в клетке, а значит и в крови (голодание, мышечная работа). При этом уровень глюкозы крови "целенаправленно" поддерживает только печень, в которой имеется глюкозо-6-фосфатаза, гидролизующая фосфатный эфир глюкозы. Образуемая в гепатоците свободная глюкоза выходит через плазматическую мембрану в кровь.
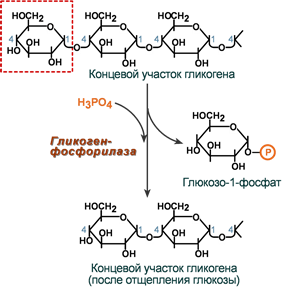 В
гликогенолизе непосредственно участвуют
три фермента:
Фосфорилаза гликогена (кофермент пиридоксальфосфат) – расщепляет α-1,4-гликозидные связи с образованием глюкозо-1-фосфата. Фермент работает до тех пор, пока до точки ветвления (α1,6-связи) не останется 4 остатка глюкозы.
2. α(1,4)-α(1,4)-Глюкантрансфераза – фермент, переносящий фрагмент из трех остатков глюкозы на другую цепь с образованием новой α1,4-гликозидной связи. При этом на прежнем месте остается один остаток глюкозы и "открытая" доступная α1,6-гликозидная связь.
3. Амило-α1,6-глюкозидаза, ("деветвящий" фермент) – гидролизует α1,6-гликозидную связь с высвобождением свободной (нефосфорилированной) глюкозы. В результате образуется цепь без ветвлений, вновь служащая субстратом для фосфорилазы.
2. Действие первичных и вторичных продуктов перекисного окисления на мембраны и другие структуры.
Первичными продуктами ПОЛ являются гидроперекиси жирных кислот, они подвергаются дальнейшему распаду с образованием вторичных продуктов ПОЛ – различных спиртов, кетонов, альдегидов и диальдегидов, эпоксидов и других соединений.
Вторичные продукты ПОЛ является малоновый диальдегид (МДА), который способен образовывать ковалентные связи с NH2-группами белков и иных молекул с образованием шиффовых оснований.
Малоновый диальдегид (МДА), образующийся при перекисном окислении липидов, способен реагировать с ε-NH2-группами лизина или N-концевыми аминокислотами белков, с NH2-группами фосфолипидов и гликозаминов. МДА формирует мостики внутри молекул и между ними с образованием шиффовых оснований.
В конечном результате после окислительной атаки в белках появляются поперечные сшивки внутри одной молекулы, между разными белками, между белками и фосфолипидами. Из-за этого активность ферментативных белков изменяется, возможности структурных и сократительных белков падают, каналообразующие белки мембраны деформируются и проницаемость мембран возрастает, жизнеспособность и функционирование клетки уменьшаются.