Материал: BILETY_BIOKEMISTRI
16 Билет.
1. Трансаминирование аминокислот, биологическое значение, субстраты, ферменты*, роль витаминов в этом процессе.
*Под трансаминированием подразумевают реакции межмолекулярного переноса аминогруппы (NH2—) от аминокислоты на α-кетокислоту без промежуточного образования аммиака. Реакции трансаминирования являются обратимыми и универсальными для всех живых организмов. Реакции катализируют ферменты аминотрансферазы.
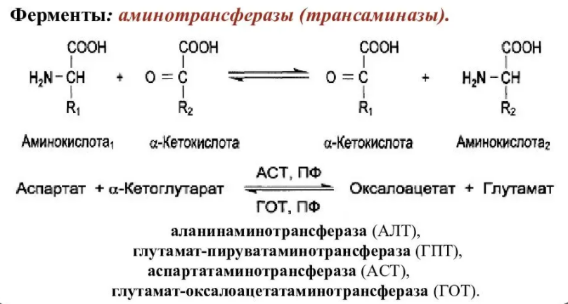 Реакции
трансаминирования протекают в 2 стадии.
На первой стадии к пиридоксальфосфату
в активном центре фермента присоединяется
аминогруппа от первого субстрата –
аминокислоты. Образуется комплекс
фермент-пиридоксаминфосфат и кетокислота
– первый продукт реакции. Этот процесс
включает промежуточное образование 2
шиффовых оснований (альдимин и кетимин).
На второй стадии пиридоксаминфосфат соединяется с новой кетокислотой (второй субстрат) и снова через промежуточное образование 2 шиффовых оснований передает аминогруппу на кетокислоту. В результате фермент возвращается в свою нативную форму, и образуется новая аминокислота – второй продукт реакции.
**Трансаминирование осуществляется несколькими ферментами, в том числе аминотрансферазами, которые являются производными пиридоксина — одного из витаминов группы В (В6). Без этого витамина синтез аминокислот затрудняется, что снижает нормальную продукцию белка.
2.Роль АФК в механизме фагоцитоза. Кислород зависимые и кислороднезависимые механизмы фагоцитоза. Роль АФК в антимикробной защите грудного молока.
*Свободные радикалы в иммунитете в фагоцитозе осуществляется микро и макрофагами: нейтрофилами, моноцитами, тканевыми макрофагами, остеокластами, клетками микроглии. После того как микроб свяжется с рецепторами фагоцитирующих клеток, начинается образование пищеварительной вакуоли, или фагосомы. Вскоре с фагосомой сливаются лизосомы, в нейтрофилах их роль выполняют азурофильные гранулы. Микроорганизм разрушается, непереваренные остатки выбрасываются наружу.
Узнавание микроба резко изменяет метаболизм фагоцита, происходит его активация, выражающаяся в усилении поглощения кислорода. Это явление получило название "дыхательного" или "респираторного" взрыва. Потребление кислорода клеткой возрастает в 20-40 раз. При этом 90% потребляемого клеткой кислорода быстро превращается в супероксид анион-радикал под действием мембранного фермента НАДФН-оксидазы (NOX) и выделяется во внеклеточное пространство (цитотоксический эффект) или внутрь фаголизосомы (бактерицидный эффект).
** Кислороднезависимые механизмы внутриклеточной цитотоксичности фагоцита обеспечиваются действием лизосомальных ферментов, разрушающих объект фагоцитоза.
1. Лизоцим разрушает клеточную стенку бактерий. 2. Катионные белки повреждают бактериальную цитоплазматическую мембрану. 3. Рибонуклеаза разрушает РНК микроорганизмов. Дезоксирибонуклеаза разрушает ДНК микробов. 4. Лактоферрин активно связывает железо, необходимое для размножения бактерий.
Б. Кислородзависимые механизмы внутриклеточной цитотоксичности фагоцита описываются как «респираторный взрыв». 1. После поглощения объекта фагоцитоза у фагоцита возрастает потребность в кислороде, вследствие которой происходит интенсификация метаболизма О2. 2. В результате резко повышается синтез токсических кислородных продуктов, обладающих микробоцидной активностью (ведущий из них – синглетный кислород; кроме него к этой группе веществ относятся супероксидный радикал, перекись водорода и катализирующая ее токсическое воздействие на микроорганизмы миелопероксидаза, гидроксильный радикал, хлорноватистая кислота).
*** Различают специфические и неспецифические факторы антимикробной защиты грудного молока. К специфическим относят иммуноглобулины. К неспецифическим факторам относят ксантиноксидазу, лактопероксидазу, лактоферрин, лизоцим, компоненты комплемента, а также клеточные элементы, обладающие фагоцитирующей активностью и способностью вырабатывать нейтрофилы и макрофаги.
Механизм заключается в том, что ксантиноксидаза окисляет ксантин либо гипоксантин и образует супероксидный анион-радикал – ведущую активную форму кислорода в процессах свободнорадикального окисления. Нейтрализуя супероксидный анион-радикал путём образования перекиси водорода, патогенные вирулентные бактерии вызывают ещё больший огонь на себя, запуская в действие лактопероксидазу, для которой перекись водорода является необходимым субстратом. Лактоферрин освобождает двухвалентное железо и катализирует распад перекиси водорода с образованием гидроксильного радикала, атакующего жирные кислоты бактериальных липидов. Благодаря сочетанному действию этих и других факторов (лизоцим разрушает полисахариды клеточной бактериальной стенки) важнейшие структуры бактериальных клеток подвергаются деструкции, что и приводит к гибели бактерии.
3 Метаболические механизмы алкоголизма.
системные поражения, которые вызывает в организме алкоголь: расстройство метаболизма (углеводного, липидного и белкового) и расстройства в нейромедиаторной системе (изменения содержания ацетилхолина и катехоламинов).
В окисление включается никотинадениндинуклеотид (НАД), что влечет за собой нарушение равновесия во многих цепях метаболизма. Привлечение ацетил-Ко-А вызывает нарушение цикла Кребса, в котором коэнзим служит субстратом. Углерод из молекулы этанола включается в синтез углеводов, жиров и белков, нарушая естественное течение этого синтеза; кроме того, молекулы этанола замещают жиры и углеводы в энергетическом обмене, вторично тем самым нарушая метаболизм этих основных субстанций.
Задача: Больной, проживающий в местности с дефицитом йода, обратился с жалобами на зябкость, «отсутствие энергии» для занятий спортом. При обследовании зафиксирована брадикардия, обнаружено увеличение щитовидной железы (зоб). Химический элемент йод, в виде йодид-аниона, а также аминокислота тирозин необходимы для биосинтеза тиреоидных гормонов. Приведённый симптомы отражают их дефицит и попытку компенсации за счёт разрастания железистой ткани щитовидной железы (зоб).
Билет 17 1) Окислительное дезаминирование (прямое, непрямое) аминокислот. Схема процесса, стадии, ферменты. Биологическое значение процесса.
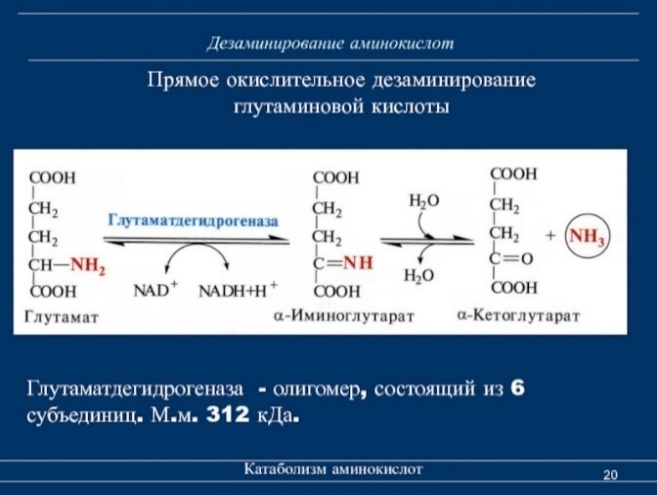
Прямое дезаминирование катализируется одним ферментом, в результате образуется NH3 и кетокислота. Прямое окислительное дезаминирование может идти в присутствии кислорода (аэробное) и не нуждаться в кислороде (анаэробное).
Аэробное прямое окислительное дезаминирование катализируется оксидазами D-аминокислот (D-оксидазы) в качестве кофермента использующими ФАД, и оксидазами L-аминокислот (L-оксидазы) с коферментом ФМН.
Анаэробное прямое окислительное дезаминирование существует только для глутаминовой кислоты, катализируется только глутаматдегидрогеназой, превращающей глутамат в α-кетоглутарат. Фермент глутаматдегидрогеназа имеется в митохондриях всех клеток организма (кроме мышечных).
В печени реакция используется для получения аммиака из его транспортной формы глутаминовой кислоты. Далее аммиак входит в реакции синтеза мочевины.
Непрямое окислительное дезаминирование включает 2 этапа и активно идет во всех клетках организма.
Первый этап заключается в обратимом переносе NH2-группы с аминокислоты на кетокислоту с образованием новой аминокислоты и новой кетокислоты при участии ферментов аминотрансфераз (трансаминирование). В качестве конечной кетокислоты-акцептора ("кетокислота 2") в организме обычно используется α-кетоглутаровая кислота, которая превращается в глутамат ("аминокислота 2"). В результате трансаминирования свободные аминокислоты теряют α-NH2-группы и превращаются в соответствующие кетокислоты. Далее их кетоскелет катаболизирует специфическими путями и вовлекается в цикл трикарбоновых кислот и тканевое дыхание, где сгорает до СО2 и Н2О.
Второй этап состоит в отщеплении аминогруппы от аминокислоты 2 – дезаминирование.
Т.к. в организме коллектором всех аминокислотных аминогрупп является глутаминовая кислота, то только она подвергается окислительному дезаминированию с образованием аммиака и α-кетоглутаровой кислоты. Этот этап осуществляется глутаматдегидрогеназой, которая имеется в митохондриях всех клеток организма, кроме мышечных.
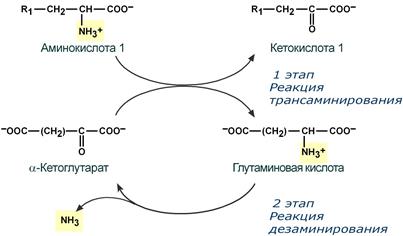 Учитывая
тесную связь обоих этапов, непрямое
окислительное дезаминирование называют
трансдезаминирование.
Если реакция прямого дезаминирования идет в митохондриях печени, аммиак используется для синтеза мочевины, которая в дальнейшем удаляется с мочой. В эпителии канальцев почек реакция необходима для удаления аммиака в процессе аммониегенеза. Так как НАДН используется в дыхательной цепи и α-кетоглутарат вовлекается в реакции ЦТК, то реакция активируется при дефиците энергии и ингибируется избытком АТФ и НАДН.
Гормоны щитовидной железы: химическая природа и структура, этапы биосинтеза.
*Место синтеза: щитовидная железа, клетки ее эпителия – тироциты. Природа гормона: производные аминок-ты тирозина (гидроксифенилаланина). Тиреоциты вырабатывают два тиреоидных гормона: Т4 и Т3 (соотношение 4:1).
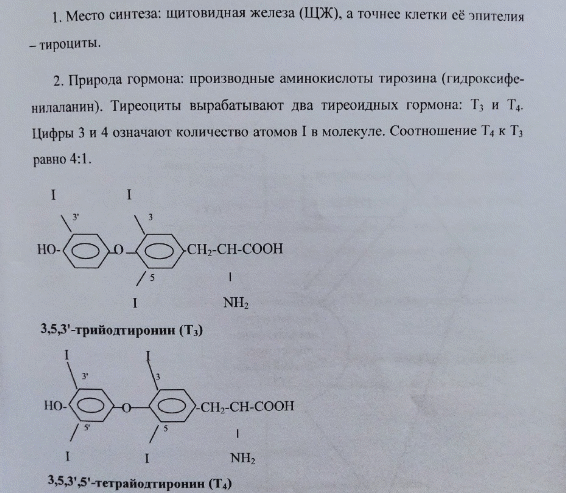
** 1) Включение I- в Щит.Ж. I- поступает с пищей и водой. 25-30% захватывает ЩЖ. Транспорт I- в клетки происходит при участии Na+\K+-АТФазы против выского градиента концентрации. Непоглощенный из крови I- выводится с мочой.
2) Йодирование или органификация йода. Окисление I-: происходит при участии участии гемсодержащей тирпероксидазы и H2O2 в кач-ве окислителя.
Йодирование тирозина и образование йодтиронинов: сначала синтезируется белок тиреоглобулин, потом осуществляется йодирование радикалов тирозина этого белка. Тиреоглобулин синтезируется в тиреоцитах и путем экзоцитоза секретируется во внеклеточный коллоид, где происходит йодирование остатков тирозина и образование йодтиронинов. Гипойодит взаимодействует с остатками тирозина в молекуле тиреоглобулина с образованием йодтиреоглобулина.
Конденсация с образованием Т3 и Т4: конденсация 2 молекул дийодтирозина с образованием Т4 или МИТ и ДИТ с образованием Т3 происходит в составе молекулы йодтиреоглобулина (фермент – тиреопексидаза). Протеолиз и секреция тиреоидных гормонов: йодтиреглобулин транспортируется из коллоида в фолликулярную клтеку (тиреоцит) путем эндоцитоза. Там он гидролизуется ферментами лизосом с освобождением Т3 и Т4.
3) Метаболизм этанола.
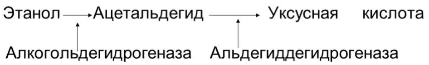 На
каждой стадии происходит отщепление
Н+ и восстанавливается НАД и НАДФ. Пир
высоких дозах алкоголя отношение НАД
+ Н+\НАД+ увеличивается. Ацетальдегид,
концентрация ктрг растет, ингибирует
НАДН+-дегидрогеназу митохондриальной
цепи переноса электронов. Снижается
окисление интермедиаторов цикла,
происходит ингибирирование трех
биохимических путей в печени (ЦПЭ, цикл
Кребса, глюконеогенез) и двух в сердце
(ЦПЭ, цикл Кребса).
Задача.
Больной
жалуется на неутолимую жажду. Суточный
объём мочи – 4,5 л, плотность – 1004
кг/м3.
Глюкоза и кетоновые тела в моче не
обнаружены. У
больного – несахарный диабет, при
котором нарушается концентрационная
функция почек вследствие нехватки
антидиуретического гормона (вазопрессина).
Билет 18.
1) Декарбоксилирование аминокислот*. Биологическое значение**. Продукты и их судьба.
*Декарбоксилирование – процесс отщепления карбоксильной группы аминокислот в виде СО2.
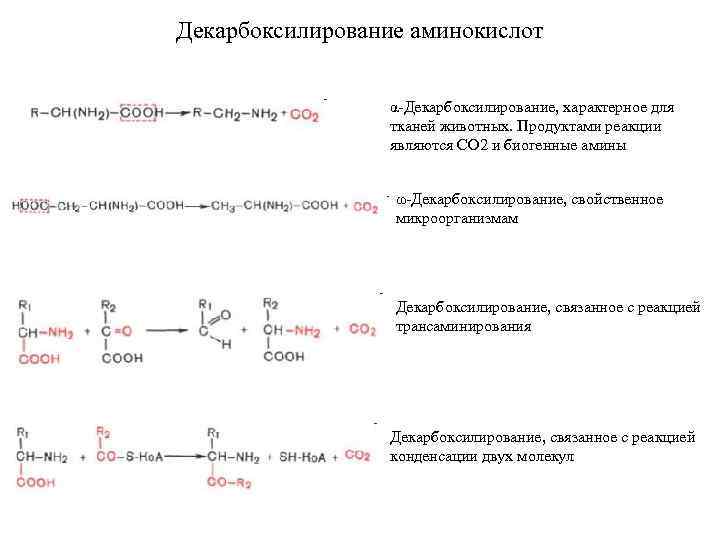
Альфа-декарбоксилирование: печень, почки, мозг, кишечник. Приводит к образованию биогенных аминов (биологических активных веществ, гистамин, гамма-аминомасляная кислота). Ферменты – декарбоксилазы аминокислот. Простетическая группа – пиридоксальфосфат (производное витамина В6).
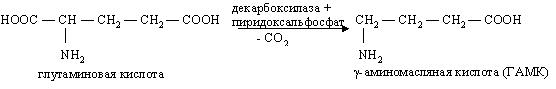
***Например, гамма-аминомасляная кислота принимает участие в обменных процессах, происходящих в головном мозге, является нейромедиатором.
** Реакции необратимы - приводят к необратимому распаду аминокислот. Образуется значительное количество СО2 - конечного продукта метаболизма, который выводится из организма. Образуются амины, которые обладают высокой биологической активностью. Поэтому такие амины называют биологически активными или биогенными аминами. Они являются медиаторами, с помощью которых сигнал передается от одной клетки к другой и от одной молекулы к другой.
2) Альдостерон: химическая природа, механизм действия, органы-мишени, биологические эффекты.
Гормон коры надпочечников. Мех.дей-я: внутриклеточный. Органы-мишени: почки, слюнные железы, желудочно-кишечный тракт, миокард. Стимулы биосинтеза и секреции А.: недостаток ионов Na\избыток ионов K в плазме крови, действие Адренокортикотропного г-на.
Биолог.эфф-ты: способность регулировать обмен Na; усиливает обратное всасывание его в почках, слюнных ж. и ЖКТ. Потенцирует эфф-ты катехоламинов и оказывает на сердце положительное инотропное дей-е. Высокие конц-ии А. в плазме крови вызывают снижение секреции ренина почками за счет угнетения баро- и натриевых рецепторов.
3) Моногенные заболевания.
Заболевания с единичными генными мутациями, приводящие к изменению порядка нуклеотидов в молекуле ДНК, что влияет на последовательность аминокислот, ктр кодируются данным геном. Аутосомно-доминантные: арахнодактилия, синдром Марфана. Аутосомно-рецессивные: фенилкетонурия, микроцефалия, ихтиоз, серповидно-клеточная анемия.
19 билет: 1. Синтез мочевины: схема реакций, суммарное уравнение.
Синтез мочевины – циклический процесс. Суммарное уравнение: СO2 + NH3 + 2H2O + Аспарат + 3АТФ + 2Н2О → Мочевина + Фумарат + 2(АДФ + Н3РО4) + АМФ + Н4Р2О7.
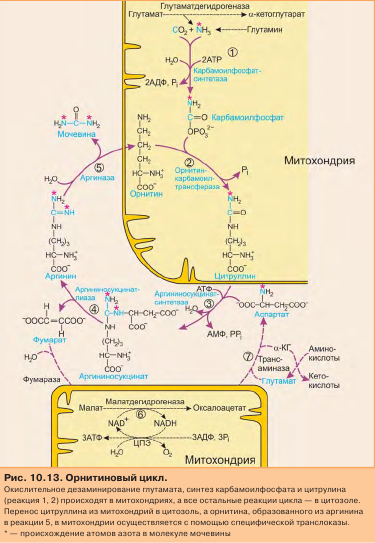 Включение
азота происходит в двух реакциях. Один
из атомов азота поступает в форме NH3 в
реакции I и является продуктом
дезаминирования аминокислот, а другой
включается в составе аспартата (реакция
3). Этот второй азот может поступать в
аспартат из любой аминокислоты путем
трансаминирования с оксалоацетатом
(реакция 7).
Процесс эндергонический, требующий 3 моль АТФ для синтеза одной молекулы мочевины (реакции 1, 3).
**Орнитиновый цикл связан с цитратным циклом, так как оксалоацетат, необходимый для трансаминирования, образуется из фумарата в реакциях цитратного цикла, протекающего в митохондриях клетки (реакция 6).
***Определение концентрации мочевины в моче при обнаружении повышенного уровня мочевины в крови позволяет оценить состояние выделительной функции почек, и, следовательно, определить (или предположить) причину гиперуремии. Повышение уровня мочевины в крови с одновременным снижением ее экскреции отмечают не только при нарушении выделительной функции почек, но и при нарушении почечной гемодинамики, обусловленной гиповолемией или сердечной недостаточностью. Уровень мочевины в моче изменяется под действием физиологических факторов (характер питания, физическая нагрузка.), при приеме лекарственных препаратов.
Повышенные значения: диета с повышенным содержанием белка; усиление катаболизма эндогенных белков (голодание, кахексия, лейкозы, лучевая болезнь, массивные ожоги, ранения, желудочно-кишечные кровотечения, гипертиреоз).
Пониженные значения: Нарушение синтетической функции печени (цирроз, гепатит);снижение выделительной функции почек (острая и хроническая почечная недостаточность); беременность; нарушение всасывания аминокислот в тонком кишечнике; диета с низким содержанием белка.
2. Кальцитонин: химическая природа, механизм действия и биологические эффекты.
Кальцитонин. Вырабатывается и секретируется К-клетками Щит.железы. Хим.природа: пептидная. Мех.дей-я: мембранно-внутриклеточный. Органы мишени: кости (кл-ки костей – остеокласты), почки, желудок, кишечник, кл-ки ЦНС.
Биологич.эфф-ты: подавляет резорбцию костного минерала остеокластами и реабсорбцию ионов Ca и фосфатов, натрия, калия и магния в почках. Снижает секрецию гастрина и соляной к-ты в желудке, трипсина и амилазы в экзокрин.ч-ти поджел.ж. Усиливает поступление в кишечник воды и ионов натрия, калия, хлора. Оказывает прямой анальгетический эфф-т, действуя на рецепторы кл-к гипоталамуса и лимбической сис-мы.
Паратиреоидный гормон: химическая природа, органы- мишени, биологические эффекты. Влияние на обмен кальция и фосфора гипо- и гиперпродукции ПТГ.
ПТГ синтезируется и секретируется кл-ми паращитовидных желез. Хим.природа – пептид. Мех.дей-я: мембранно-внутриклеточный. Органы-мишени: кости скелета, почки, кишечник.
Биологич.эфф-ты: сохраняют содержание ионов Ca и увеличивают их концентрацию в жид-ях орг-ма. На почки – усиление реабсорбции ионов Ca. В почках усиливает образование из предшественников гормональной формы витамина Д3. Остеобласты на поверх-ях костей под дей-ем ПТГ наичнают выделять цитрат, лактат, лизосомальные ферменты), стимулирующие разрушение костного минерала остеокластами (это сопровождается поступлением в кровь ионов кальция и фосфатов. 3. Патобиохимия инфаркта миокарда.
Инфаркт миокарда - некроз части сердечной мышцы в результате острой окклюзии коронарной артерии. Наиболее частой причиной прекращения кровотока является тромбоз, развивающийся при повреждении нестабильной атеросклеротической бляшки. В результате длительной ишемии участка сердца развивается некроз кардиомиоцитов. Затем начинается фагоцитоз некротических тканей с образованием рубцового поля к 4-8 неделе заболевания. ЗАДАЧА: При проведении теста на толерантность к глюкозе её концентрация в крови натощак и через 2 ч после сахарной нагрузки оказалась, соответственно 5 и 11,1 ммоль/л.