Материал: BILETY_BIOKEMISTRI
*** Многие клетки организма способны к анаэробному окислению глюкозы. Для эритроцитов он является единственным источником энергии. Клетки скелетной мускулатуры за счет бескислородного расщепления глюкозы способны выполнять мощную, быструю, интенсивную работу, как, например, бег на короткие дистанции, напряжение в силовых видах спорта. Вне физических нагрузок бескислородное окисление глюкозы в клетках усиливается при гипоксии – при различного рода анемиях, при нарушении кровообращения в тканях независимо от причины.
2) Характеристика и роль фибриллярных и регуляторных белков в процессе мышечного сокращения. Механизм мышечного сокращения, этапы. Роль ионов кальция в реализации механизма мышечного сокращения.
Согласно теории скольжения нитей, мышечное сокращение происходит благодаря скользящему движению актиновых и миозиновых филламентов друг относительно друга. Механизм скольжения нитей включает несколько последовательных событий.
Головки миозина присоединяются к центрам связывания актинового филламента. \\ Взаимодействие миозина с актином приводит к конформационным перестройкам молекулы миозина. Головки приобретают АТФазную активность и поворачиваются на 120°. За счет поворота головок нити актина и миозина передвигаются на «один шаг» друг относительно друга. \\ Рассоединение актина и миозина и восстановление конформации головки происходит в результате присоединения к головке миозина молекулы АТФ и ее гидролиза в присутствии Са2+. \\\ Цикл «связывание – изменение конформации – рассоединение – восстановление конформации» происходит много раз, в результате чего актиновые и миозиновые филламенты смещаются друг относительно друга, Z -диски саркомеров сближаются, и миофибрилла укорачивается.
Ионы кальция принимают участие в энергетическом контроле мышечной деятельности путём регуляции запасов АТФ. Связываясь с тропонином тонких нитей открывает их активн.ц. Меняет заряд на АТФ, активирует АТФазу.
3) ПЦР: биомедицинское значение.
Метод основан на многократном избирательном копировании определённого участка нуклеиновой кислоты ДНК при помощи ферментов в искусственных условиях (in vitro).
Позволяет добиться значительного увеличения малых концентраций определённых фрагментов нуклеиновой кислоты (ДНК или РНК) в биологическом материале (пробе). Используется для диагностики заболеваний (наследственных, инфекционных), для установления отцовства, для клонирования генов, выделения новых генов, позволяет производить множество других манипуляций с нуклеиновыми кислотами (введение мутаций, сращивание фрагментов ДНК).
Задача.
Пациенту с жёлчнокаменной болезнью назначили препарат хенодезоксихолевой кислоты. С чем связано такое назначение? При каком составе жёлчных камней применение этого препарата будет наиболее эффективным?
Ответ:
Хенодезоксихолевая кислота – первичная желчная кислота, образующейся в гепатоцитах печени при окислении холестерина. В норме хенодезоксихолевая кислота составляет 20– 30% общего пула желчных кислот. Объём продукции хенодезоксихолевой кислоты у взрослого здорового человека 0,2-0,3 г/сут. В жёлчном пузыре хенодезоксихолевая кислота присутствуют главным образом в виде конъюгатов — парных соединений с глицином и таурином, называемых, соответственно, гликохенодезоксихолевой и таурохенодезоксихолевой кислотами.
Билет 24
1) Биологическое значение и структуры кетоновых тел. Синтез кетоновых тел в печени; регуляция синтеза. Представление о кетонемии, кетонурии и кетоацидозе.
*
Э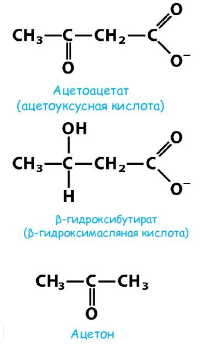 нергетическое
значение: скелетные и сердечные мышцы,
мозг и другие внепеченочные ткани
окисляют кетоновые тела. Синтетическое:
к. тела необходимы для образования
миелиновых оболочек нервов и белого
вещества головного мозга.
**
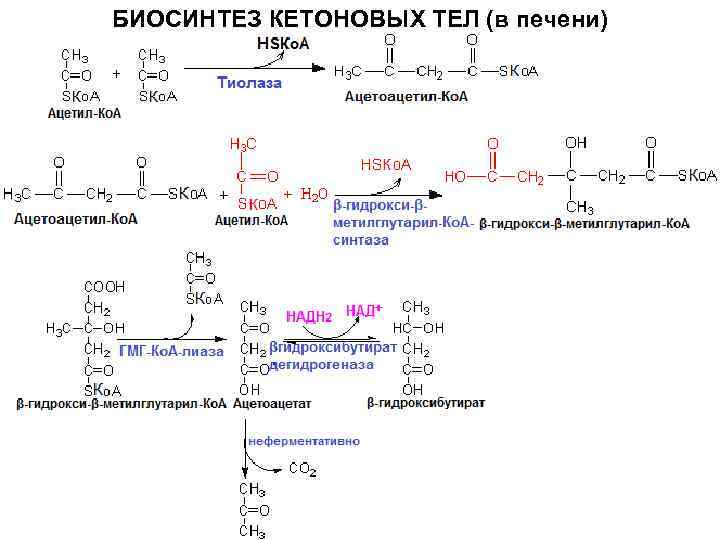 Регуляция
синтеза кетоновых тел. ГМГ-КоА-синтаза
– регуляторный фермент. Способы
регуляции: Индукция синтеза фермента
под действием глюкагона и адреналина.
Аллостерическая регуляция: ингибируется
высокими HS-KoA;
если поступление ЖК в клетки печени
повышается, то HS-KoA
связывается с ними, ГМГ-КоА-синтетаза
активна; если поступление ЖК снижается,
то повышение HS-KoA
ингибирует фермент.
*** Кетонемия – повышение концентрации кетоновых тел в крови выше нормы (более 2,5мг%). Причины: увеличение концентрации ацетил-Коа (усиленное расщепление липидов); уменьшение концентрации оксалоацетата (при отсутствии углеводов или нарушении их использования оксалоацетат расходуется на образование глюкозы). Наблюдается при: голодании, сахарном диабете.
Кетонурия — выявление в моче кетоновых тел. Появляются в моче при нарушении обена (углеводов, жиров, белков), ктр сопровождается увеличением кетогенеза в тканях и накопление кетоновых тел в крови. Наблюдается при: сахарный диабет, углеводное голодание, истощение, тяежлые токсикозы, желудочно-кишечные расстройства.
Кетоацидоз – значительное повышение кетоновых тел в крови и нарушение кислотно-щелочного равновесия. Наблюдаются при: воспалительных процессах, обострениях хронических заболеваний, инфекционных болезней, хирургические вмешательства, травмы, нарушения режима лечения, неисправность в системах введения инсулина, эмоциональные стрессовые ситуации, беременность. Ведущую роль в патогенезе кетоацидоза играет абсолютная инсулиновая недостаточность, приводящая к снижению утилизации глюкозы инсулинзависимыми тканями и, соответственно гипергликемии, и тяжелому энергетическому голоду в них. 2. Биохимические механизмы адаптации к голоданию, типы голодания. Фазы полного голодания. Изменение гормонального статуса и метаболизма при голодании Виды голодания: 1) абсолютное [при отсустствии пищи и воды]; 2) полное [прекращение получение пищи, но с приёмом воды]; 3) неполное [количественное недоедание, равномерный дефицит БЖУ в рационе]; 4) частичное [качественное недоедание, недостаточное потребление одного или нескольких необходимых пищ.вещ-в].
Ферментная адаптация при полном голодании: падает активность больш-ва ферментов (глюкокиназы, гексокиназы, НАДФ-зависимых ферментов), что ведет к снижению интенсивности углеводного обмена. Резко снижается секреция ферментов в пищев.тракте, подавляется активность пепсина, гастриксина, амилазы, липазы (вследствие чего атрофируются пищеварительные железы) – полное выключение функции пищеварения, ферментная дезадаптация. Для реабилитации ЖКТ нужен длительный период времени, важным компонентом явл. его ферментная реадаптация.
Фазы полного голодания.
Первая фаза следует за постабсорбтивным периодом и продолжается примерно сутки. За это время исчерпываются запасы гликогена. Концентрация инсулина в крови уменьшена в 10 – 15 раз по сравнению с периодом пищеварения, а концентрации глюкагона и кортизола повышены. Это приводит к увеличению скорости мобилизации жиров и скорости глюконеогенеза из аминокислот и глицерола. Концентрация глюкозы в крови находится на уровне нижней границы нормы за счет глюконеогенеза.
Вторая фаза длится примерно неделю. В это период продолжается мобилизация липидов из жировой ткани, в крови повышается концентрация жирных кислот примерно в 2 раза по сравнению с абсорбтивным периодом. Кроме того, активируется синтез кетоновых тел в печени, что приводит к кетонемии. В результате декарбоксилирования избытков ацетоацетата из него образуется ацетон, который не используется организмом и выводится через легкие. Это приводит к появлению запаха ацетона изо рта и от кожи голодающего человека (на 3-й – 4-й день голодания). В этой фазе энергетические потребности мышц и органов удовлетворяются за счет жирных кислот и кетоновых тел. Так как концентрация инсулина в крови при голодании очень низкая, то глюкоза в мышечные клетки не попадает. В этих условиях потребителями глюкозы становятся только инсулинонезависимые клетки, в первую очередь, клетки головного мозга. При этом часть его энергетических потребностей обеспечивается кетоновыми телами. За счет распада тканевых белков продолжается глюконеогенез. К концу первой недели голодания потребление кислорода уменьшается на 40%, что приводит к снижению интенсивности обмена веществ.
Третья фаза голодания продолжается несколько недель. Скорость распада белков стабилизируется на уровне 20 г/сутки. При этом образуется примерно 5 г мочевины в сутки, в то время как при обычном питании – 20 – 25 г мочевины в сутки.
Во все фазы голодания будет отрицательный азотистый баланс, так как поступление азота отсутствует. Поскольку постепенно скорость распада белков будет уменьшаться, это приведет и к уменьшению скорости глюконеогенеза. В этой фазе главным источником энергии для головного мозга являются кетоновые тела. По мере увеличения продолжительности голодания нарастает атрофия тканей: через 4 – 8 недель голодания масса сердечной мышцы и мозга уменьшаются на 3 – 4%, скелетных мышц – на 1/3, а печени – вдвое. 3. Танкираза: роль в образовании активной теломеразы. Танкираза – фермент, связанный с белком теломерного комплекса 1. Активность танкиразы характерна для раковых клеток. Действие танкиразы аналогично действию дифтерийного
токсина, т.е. нарушение функции белков путем их АТФ-рибозилирования.
Задача:
У больного наблюдается желтушность кожных покровов и склер, головокружение. Селезёнка увеличена. Анализ крови: эритроциты – 2,6×10¹²/л; ретикулоциты – 18%; общий билирубин – 65 мкмоль/л; прямая фракция – 2 мкмоль/л.
У пациента совокупности приведённых признаков повышен распад эритроцитов (гемолиз), что привело к избыточному образованию неконъюгированного билирубина, вызвавшего желтушную окраску кожи и слизистых оболочек. Состояние называется гемолитическая желтуха. Причиной гемолитической желтухи может быть любой фактор, приводящий к гемолизу: наследственные дефекты структуры и ферментного аппарата эритроцитов, отравления гемолитическими ядами, переливание несовместимой крови и т.д.
Билет 25
Схема синтеза глицерофосфолипидов. Представление о роли лецитина в функционировании сурфактанта легкого.
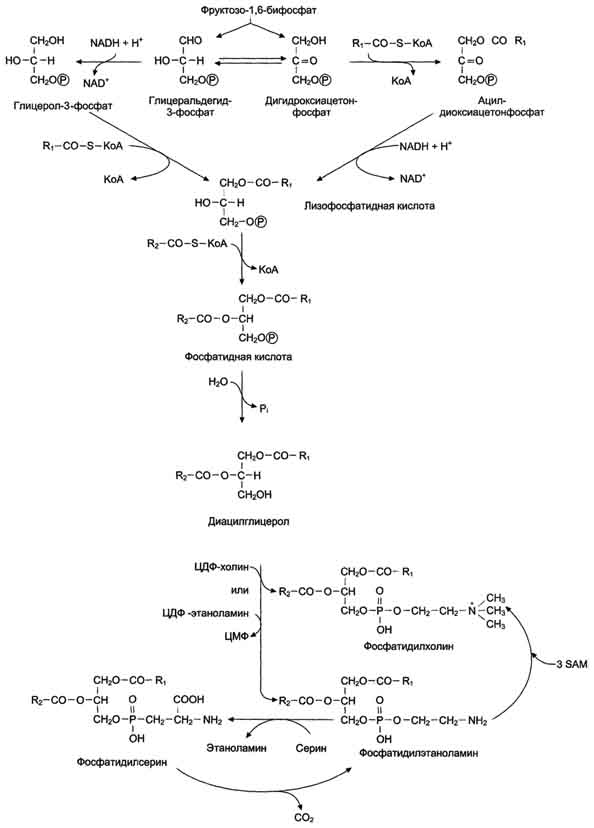
Фосфолипиды лецитина являются «строительным материалом» для лёгочного сурфактанта — смеси веществ, выстилающих изнутри лёгочные альвеолы. Сурфактант обеспечивает нормальный газообмен в лёгких: кислород попадает в кровь, а углекислый газ удаляется из крови. Нарушение этого процесса ведёт к гипоксии организма, и лецитин способен предотвратить её развитие.
2. Кальцитриол: химическая природа, этапы синтеза, механизм действия, органы-мишени, биологические эффекты. Представление о заболевании «рахит».
Хим.природа: стероидная природа, активный метаболит витамина D3. Этапы синтеза: 1) в коже под влиянием у\ф-вых лучей из провитамина образуется витамин D3 (холекальциферол). 2) в печени, D3 транспортируется кровью и в ЭПС гепатоцитов происходит его гидроксилирование по 25-му атому углерода с образованием 25(OH)D3, ктр поступает в кровь и циркулирует в связи с α-глобулином. 3) в почках, где в митохондриях клеток проксимальных канальцев происходит второе гидроксилирование и образуются два соединения: l,25-(OH)2-D (активная форма витамина D3, обладает мощным регуляторным влиянием на обмен кальция в организме и называется кальцитриолом) и 24,25-(OH)2-D (обладает способностью угнетать секрецию паратирина по принципу обратной связи).
Мех.дей-я: цитозольный. Органы-мишени: в тонком кишечнике, почках и костной ткани. Биологич.эфф-ты: в стенке тонкого киш-ка стимулирует синтез кальций-связывающего белка, ктр способствует связыванию белка; минерализация «молодой» костной ткани за счет усиления остеокластной резорбции «старой»;в почках повышает реабсорбцию кальция и фосфатов.
Рахит: заболевание детского возраста, связанное с недостаточной минерализацией костной ткани. Нарушение минерализации кости - следствие дефицита кальция. Причины: недостаток витамина D3 в пищевом рационе, нарушение всасывания витамина D3 в тонком кишечнике, снижение синтеза предшественников кальцитриола из-за недостаточного времени пребывания на солнце. => снижение всасывания кальция в кишечнике и снижение его концентрации в крови, стимуляция секреции паратгормона и вследствие этого мобилизация ионов кальция из кости.
3. Синтез пуриновых нуклеотидов.
1) Синтез 5'-фосфорибозиламина. Первая р-ия синтеза пуринов заключается в активации углерода в положении С1 рибозо-5-фосфата, что достигается синтезом 5-фосфорибозил-1-дифосфата (ФРДФ). Вторая реакция – это перенос NH2-группы глутамина на активированный атом С1 с образованием 5'-фосфорибозиламина. 2) Синтез инозинмонофосфата. 5-фосфорибозиламин вовлекается в девять реакций, и в результате образуется первый пуриновый нуклеотид – инозинмонофосфорная кислота (ИМФ). Источниками атомов пуринового кольца являются глицин, аспартат, еще одна молекула глутамина, углекислый газ и производные тетрагидрофолиевой кислоты (ТГФК). Затрачивается 6 молекул АТФ. 3) Синтез аденозинмонофосфата и гуанозинмонофосфата. Гуанозинмонофосфат (ГМФ) образуется в двух реакциях – сначала ИМФ окисляется ИМФ-дегидрогеназой до ксантозилмонофосфата, источником кислорода является вода, акцептором водорода – НАД. После этого – ГМФ-синтетаза, ктр использует универсальный клеточный донор NH2-групп – глутамин, источником энергии для реакции служит АТФ. Аденозинмонофосфат (АМФ) также образуется в двух реакциях, но в качестве донора NH2-группы выступает аспарагиновая кислота. В первой, аденилосукцинат-синтетазной, реакции на присоединение аспартата используется энергия распада ГТФ, во второй реакции аденилосукцинат-лиаза производит удаление части аспарагиновой кислоты в виде фумарата.4) Образование нуклеозидтрифосфатов АТФ и ГТФ. Синтез ГТФ осуществляется в 2 стадии посредством переноса макроэргических фосфатных групп от АТФ. Синтез АТФ происходит несколько иначе. АДФ из АМФ образуется также за счет макроэргических связей АТФ. Для синтеза же АТФ из АДФ в митохондриях есть фермент АТФ-синтаза, образующий АТФ в реакциях окислительного фосфорилирования.
Задача. При обследовании пациента, поступившего в стационар с подозрением на вирусный гепатит, обнаружено, что активность фермента АЛТ в сыворотке крови превышает нормальный уровень в 10 раз (норма – 0,1-0,45 мммоль/л×час). АЛТ– цитоплазматический фермент, повышение его активности в плазме крови свидетельствует о синдроме цитолиза, в частности разрушении клеток печени, что характерно для вирусного гепатита