Материал: Voprosy_s_otvetami_na_ekz_po_fize
Рфильтр. = Ргидр. - (Ронк. +Рмочи).
Таким образом, фильтрационное давление составляет:
70 - (30 + 20) = 20 мм рт.ст.
В полость капсулы из капилляров фильтруется вода и все растворенные в плазме вещества, за исключением крупномолекулярных соединений. Неорганические соли, органические соединения, такие, как мочевина, мочевая кислота, глюкоза, аминокислоты и др. свободно проходят в полость капсулы. Белки с высокой молекулярной массой в норме не проходят в полость капсулы и остаются в крови. Жидкость, профильтровавшаяся в полость капсулы, называется первичной мочой. Почки человека за сутки образуют 150 - 180 литров первичной мочи.
Регуляция скорости клубочковой фильтрации.
Скорость клубочковой фильтрации (СКФ) зависит от ряда факторов, в том числе от величины фильтрационного давления в капиллярах клубочка. Фильтрационное давление, в свою очередь определяется величиной гидростатического давления крови в клубочковых капиллярах, которое вследствие механизмов саморегуляции (гломерулотубулярного и миогенного) почечного кровотока поддерживается на относительно постоянном уровне при колебаниях системного артериального давления от 75 до 160 мм рт. ст. (см. выше).
В то же время системные нейроэндокринные воздействия влияют на величину гидростатического давления крови в капиллярах клубочка путем изменения тонуса приносящей и выносящей артериол. Так, при повышении тонуса приносящей ар- териолы, вызываемого эндотелинами или норадреналином и адреналином (в высоких концентрациях) через стимуляцию а-адренорецепторов, количество крови, поступающее в клубочковые капилляры, снижается, гидростатическое давление крови в капиллярах клубочка падает, уменьшается величина фильтрационного давления и СКФ. При уменьшении тонуса гладких мышц приносящих артериол под влиянием оксида азота, про- стагландинов (PGE2 и PGI2) и брадикинина, а также адреналина (действующего на [3-адренорецепторы в малых и средних концентрациях) увеличивается количество крови, поступающей в капилляры клубочков, и СКФ возрастает. При повышении тонуса выносящей артериолы отток крови из клубочковых капилляров замедляется, гидростатическое давление крови в капиллярах клубочка повышается, а фильтрационное давление и СКФ возрастают. Такое избирательное влияние на тонус гладких мышц выносящих артериол оказывает ангиотензин II.
Практически все кровеносные сосуды почек обильно иннервированы постганглионарными нервными волокнами симпатического отдела автономной нервной системы. Значительное повышение тонуса центров симпатической нервной системы (например, при испуге, других стрессовых состояниях) вызывает сужение почечных сосудов, включая приносящие артериолы, и резкое уменьшение кровоснабжения почек и СКФ. Этот механизм лежит в основе существенного снижения или даже угнетения мочеобразования при сильных болевых воздействиях на организм (болевая анурия). Небольшое или умеренное повышение тонуса симпатической нервной системы оказывает незначительное воздействие на кровоток и СКФ в почках.
Локализация реабсорбции веществ в почечных канальцах. Пороговые и беспороговые вещества. Механизмы канальцевой реабсорбции. Регуляция канальцевой реабсорбции.
Различные отделы почечных канальцев отличаются по способности всасывать вещества. С помощью анализа жидкостей из различных частей нефрона были установлены состав жидкости и особенности работы всех отделов нефрона.
Пороговые и непороговые вещества.
Реабсорбция веществ зависит от их концентрации в крови. Порог выведения - та концентрация вещества в крови, при которой оно не может быть полностью реабсорбировано в канальцах и попадает в конечную мочу. Порог выведения разных веществ различен.
Пороговые вещества - это вещества, которые полностью реабсорбируются в почечных канальцах и появляются в конечной моче, только если их концентрация в крови превышает определенную величину. Пороговые - глюкоза реабсорбируется в зависимости от концентрации ее в крови. Глюкоза при повышении ее в крови от 5 до 10 ммоль/л - появляется в моче, аминокислоты, белки плазмы, витамины, ионы Na+Cl_K+Ca+.
Непороговые вещества - которые выделяются с мочой при любой концентрации их в плазме крови. Это конечные продукты обмена подлежащие удалению из организма (н-р инулин, креатинин, диодраст, мочевина, сульфаты).
Механизмы канальцевой реабсорбции.
Обратное всасывание различных веществ в канальцах обеспечивается активным и пассивным транспортом. Если вещество реабсорбируется против электрохимического и концентрационного градиентов, процесс называется активным транспортом. Различают два вида активного транспорта: первично-активный и вторично-активный. Первично-активным транспорт называется в том случае, когда происходит перенос вещества против электрохимического градиента за счет энергии клеточного метаболизма. Примером служит транспорт ионов Na+, который происходит при участии фермента Na+,K+-АТФазы, использующей энергию АТФ. Вторично-активным называется перенос вещества против концентрационного градиента, но без затраты энергии клетки непосредственно на этот процесс; так реабсорбируются глюкоза, аминокислоты. Из просвета канальца эти органические вещества поступают в клетки проксимального канальца с помощью специального переносчика, который обязательно должен присоединить ион Na+. Этот комплекс (переносчик + органическое вещество + Na+) способствует перемещению вещества через мембрану щеточной каемки и его поступлению внутрь клетки. Движущей силой переноса этих веществ через апикальную плазматическую мембрану служит меньшая по сравнению с просветом канальца концентрация натрия в цитоплазме клетки. Градиент концентрации натрия обусловлен непрестанным активным выведением натрия из клетки во внеклеточную жидкость с помощью Na+,К+-АТФазы, локализованной в латеральных и базальной мембранах клетки.
Реабсорбция воды, хлора и некоторых других ионов, мочевины осуществляется с помощью пассивного транспорта —по электрохимическому, концентрационному или осмотическому градиенту. Примером пассивного транспорта является реабсорбция в дистальном извитом канальце хлора по электрохимическому градиенту, создаваемому активным транспортом натрия. По осмотическому градиенту транспортируется вода, причем скорость ее всасывания зависит от осмотической проницаемости стенки канальца и разности концентрации осмотически активных веществ по обеим сторонам его стенки. В содержимом проксимального канальца вследствие всасывания воды и растворенных в ней веществ растет концентрация мочевины, небольшое количество которой по концентрационному градиенту реабсорбируется в кровь. Достижения в области молекулярной биологии позволили установить строение молекул ионных и водных каналов (аквапоринов) рецепторов, аутакоидов и гормонов и тем самым проникнуть в сущность некоторых клеточных механизмов, обеспечивающих транспорт веществ через стенку канальца. Различны свойства клеток разных отделов нефрона, неодинаковы свойства цитоплазматической мембраны в одной и той же клетке.
Клеточный механизм реабсорбции ионов рассмотрим на примере Na+. В проксимальном канальце нефрона всасывание Na+ в кровь происходит в результате ряда процессов, один из которых - активный транспорт Na+ из просвета канальца, другой - пассивная реабсорбция Na+ вслед за активно транспортируемыми в кровь как ионами гидрокарбоната, так и Cl-. При введении одного микроэлектрода в просвет канальцев, а второго - в околоканальцевую жидкость было выявлено, что разность потенциалов между наружной и внутренней поверхностью стенки проксимального канальца оказалась очень небольшой — около 1,3 мВ, в области дистального канальца она может достигать - 60 мВ. Просвет обоих канальцев электроотрицателен, а в крови (следовательно, и во внеклеточной жидкости), концентрация Na+ выше, чем в жидкости, находящейся в просвете этих канальцев, поэтому реабсорбция Na+ осуществляется активно против градиента электрохимического потенциала. При этом из просвета канальца Na+ входит в клетку по натриевому каналу или при участии переносчика. Внутренняя часть клетки заряжена отрицательно, и положительно заряженный Na+ поступает в клетку по градиенту потенциала, движется в сторону базальной плазматической мембраны, через которую натриевым насосом выбрасывается в межклеточную жидкость; градиент потенциала на этой мембране достигает 70-90 мВ. Имеются вещества, которые могут влиять на отдельные элементы системы реабсорбции Na+. Так, натриевый канал в мембране клетки дистального канальца и собирательной трубки блокируется амилоридом и триамтереном, в результате чего Na+ не может войти в канал. В клетках имеется несколько типов ионных насосов. Один из них представляет собой Na+,К+-АТФазу. Этот фермент находится в базальной и латеральных мембранах клетки и обеспечивает транспорт Na+ из клетки в кровь и поступление из крови в клетку К+. Фермент угнетается сердечными гликозидами, например строфантином, уабаином. В реабсорбции гидрокарбоната важная роль принадлежит ферменту карбоангидразе, ингибитором которого является ацетазоламид - он прекращает реабсорбцию гидрокарбоната, который экскретируется с мочой.
Фильтруемая глюкоза практически полностью реабсорбируется клетками проксимального канальца, и в норме за сутки с мочой выделяется незначительное ее количество (не более 130 мг). Процесс обратного всасывания глюкозы осуществляется против высокого концентрационного градиента и является вторично-активным. В апикальной (люминальной) мембране клетки глюкоза соединяется с переносчиком, который должен присоединить также Na+, после чего комплекс транспортируется через апикальную мембрану, т.е. в цитоплазму поступают глюкоза и Na+. Апикальная мембрана отличается высокой селективностью и односторонней проницаемостью и не пропускает ни глюкозу, ни Na+ обратно из клетки в просвет канальца. Эти вещества движутся к основанию клетки по градиенту концентрации. Перенос глюкозы из клетки в кровь через базальную плазматическую мембрану носит характер облегченной диффузии, a Na+, как уже отмечалось выше, удаляется натриевым насосом, находящимся в этой мембране.
Аминокислоты почти полностью реабсорбируются клетками проксимального канальца. Имеется не менее 4 систем транспорта аминокислот из просвета канальца в кровь, осуществляющих реабсорбцию: нейтральных, двуосновных, дикарбоксильных аминокислот и иминокислот. Слабые кислоты и основания могут существовать в зависимости от рН среды в двух формах - неионизированной и ионизированной. Клеточные мембраны более проницаемы для неионизированных веществ. Если значение рН канальцевой жидкости сдвинуто в кислую сторону, то основания ионизируются, плохо всасываются и экскретируются с мочой. Процесс «неионной диффузии» влияет на выделение почками слабых оснований и кислот, барбитуратов и других лекарственных веществ.
Небольшое количество профильтровавшегося в клубочках белка реабсорбируется клетками проксимальных канальцев. Выделение белков с мочой в норме составляет не более 20-75 мг в сутки, а при заболеваниях почек оно может возрастать до 50 г в сутки. Увеличение выделения белков с мочой (протеинурия) может быть обусловлено нарушением их реабсорбции либо увеличением фильтрации.
В отличие от реабсорбции электролитов, глюкозы и аминокислот, которые, проникнув через апикальную мембрану, в неизмененном виде достигают базальной плазматической мембраны и транспортируются в кровь, реабсорбция белка обеспечивается принципиально иным механизмом. Белок попадает в клетку с помощью пиноцитоза. Молекулы профильтровавшегося белка адсорбируются на поверхности апикальной мембраны клетки, при этом мембрана участвует в образовании пиноцитозной вакуоли. Эта вакуоль движется в сторону базальной части клетки. В околоядерной области, где локализован пластинчатый комплекс (аппарат Гольджи), вакуоли могут сливаться с лизосомами, обладающими высокой активностью ряда ферментов. В лизосомах захваченные белки расщепляются и образовавшиеся аминокислоты, дипептиды удаляются в кровь через базальную плазматическую мембрану.
Регуляция канальцевой реабсорбции.
Регуляция канальцевой реабсорбции осуществляется как нервным, так и, в большей мере, гуморальным путем.
Нервные влияния реализуются преимущественно симпатическими проводниками и медиаторами через бета-адренорецепторы мембран клеток проксимальных и дистальных канальцев. Симпатические эффекты проявляются в виде активации процессов реабсорбции глюкозы, ионов натрия, воды и анионов фосфатов и осуществляются через систему вторичных посредников (аденилатциклаза — цАМФ). Нервная регуляция кровообращения в мозговом веществе почки увеличивает или уменьшает эффективность сосудистой противоточной системы и концентрирование мочи. Сосудистые эффекты нервной регуляции также опосредуются через внутри-почечные системы гуморальных регуляторов — ренин-ангиотензиновую, кининовую, простагландины и др.
Основным фактором регуляции реабсорбции воды в дистальных отделах нефрона является гормон вазопрессин, называвшийся ранее антидиуретическим гормоном. Этот гормон образуется в супраоптическом и паравен-трикулярных ядрах гипоталамуса, по аксонам нейронов транспортируется в нейрогипофиз, откуда и поступает в кровь. Влияние вазопрессина на проницаемость эпителия канальцев обусловлено наличием рецепторов к гормону, относящихся к V2-типу, на поверхности базолатеральной мембраны клеток эпителия. Образование гормон-рецепторного комплекса влечет за собой через посредство GS-белка и гуанилового нуклеотида активацию аденилатциклазы и образование цАМФ, активацию синтеза и встраивания аквапоринов 2-го типа («водных каналов») в апикальную мембрану клеток эпителия собирательных трубочек. Перестройка ультраструктур мембраны и цитоплазмы клетки ведет к образованию внутриклеточных специализированных структур, переносящих большие потоки воды по осмотическому градиенту от апикальной к базолатеральной мембране, не позволяя транспортируемой воде смешиваться с цитоплазмой и препятствуя набуханию клетки. Такой трансцеллюлярный транспорт воды через клетки эпителия реализуется вазопрессином в собирательных трубочках. Кроме того, в дистальных канальцах вазопрессин обусловливает активацию и выход из клеток гиалуронидаз, вызывающих расщепление гликозаминогликанов основного межклеточного вещества, тем самым способствуя межклеточному пассивному транспорту воды по осмотическому градиенту.
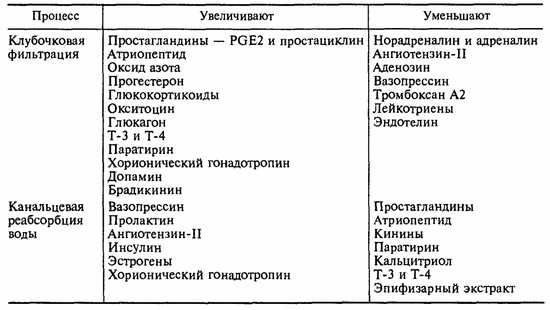
Канальцевая реабсорбция воды регулируется и другими гормонами (табл. 14.1). По механизму действия все гормоны, регулирующие реабсорбцию воды, делятся на шесть групп:
• повышающие проницаемость мембран дистальных отделов нефрона для воды (вазопрессин, пролактин, хорионический гонадотропин);
• меняющие чувствительность клеточных рецепторов к вазопрессину (паратирин, кальцитонин, кальцитриол, простагландины, альдостерон);
• меняющие осмотический градиент интерстиция мозгового слоя почки и, соответственно, пассивный осмотический транспорт воды (паратирин, кальцитриол, тиреоидные гормоны, инсулин, вазопрессин);
• меняющие активный транспорт натрия и хлорида, а за счет этого и пассивный транспорт воды (альдостерон, вазопрессин, атриопептид, прогестерон, глюкагон, кальцитонин, простагландины);
• повышающие осмотическое давление канальцевой мочи за счет нере-абсорбированных осмотически активных веществ, например глюкозы (контринсулярные гормоны);
• меняющие кровоток по прямым сосудам мозгового вещества и, тем самым, накопление или «вымывание» осмотически активных веществ из интерстиция (ангиотензин-П, кинины, простагландины, паратирин, вазопрессин, атриопептид).
Локализация секреции веществ в почечных канальцах. Механизмы канальцевой секреции. Регуляция канальцевой секреции.
Механизмы канальцевой секреции.
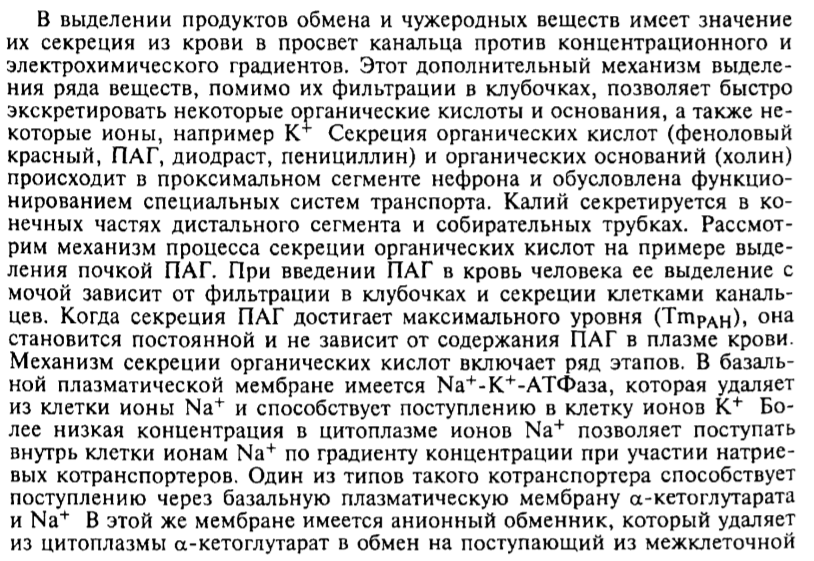
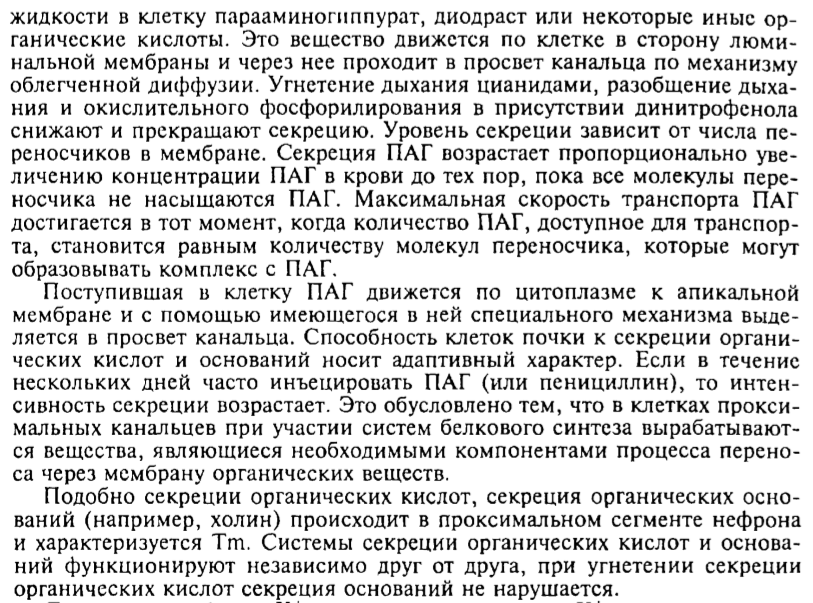
Канальцевая секреция представляет собой преимущественно активный процесс, происходящий с затратами энергии для транспорта веществ против концентрационного или электрохимического градиентов. В эпителии канальцев существуют разные системы транспорта (переносчики) для секреции органических кислот и органических оснований. Это доказывается тем, что при угнетении секреции органических кислот пробенецидом секреция оснований не нарушается.
Транспортные секретирующие механизмы обладают свойством адаптации, т.е. при длительном поступлении вещества в кровоток количество транспортных систем за счет белкового синтеза постепенно увеличивается. Данный факт необходимо учитывать, например, при лечении пенициллином. Так как очищение крови от него постепенно возрастает, требуется увеличение дозировки для поддержания необходимой терапевтической концентрации.
Так как при невысоких концентрациях в крови ПАГ или диодраста они полностью удаляются из крови при однократном прохождении через почку путем секреции клетками проксимальных канальцев, это позволило, определяя клиренс этих веществ, получить значение объема плазмы крови, которое протекает по сосудам коркового вещества почки, т.е. эффективного почечного плазмотока. Зная гематокрит, можно рассчитать и величину коркового кровотока в почке.
Кроме того, канальцевый эпителий синтезирует и секретируют вещества, образующиеся в самих клетках эпителия, например, аммиак (путем дезаминирования некоторых аминокислот), гиппуровую кислоту (из бензойной кислоты и гликокола), которые выделяются с мочой, а также ренин, простагландины, глюкозу почек, поступающие в кровь.
Регуляция канальцевой секреции.
Регуляция канальцевой секреции осуществляется с помощью гормонов и симпатической нервной системы. Эффекты нервной регуляции реализуются за счет изменений кровотока в постгломерулярных капиллярах почки, т. е. транспорта веществ кровью к секретирующим клеткам, и влияния на энергетический обмен в клетках эпителия канальцев. Гормонами, усиливающими проксимальную канальцевую секрецию органических веществ за счет метаболических эффектов, являются соматотропин аденогипофиза, йодсодержащие гормоны щитовидной железы и андрогены
Осмотическое разведение и концентрирование мочи. Функционирование поворотно-противоточной множительной системы.
Итак, после прохождения через проксимальные канальцы канальцевая жидкость поступает в петлю Генле и дистальный сегмент нефрона. С их участием связана одна из важнейших гомеостатических функций почки – осмотическое концентрирование мочи. Дело в том, что почки человека в нормальных условиях, как правило, производят гиперосмотическую по отношению к плазме крови мочу, т.е. работают в режиме концентрирования: осмолярность окончательной мочи колеблется от 600 до 900 мосм/л, т.е. в 3 раза может превышать осмолярность плазмы. Способность почки концентрировать мочу и экономить тем самым воду, возникла в эволюции с выходом животных на сушу, что позволило им перейти из водной среды обитания к наземному образу жизни и продолжить путь эволюционного развития в новом более перспективном направлении.
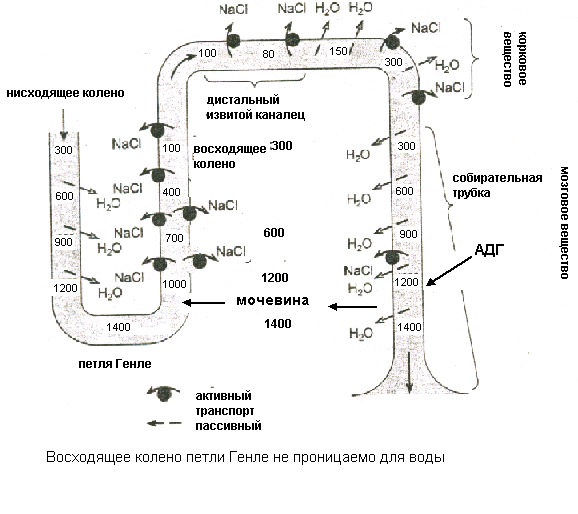
Рисунок 10 Взаимодействие петли Генле и собирательной
трубки при образовании концентрированной мочи.
В процессе осмотического концентрирования мочи принимают участие: петля Генле, дистальный каналец, собирательная трубка, сосуды и интерстиций мозгового вещества, которые функционируют как единая поворотно - противоточно-множительная система. Мы уже упоминали, что в концентрировании мочи участвуют юкстамедуллярные нефроны с длинными петлями Генле, которые, как и собирательные трубки, глубоко проникают в мозговой слой почки.
Сразу «раскроем карты» - процесс окончательного концентрирования мочи происходит в собирательных трубках, а условия для этого создаются работой всей поворотно – противоточно-множительной системы. Эта система создает гиперосмолярность мозгового вещества и при действии антидиуретического гормона (АДГ) заставляет воду переходить из собирательной трубки в интерстиций, а затем в кровеносные сосуды мозгового вещества, в результате чего образуется концентрированная моча. Ключевым вопросом при осуществлении концентрирования мочи является вопрос о том, каким образом интерстициальная жидкость мозгового вещества становится гиперосмолярной. Попытаемся ответить на него. Следите за нашими рассуждениями по рис.10: из проксимального канальца жидкость, изоосмотическая плазме крови, с концентрацией 300 мосм/л ,поступает в тонкое нисходящее колено петли Генле и, продвигаясь по нему, начинает терять воду; в результате ее осмотическая концентрация прогрессивно нарастает и на изгибе петли в сосочке достигает своего максимума (1400мосм/л). Затем она поворачивает и течет по восходящему колену в противоположном направлении (отсюда название поворотно-противоточная система), при этом происходит ее разбавление и уменьшение осмолярности до 100 мосм/л.Эти процессы обусловлены разными функциональными свойствами стенок этих участков петли: «маховиком» этой системы является толстый восходящий отдел петли, который совершенно непроницаем для воды, но активно реабсорбирует Nа и Cl. В апикальной мембране клеток этого отдела транспорт Nа осуществляется одновременно с ионами К и двумя ионами Cl с помощью Nа, К,2Cl, котранспортера. Через базальную мембрану клеток Nа переносится активно.
NаCl поступает в интерстиций и обуславливает выход воды из нисходящего колена петли, стенки которого, напротив, обладают высокой проницаемостью для воды, но не пропускает ионы Nа. Таким образом, реабсорбция хлорида натрия восходящей частью петли “отвечает” за реабсорбцию воды в нисходящей части. Давайте разберем это сначала на простой схеме (рис.11).
Представим себе, что петля Генле заполнена неподвижной жидкостью, которая поступила из проксимального канальца, тогда осмотическая концентрация в любой части петли Генле равна 300 мосм/л. (1). Теперь допустим (2), что активная транспортная система в восходящей части петли осуществляет реабсорбцию хлорида натрия в интерстициальное пространство до тех пор, пока не установится предельный градиент (скажем 200 мосм/л) между жидкостью, находящейся в восходящем колене петли Генле и жидкостью интерстициального пространства. Вспомните, что стенки этой части петли непроницаема для воды.
Обратите внимание на то, что теперь существует разница в осмолярности между жидкостью в нисходящем колене (300 мосм/л) и окружающей каналец интерстициальной жидкостью (400 мосм/л). Поскольку стенки нисходящего колена петли хорошо проницаемы для воды, вода пассивно выходит из его просвета в интерстициальное пространство, в котором существует более высокая осмолярность, возникшая вследствие реабсорбции хлорида натрия в восходящем колене, и осмолярность жидкости в нисходящем колене увеличивается до 400 мосм/л. (3).