Материал: Voprosy_s_otvetami_na_ekz_po_fize
Теперь усложним схему: пусть жидкость в петле не стоит на месте, а непрерывно движется, тогда по мере продвижения вниз по нисходящему колену из нее уходит все больше воды, концентрация внутриканальцевой жидкости все больше увеличивается и, поскольку устанавливается осмотическое равновесие, концентрация интерстициальной жидкости увеличивается на ту же величину (200 мосм/л). Градиент в 200 мосм/л, так называемый поперечный или горизонтальный градиент, поддерживается на каждом из «этажей» мозгового вещества.
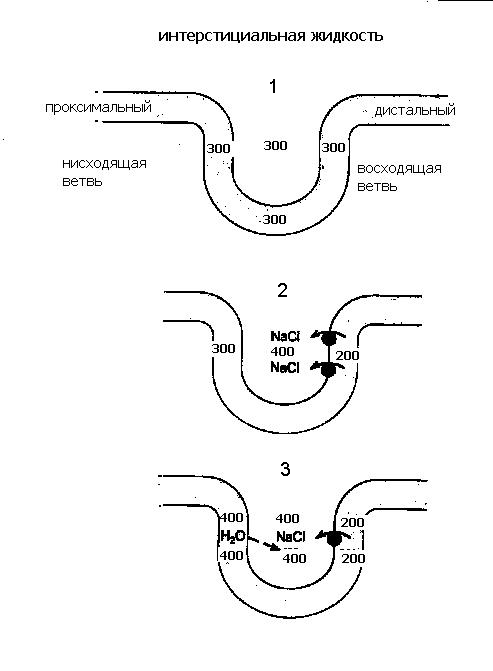
Рисунок 11 Схема взаимодействия нисходящего и восходящего колена в процессе концентрирования канальцевой жидкости.
Таким образом, между соседними участками нисходящего и восходящего колена разность осмотической концентрации невелика, но по ходу петли и длине почечного сосочка – по вертикали – этот одиночный эффект нарастает, суммируется (умножается), и в результате формируется значительно больший перепад осмотического давления – так называемый корково-сосочковый вертикальный осмотический градиент.
300 мосм/л кора
60 0
мосм/л
900 мосм/л
1200 мосм/л
1400 мосм/л сосочек
Теперь Вам понятно, почему система называется ещё и множительная. Таким образом, нисходящее и восходящее колено петли тесно соприкасаются друг с другом, расположены параллельно, оказывают друг на друга влияние и функционируют как единый сопряженный механизм – противоточно-поворотно-множительная система. Благодаря работе этой системы в интерстиции мозгового вещества создается корково-сосочковый осмотический градиент.
Следует отметить, что осмолярность интерстиция создается не только ионами хлорида натрия. Примерно половина осмолярности обусловлена присутствием в нем мочевины. У мочевины имеется свой кругооборот в почке, в частности из собирательной трубки она пассивно диффундирует в интерстиций мозгового вещества и тем самым, увеличивает его осмолярность.
Прямые сосуды мозгового вещества, подобно коленам петли Генле, тоже образуют поворотно-противоточную систему. Они расположены параллельно петлям Генле и в них происходят такие же изменения осмолярности, что и в петле. Это сохраняет продольный осмотический градиент в мозговом веществе, не позволяя ему вымываться.
Вернемся к нашим рассуждениям.
Приступая к изучению работы концентрирующего механизма почки, мы поставили перед собой задачу выяснить, каким образом в интерстиции мозгового вещества создается зона гиперосмолярности, и решили её. Но пока мы не решили проблему концентрирования мочи, которую поставили перед почкой: по мере того, как канальцевая жидкость двигалась по нисходящему колену, ее осмолярность нарастала и в районе изгиба достигала 1400 мосм/л, так же как и осмолярность интерстиция, но по мере движения по восходящему колену она вновь разбавилась до 100 мосм/л. Далее в дистальном канальце происходит реабсорбция NаCl, воды и др. веществ и осмотическая концентрация вновь становится – 300 мосм/л, но по-прежнему канальцевая жидкость изосмотична крови,т.е.,в петле концентрирование не произошло. А где же будет образовываться концентрированная моча?
Помните, мы вначале “раскрыли карты”. Да, решающим обстоятельством станет то, что из дистального канальца жидкость поступает в собирательную трубку, где и будет происходить формирование окончательной мочи и процесс ее концентрирования. Неслучайно собирательные трубки расположены параллельно петлям Генле и прямым сосудам. Они транзитом проходят через все зоны почки и на всем протяжении окружены интерстицием с прогрессивно нарастающим в направлении от коры к сосочку осмотическим давлением. Обратите внимание на рисунок 10, осмолярность интерстициальной жидкости на каждом уровне идентична этой величине в нисходящем колене и СТ. Другими словами вокруг СТ на каждом “этаже” мозгового вещества имеется горизонтальный осмотический градиент в 200 мосм/л, а по вертикали - мощный корково-сосочковый осмотический градиент, созданный поворотно - противочной системой петли Генле. Таким образом, можно сказать, что петля Генле «работает» на собирательную трубку, создавая в интерстиции мозгового вещества зону гиперосмии. Это и будет та сила, которая способна вытянуть воду из собирательной трубки и произвести концентрирование мочи. Когда канальцевая жидкость поступает в собирательную трубку, ее осмолярность находится на том же уровне, что и осмолярность интерстициальной жидкости в этой зоне почки. В районе сосочка величина осмолярности достигает максимума (у человека она равна 1400 мосм/л), поэтому максимальная осмотическая концентрация мочи у человека тоже может достигать 1400 мосм/л.
Система поворотно-противоточная
— физиологический механизм реабсорбции воды и ионов натрия в петле нефрона, основанный на различной проницаемости для них стенок восходящего и нисходящего колен петли и заключающийся в том, что реабсорбция воды в восходящем колене способствует реабсорбции натрия в нисходящем и наоборот.
Роль почек в осморегуляции и волюморегуляции.
Роль почек в осморегуляции.
Почки являются основным эффекторным органом системы осморегуляции. Они обеспечивают выделение избытка воды в виде гипотонической мочи при поступлении воды в организм или экономят воду и экскретируют мочу, гипертоническую по отношению к плазме крови, при обезвоживании. При избыточном содержании воды в организме концентрация растворенных осмотически активных веществ в крови снижается и ее осмотическое давление падает. Это уменьшает активность центральных осморецепторов, расположенных в области супраоптического ядра гипоталамуса, а также периферических осморецепторов, имеющихся в печени, почке, селезенке и ряде других органов. Уменьшение активности осморецепторов снижает секрецию антидиуретического гормона (АДГ) нейрогипофизом и приводит к возрастанию выделения воды почкой
При обезвоживании организма, при введении в сосудистое русло гипертонического раствора хлористого натрия увеличивается концентрация осмотически активных веществ в плазме крови, возбуждаются осморецепторы, стимулируются нейроны супраоптического ядра, усиливается секреция АДГ, возрастает реабсорбция воды в канальцах, уменьшается мочеотделение и выделяется осмотически концентрированная моча. Установлено, что у человека в норме при осмоляльности крови около 280 мосм/кг H2O полностью прекращается секреция АДГ и почка выделяет наибольшие количества воды. При обезвоживании когда осмоляльность крови возрастает до 295 мосм/кг Н2О, секреция АДГ достигает максимума и обнаруживается пик осмотического концентрирования мочи в почке. В эксперименте показано, что секреция АДГ возрастает при раздражении не только осморецепторов, но и специфических натриорецепторов. После введения в область III желудочка мозга гипертонического раствора NaСl наступает антидиурез, а после введения в ту же область гипертонических растворов сахара мочеотделение не уменьшается.
Осморецепторы реагируют на сдвиги концентрации осмотически активных веществ в плазме крови. При увеличении осмоляльности плазмы крови на 1% (около 3 мосм/л) концентрация аргинин—вазопрессина, являющегося антидиуретическим гормоном у человека и многих других млекопитающих, возрастает на 1 пг/мл плазмы. Повышение концентрации осмотически активных веществ в плазме на 1 мосм/кг воды вызывает благодаря выделению АДГ увеличение осмотической концентрации мочи почти на 100 мосм/кг H2O, а переход от состояния водного диуреза до максимального осмотического концентрирования мочи требует всего 10—кратного возрастания АДГ в крови — с 0,5 до 5 пг/мл.
Роль почек в волюморегуляции.
Помимо информации от осморецепторов и натриорецепторов уровень секреции АДГ зависит и от активности волюморецепторов, реагирующих на изменение объема внутрисосудистой и внеклеточной жидкости. Ведущее значение в регуляции секреции АДГ имеют те волюморецепторы, которые реагируют на изменение напряжения сосудистой стенки. В первую очередь это рецепторы левого предсердия, импульсы от которых передаются в ЦНС по афферентным волокнам блуждающего нерва. При увеличении кровенаполнения левого предсердия активируются волюморецепторы и угнетается секреция АДГ, тем самым усиливается мочеотделение. В предсердии вырабатывается гормон, увеличивающий выделение ионов Na+ почкой и получивший название атриальный натрийуретический пептид.
Рассмотрим особенности реакции почки при возбуждении волюморецепторов и осморецепторов. Активация только волюморецепторов возникает в ответ на увеличение объема внутрисосудистой жидкости при неизмененной концентрации в ней осмотически активных веществ. Это приводит к повышению экскреции солей натрия и воды. Одновременная активация волюморецепторов и осморецепторов может наступить при потреблении больших количеств воды, в этом случае в основном усиливается выведение воды. Ведущую роль в изолированном осморегулирующем рефлексе играет уменьшение секреции АДГ, в результате снижается реабсорбция воды и усиливается ее экскреция.
Увеличение объема внеклеточной жидкости, возрастание объема крови служат стимулом для волюморегулирующего рефлекса. В эксперименте адекватным раздражителем системы регуляции объема внеклеточной жидкости может служить введение в кровеносный сосуд больших количеств изотоничного плазме крови физиологического раствора. Возрастание притока крови к сердцу, растяжение стенки предсердия стимулируют волюморецепторы и секрецию из клеток предсердия атриального натрийуретического пептида. Под влиянием этого гормона усиливается выделение ионов натрия и воды почкой.
Стимуляция волюморецепторов рефлекторно изменяет характер импульсации иннервирующих почку симпатических нервов и снижает реабсорбцию натрия и воды в канальцах. Возрастание объема крови способствует растяжению афферентной артериолы клубочка. Это сопровождается изменением активности юкстагломерулярного аппарата, уменьшением секреции фермента ренина, благодаря чему снижается образование в крови из ангиотензиногена ангиотензина I. После отщепления от него двух аминокислот образуется ангиотензин II, который вызывает ряд эффектов, в том числе стимулирует секрецию альдостерона. Когда снижается количество ангиотензина, падает и поступление в кровь альдостерона, что приводит к уменьшению реабсорбции натрия в канальцах. Активация волюморегулирующего рефлекса снижает секрецию вазопрессина, тем самым уменьшается реабсорбция воды и повышается ее выделение почкой.
Роль почек в регуляции ионного состава и кислотно-основного состояния крови.
Роль почек в регуляции ионного состава крови.
Почки являются эффекторным органом системы ионного гомеостаза. В организме существуют системы регуляции баланса каждого из ионов. Рефлекторная регуляция транспорта ионов в почечных канальцах осуществляется как периферическими, так и центральными нервными механизмами.
Регуляция реабсорбции и секреции ионов в почечных канальцах осуществляется несколькими гормонами. Реабсорбция натрия возрастает в конечных частях дистального сегмента нефрона и собирательных трубочках под влиянием гормона коркового вещества надпочечника альдостерона. Этот гормон выделяется в кровь при уменьшении концентрации натрия в плазме крови и уменьшении объема циркулирующей крови. В усилении выделения натрия почкой участвует натрийуретический гормон, одним из мест образования которого является предсердие. При увеличении объема циркулирующей крови, повышении объема внеклеточной жидкости в организме усиливается секреция в кровь этого пептидного гормона.
Секрецию калия в дистальном сегменте и собирательных трубочках усиливает альдостерон. Инсулин уменьшает выделение калия. Алкалоз сопровождается усилением выделения калия, а при ацидозе калийурез уменьшается.
При уменьшении концентрации кальция в крови паращитовидные железы выделяют паратгормон, который способствует нормализации уровня кальция в крови, в частности благодаря увеличению его реабсорбции в почечных канальцах и высвобождению из кости. При гиперкальциемии стимулируется выделение в кровь клетками щитовидной железы кальцитонина, который способствует уменьшению концентрации Са2+ в плазме крови благодаря увеличению экскреции почкой и переходу Са2+ в кость.
Роль почек в регуляции кислотно-основного состояния .
Почки участвуют в поддержании постоянства концентрации Н+ в крови, экскретируя кислые продукты обмена. Активная реакция мочи у человека и животных может очень резко меняться в зависимости от состояния кислотно-основного состояния организма. Концентрация Н+ при ацидозе и алкалозе различается почти в 1000 раз, при ацидозе рН может снижаться до 4,5, при алкалозе — достигать 8,0. Это способствует участию почек в стабилизации рН плазмы крови на уровне 7,36. Механизм подкисления мочи основан на секреции клетками канальцев Н+.
Секреция Н+ создает условия для реабсорбции вместе с гидрокарбонатом равного количества Na+. Наряду с натрий-калиевым насосом и электрогенным натриевым насосом, обусловливающим перенос Na+ с С1- реабсорбция Na+ с гидрокарбонатом играет важную роль в поддержании натриевого баланса. Фильтрующийся из плазмы крови гидрокарбонат соединяется с секретированным клеткой Н+ и в просвете канальца превращается в СО2. Образование Н+ происходит следующим образом. Внутри клетки вследствие гидратации СО2 образуется Н2СО3 и диссоциирует на Н+ и НСО3-. В просвете канальца Н+ связываются не только с HCO3-, но и с такими соединениями, как двузамещенный фосфат (Na2HPO4), и некоторыми другими, в результате чего увеличивается экскреция титруемых кислот (ТА- ) с мочой. Это способствует выделению кислот и восстановлению резерва оснований в плазме крови.
При питании мясом образуется большее количество кислот и моча становится кислой, а при потреблении растительной пищи рН сдвигается в щелочную сторону. При интенсивной физической работе из мышц в кровь поступает значительное количество молочной и фосфорной кислот и почки увеличивают выделение «кислых» продуктов с мочой.
Инкреторная функция почек. Роль почек в регуляции эритропоэза и гемостаза.
Основным веществом, образующимся в эпителиоидных клетках юкстагломерулярного аппарата и обладающим гормональной активностью, является ренин. Он играет роль ключевого компонента ренин-ангиотензин-альдостероновой системы, обеспечивающей в физиологических условиях регуляцию артериального давления. Ренин имеет существенное значение в генезе артериальной гипертензии. Под влиянием ангиотензина в гипоталамусе повышается секреция АДГ.
В тесной связи с ренин-ангиотензин-альдостероновой системой в почках функционируют простагландины и калликреин-кининовая система. Терапия нестероидными противовоспалительными препаратами, блокирующими синтез простагландинов, сопровождается задержкой [Na+] в организме. Эффект ингибиторов синтеза простагландинов проявляется преобладанием вазоконстрикции приносящей артериолы и снижением клубочковой фильтрации. Имеются указания, что при патологии печени в почках продукция простагландинов снижена.
Кинины почек проявляют свой вазодилататорный эффект на уровне афферентных артериол, увеличивая почечный кровоток и гломерулярную фильтрацию. Суммарный эффект в почках проявляется увеличением диуреза и натрийуреза.
В организме человека эритропоэтин продуцируется только тканями почек и печени, причем в норме, в отсутствие анемии, он образуется только в почках (корковое вещество и наружная часть мозгового слоя). В печени (гепатоциты и клетки Купфера) продукция эритропоэтина происходит только при тяжелой гипоксии и снижении образования его в почках.
Основным стимулом для образования эритропоэтина является гипоксемия и гипоксия почечной паренхимы. Почечные хеморецепторы расположены в эндотелиальных клетках перитубулярных капилляров и венул проксимальных канальцев. Они реагируют на рО2 венозной крови в отличие от рецепторов синокаротидной зоны, контролирующих рО2 артериальной крови. При любом снижении рО2 венозной крови (повышение сродства кислорода к гемоглобину, низкое рО2 при анемиях и метгемоглобинемиях, высокая потребность тканей в кислороде при тиреотоксикозе) всегда активируется продукция эритропоэтина. Сигналом для повышения продукции эритропоэтина являются ПГ I2 и E2. Секреция эритропоэтина снижается при повышении рО2 венозной крови (нормобарическая или гипербарическая оксигенация, гипертрансфузионная полицитемия, снижение метаболизма у пациентов с гипопитуитаризмом и гипотиреозом).
Эритропоэтин облегчает переход унипотентных эритроидных предшественников в эритрон, стимулирует пролиферацию и созревание эритропоэтинчувствительных клеток. Степень чувствительности эритроидных предшественников к эритропоэтину обратно пропорциональна зрелости субпопуляции предшественников.
У больных с уремией в крови повышается содержание ингибитора эритропоэтина, а продукция самого эритропоэтина вследствие деструкции паренхимы почек резко снижается. Компенсаторно клетки печени начинают продуцировать эритропоэтин, поэтому снижение продукции эритропоэтина почками непропорционально степени анемии при уремии.
В почках вырабатывается тканевой активатор плазминогена урокиназа. Она расщепляет плазминоген до плазмина и тем самым определяет фибринолитическую активность канальцевой жидкости. Необходимость дополнительного фибринолитического фермента в почках обусловлена интенсивной перфузией и необходимостью предотвратить чрезмерное образование фибрина в сосудах почек. Содержание урокиназы в моче прямо пропорционально продукции ее в почках.
Роль почек в регуляции эритропоэза и гемостаза.
Эритропоэтин, секретируемый тубулярными и перитубулярными клетками почек, является гуморальным регулятором эритропоэза. Небольшое количество гормона (10—15 %) вырабатывается в макрофагах костного мозга, купферовских клетках и гепатоцитах. В почках синтез и секреция эритропоэтина определяются уровнем обеспечения кислородом их тканей. К уровню кислорода в почечной ткани чувствителен гемсодержащий белок- цитохром b , входящий составной частью в НАДФ-зависимую оксидазу пери- и тубулярных клеток. При нормальном уровне р02 в ткани почки радикалы кислорода, продукцируемые оксидазой, прежде всего перекись водорода, препятствуют формированию в почечной ткани «индуцируемого гипоксией фактора-1 (ИГФ-1)», стимулирующего транскрипцию эритропоэтиновой иРНК и синтез эритропоэтина. При снижении кислородного обеспечения ткани почек (р02 до 20—40 мм рт. ст.) продукция оксидазой перекиси водорода уменьшается. Нарастает активация ИГФ-1 в цитозоле и его перемещение в ядро клетки, где ИГФ-1 специфически связывается с ДНК, вызывая экспрессию гена эритропоэтина.
Гипоксия почечных структур активирует также ферменты (фосфолипаза А2), ответственные за синтез простагландинов (E1 и Е2), которые через систему «аденилатциклаза—цАМФ» также усиливают синтез эритропоэтина в пери- и тубулярных клетках почек. Адреналин и норадреналин через (b2-адренорецепторы синтезирующих эритропоэтин клеток почек и систему вторичных посредников в них — цАМФ и цГМФ — вызывают усиление синтеза и секреции эритропоэтина в кровь. При гипоксии почечной ткани количество эритропоэтина возрастает в 1000 раз и более при норме 0,01—0,08 ME (международных единиц)/мл плазмы. При гематокрите, равном 40—45, количество эритропоэтина составляет 5—80 мМЕ/мл, а при гематокрите, равном 10—20 (его уменьшение может быть вызвано острой кровопотерей, гемолизом эритроцитов),— 1—8 МЕ/мл плазмы. Эритропоэтин тормозит апоптоз, регулирует пролиферацию и дифференциацию КОК-Э, про- и эритробластов, ускоряет синтез гемоглобина в эритроидных клетках и ре-тикулоцитах, «запускает» в чувствительных к нему клетках синтез эритро-поэтиновой иРНК и энзимов, участвующих в формировании гема и глобина, цитоскелета эритроцитов, увеличивает кровоток в эритропоэтической ткани костного мозга и выход в кровь ретикулоцитов. Наконец, катехола-мины через b-адренорецепторы КОК-Э также усиливают пролиферацию эритроидных клеток-предшественниц.
Продукция эритропоэтина почками угнетается при повышенном образовании в организме человека опухоль-некротизирующего фактора а, интерлейкинов-1а и 1(3, интерферонов а, (3 и у, что имеет место, например, у больных с хроническими паразитарной и бактериальной инфекциями, при ревматоидном артрите, так как перечисленные вещества тормозят синтез эритропоэтина в клетках почек. В результате у больных развивается анемия вследствие сниженной продукции почками эритропоэтина.
Гемостаз
Почки имеют отношение к процессам свертывания крови и фибринолиза. Они синтезируют вещества, которые влияют на все звенья гемостаза: сосудисто-тромбоцитарный, свертывание крови и фибринолиз. Прежде всего, почки являются регуляторами сосудисто-тромбоцитарного гемостаза. Очевидно, это очень важно для деятельности самих почек. Они содержат (и могут выделять в кровоток) различные простагландины (в том числе и простациклин), имеющие непосредственное отношение, как активации, так и торможению агрегации тромбоцитов.
Их отношение к свертыванию крови связано как с непосредственной продукцией ее отдельных факторов (например, тромбопластина), так и в связи с выделением избытка факторов свертывания, накапливающихся в ней (например, продукты деградации фибрина и другие).
Особонно важное значение почек в регуляции фибринолиза. Из почек выделен естественный активатор плазминогена – урокиназа. Этот активатор плазминогена получают из мочи для лечения тромбозов, тромбоэмболических заболеваний, тромботической болезни.
Непроизвольная и произвольная регуляция мочеиспускания.
Мочеиспускание –рефлекторный процесс. Один из простейших рефлексов, регулируемый на уровне спинного мозга. Центр рефлекса мочеиспускания находится в нижней части спинного мозга. Реагирует на импульсы, идущие от рецепторов растяжения в стенках мочевого пузыря.
Растяжение стенок мочевого пузыря вызывает раздражение рецепторов, которые посылают импульсы в центр мочеиспускания. В результате его воздействия стенки мочевого пузыря сокращаются, сфинктеры расслабляются, и происходит акт мочеиспускания.
Спинномозговой центр находится под контролем ЦНС – коры больших полушарий. Поэтому человек способен сознательно задерживать мочеиспускание или сознательно его усиливать. Поэтому, говорят о непроизвольном и произвольном мочеиспускании.