Материал: Voprosy_s_otvetami_na_ekz_po_fize
1.В зависимости от нейромедиатора, используемого для передачи:
- холинергические – медиатор ацетилхолин (АХ);
- адренергические – норадреналин (НА);
- серотонинергические – серотонин (СТ);
- глицинергические – аминокислота глицин (ГЛИ);
- ГАМК-ергические – гамма-аминомасляная кислота (ГАМК);
- дофаминергические – дофамин (ДА);
- пептидергические – медиаторами являются нейропептиды (вещество Р, опиоидный пептид в-эндорфин и др.)
2. По форме (до 80 вариантов нейронов):
- звёздчатые
- пирамидальные,
- грушевидные
- веретеновидные
- паукообразные
- овальные
3. Функциональная (в зависимости от выполняемой функции и места в рефлекторной дуге):
- рецепторные (чувствительные, афферентные нейроны с помощью дендритов воспринимают воздействия внешней или внутренней среды, генерируют нервный импульс и передают его другим типам нейронов, встречаются только в спинальных ганглиях и чувствительных ядрах черепномозговых нервов)
- эффекторные (эфферентные нейроны передают возбуждение на рабочие органы, например, мышцы или железы, располагаются в передних рогах спинного мозга и вегетативных нервных ганглиях)
- вставочные (ассоциативные нейроны располагаются между рецепторными и эффекторными нейронами; по количеству их больше всего, особенно в ЦНС)
- секреторные (нейросекреторные клетки, специализированные нейроны, по своей функции напоминающие эндокринные клетки, синтезируют и выделяют в кровь нейрогормоны, расположены в гипоталамической области головного мозга.
4. По физиологической роли:
- возбуждающие
- тормозные
5. По количеству и характеру отростков:
- униполярные (имеющие один отросток)
- псевдоуниполярные (от тела отходит один отросток, который затем делится на 2 ветви)
- биполярные (2 отростка, один дендритоподобный, другой аксон)
- мультиполярные (имеют 1 аксон и много дендритов)
Физиологические функции:
1) возбудимость – способность приходить в состояние возбуждения в ответ на раздражение;
2) проводимость – способность передавать нервные возбуждение в виде потенциала действия от места раздражения по всей длине;
3) рефрактерность (устойчивость) – свойство временно резко снижать возбудимость в процессе возбуждения.
Нервная ткань имеет самый короткий рефрактерный период. Значение рефрактерности – предохранять ткань от перевозбуждения, осуществляет ответную реакцию на биологически значимый раздражитель;
4) лабильность – способность реагировать на раздражение с определенной скоростью. Лабильность характеризуется максимальным числом импульсов возбуждения за определенный период времени (1 с) в точном соответствии с ритмом наносимых раздражений.
Механизм возбуждения нейронов
Место возникновения ПД нейрона.
Формирование ПД начинается на мембране аксонного холмика (генераторный пункт нейрона). Синапсы на нем отсутствуют, возбудимость мембраны аксонного холмика в 3—4 раза превосходит возбудимость мембраны тела нейрона, что объясняется более высокой (примерно в 7 раз) концентрацией Na- каналов на аксонном холмике (на нем отсутствует миелиновая оболочка). ВПСП, возникающие в любых участках сомы нейрона суммируются, их суммарное электрическое поле достигает аксонного холмика и вызывает его деполяризацию, в результате чего начинает развиваться ПД на аксонном холмике. Это связано с тем, что постоянная длины мембраны тела нейрона составляет 1-2 мм, а диаметр тела нейрона — всего лишь 10-80 мкм.
На восходящей части ПД нейрона регистрируется перегиб на уровне 30— 40 мВ (задержка в развитии ПД), вследствие того, что возбудимость мембраны тела нейрона в 3—4 раза ниже возбудимости мембраны аксонного холмика, что также является подтверждением описанного механизма формирования ПД нейрона (рис. 33).
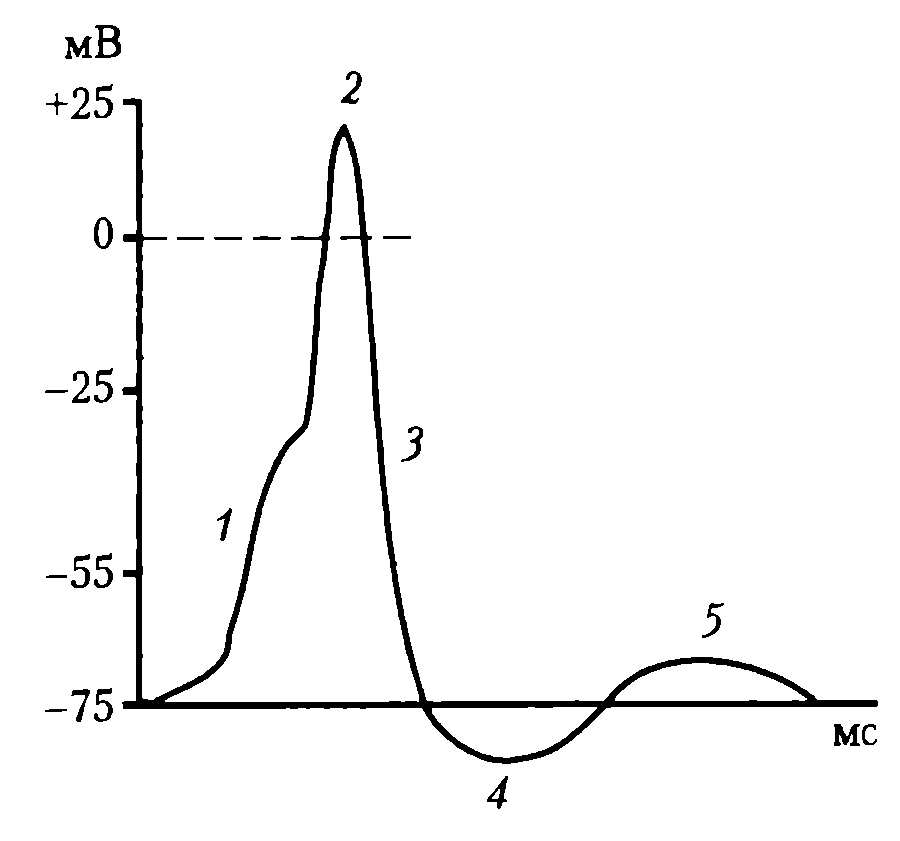 Рис.
33. Типичный ПД нейронов ЦНС: 1 –
деполяризация; 2 – инверсия; 3 –
реполяризация; 4 – следовая гиперполяризация;
5 – следовая деполяризация
Проведение возбуждения в немиелинизированных и миелинизированных нервных волокнах. Функциональная классификация нервных волокон.
Миелиновые волокна:
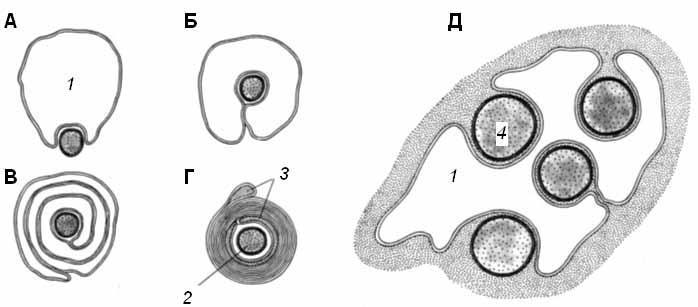
Часть нервных волокон в ходе эмбриогенеза подвергается миелинизации: леммоциты ( шванновские клетки ) сначала прикасаются к аксону, а затем окутывают его (рис. 1, А, Б). Мембрана леммоцита наматывается на аксон наподобие рулета, образуя многослойную спираль (миелиновую оболочку) (рис. 1, В, Г). Миелиновая оболочка не является непрерывной – по всей длине нервного волокна на равном расстоянии друг от друга в ней имеются небольшие перерывы (перехваты Ранвье). В области перехватов аксон лишен миелиновой оболочки.
|
Рис. 1. Формирование миелиновой оболочки вокруг аксона на разных стадиях его развития (А – Г); соотношение леммоцита и безмиелиновых волокон (Д) (по Судакову, 2000) 1 – леммоцит, 2 – миелиновое волокно, 3 – миелиновая оболочка, 4 – безмиелиновое волокно |
Безмиелиновые волокна:
Миелинизация других волокон заканчивается на ранних стадиях эмбрионального развития. В леммоцит погружается один или несколько аксонов; он полностью или частично окружает их, но не образует многослойной миелиновой оболочки (рис. 1, Д).
Механизм проведения возбуждения по безмиелиновым нервным волокнам:
В состоянии покоя вся внутренняя поверхность мембраны нервного волокна несет отрицательный заряд, а наружная сторона мембраны – положительный. Электрический ток между внутренней и наружной стороной мембраны не протекает, так как липидная мембрана имеет высокое электрическое сопротивление.
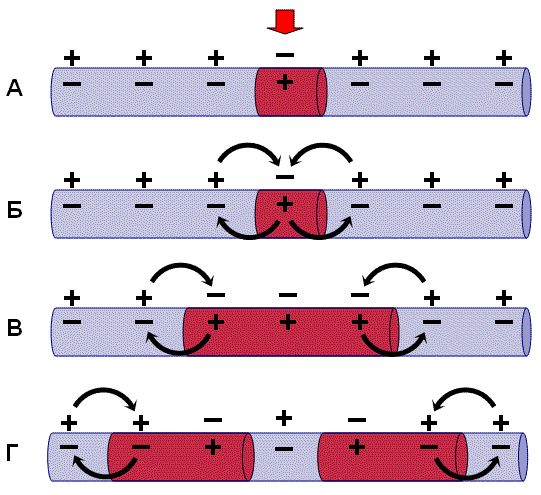
Во время развития потенциала действия в возбужденном участке мембраны происходит реверсия заряда (рис. 2, А). На границе возбужденного и невозбужденного участка начинает протекать электрический ток (рис. 2, Б). Электрический ток раздражает ближайший участок мембраны и приводит его в состояние возбуждения (рис. 2, В), в то время как ранее возбужденные участки возвращаются в состояние покоя (рис. 2, Г). Таким образом, волна возбуждения охватывает все новые участки мембраны нервного волокна.
|
Рис. 2. Механизм распространения возбуждения по безмиелиновому нервному волокну. Объяснения – в тексте |
Механизм проведения возбуждения по миелиновым нервным волокнам:
В миелинизированном нервном волокне участки мембраны, покрытые миелиновой оболочкой, являются невозбудимыми; возбуждение может возникать только в участках мембраны, расположенных в области перехватов Ранвье.
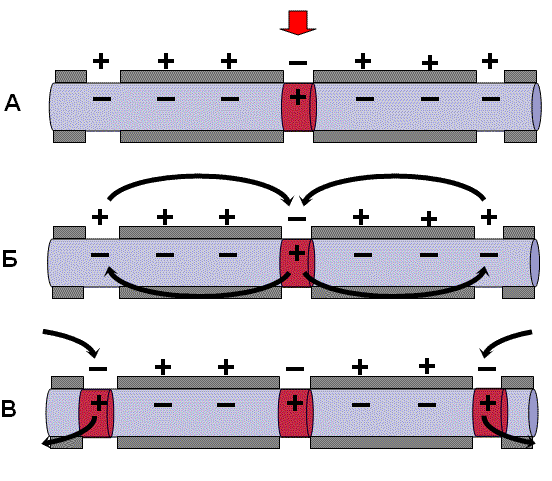
При развитии ПД в одном из перехватов Ранвье происходит реверсия заряда мембраны (рис. 3, А). Между электроотрицательными и электроположительными участками мембраны возникает электрический ток, который раздражает соседние участки мембраны (рис. 3, Б). Однако в состояние возбуждения может перейти только участок мембраны в области следующего перехвата Ранвье (рис. 3, В). Таким образом, возбуждение распространяется по мембране скачкообразно (сальтаторно) от одного перехвата Ранвье к другому.
|
Рис. 3. Механизм распространения возбуждения по миелиновому нервному волокну. Объяснения – в тексте |
Функциональная классификация нервных волокон
Нервные волокна (neurofibrae) – это отростки нервных клеток, окруженные оболочками из нейроглиальных клеток.
Существуют различные классификации нервных волокон.
По наличию (или отсутствию) миелиновой оболочки нервные волокна делят на миелиновые и безмиелиновые.
Классификация нервных волокон по Эрлангеру – Гассеру основана на исследовании составного потенциала действия смешанного периферического нерва (например, седалищного). После электрической стимуляции такого нерва регистрируется целый спектр потенциалов действия, отражающий наличие в нерве волокон с разными скоростями проведения импульса. Согласно этой классификации выделяют три основных типа волокон – А, В, С, соответствующие трем волнам составного потенциала действия. Волокна типа А подразделяются на 4 подтипа – α, β, γ, δ. Данная классификация учитывает как чувствительные, так и двигательные волокна.
Классификация нервных волокон по Ллойду – Ханту учитывает диаметр волокна и скорость проведения импульса, но применяется только для чувствительных волокон. Согласно этой классификации выделяют четыре класса волокон – I,II,III,IV. ВолокнаIкласса подразделяют на 2 группы – а иb. Эти классификации не противоречат друг другу и представлены в сводной таблице.
Тип волокна |
Тип волокна (только чувствительные) |
Диаметр волокна (мкм) |
Скорость (м/с) |
Функция, тип обслуживаемого рецептора |
Чувствительные нервные волокна |
||||
Аα |
Ia, Ib |
13 – 20 |
80 – 120 |
Первичные афферентные волокна мышечных веретен и от сухожильных органов Гольджи. |
Аβ |
II |
6 – 12 |
35 – 75 |
Вторичные афферентнфе волокна мышечных веретен, кожные механорецепторы |
Аδ |
III |
1 – 5 |
5 – 30 |
Кожные механорецепторы, терморецепторы, ноцицепторы |
С |
IV |
0,2 – 1,5 |
0,5 – 2 |
Кожные механорецепторы, терморецепторы, ноцицепторы (немиелинизированные волокна) |
Двигательные нервные волокна |
||||
Аα |
− |
12 – 20 |
72 – 120 |
Экстрафузальные волокна скелетных мышц |
Аγ |
− |
2 – 8 |
12 – 48 |
Интрафузальные мышечные волокна |
В |
− |
1 – 3 |
6 – 18 |
Преганглионарные вегетативные волокна |
С |
− |
0,2 – 2 |
0,5 – 2 |
Постганглионарные вегетативгые (немиелинизированные волокна) |
Закон анатомической и функциональной целостности нервного волокна. Парабиоз по Н.Е. Введенскому, фазы парабиоза. Практическое применение парабиоза в медицине.
Закон анатомической и физиологической целостности нервного волокна.Проведение возбуждения по нервному волокну возможно лишь в том случае, если сохранена его анатомическая и физиологическая целостность, т.е. передача возбуждения возможна только по структурно и функционально не измененному, неповрежденному нерву. Различные факторы, воздействующие на нервное волокно (наркотические вещества, охлаждение, перевязка и т. д.) приводят к нарушению физиологической целостности, т. е., к нарушению механизмов передачи возбуждения. Несмотря на сохранение его анатомической целостности проведение возбуждения в таких условиях нарушается.
Парабиоз
Явление парабиоза открыто русским физиологом Н.Е.Введенским в 1901 г. при изучении возбудимости нервно-мышечного препарата. Состояние парабиоза могут вызвать различные воздействия – сверхчастые, сверхсильные стимулы, яды, лекарства и другие воздействия как в норме, так и при патологии.
Н. Е. Введенский обнаружил, что если участок нерва подвергнуть воздействию повреждающего агента, то лабильность такого участка резко снижается. Восстановление исходного состояния нервного волокна после каждого потенциала действия в поврежденном участке происходит медленно. При действии на этот участок частых раздражителей он не в состоянии воспроизвести заданный ритм раздражения, и поэтому проведение импульсов блокируется. Такое состояние пониженной лабильности и было названо Н. Е. Введенским парабиозом. Состояние парабиоза возбудимой ткани возникает под влиянием сильных раздражителей и характеризуется фазными нарушениями проводимости и возбудимости.
Выделяют 3 фазы: первичную, фазу наибольшей активности (оптимум) и фазу сниженной активности (пессимум). Третья фаза объединяет 3 последовательно сменяющие друг друга стадии: уравнительную (провизорная, трансформирующая – по Н.Е.Введенскому), парадоксальную и тормозную.
Первая фаза (примум) характеризуется снижением возбудимости и повышением лабильности. Во вторую фазу (оптимум) возбудимость достигает максимума, лабильность начинает снижаться. В третью фазу (пессимум) возбудимость и лабильность снижаются параллельно и развивается 3 стадии парабиоза.
Первая стадия - уравнительная по И.П.Павлову - характеризуется выравниванием ответов на сильные, частые и умеренные раздражения. В уравнительную фазу происходит уравнивание величины ответной реакции на частые и редкие раздражители. В нормальных условиях функционирования нервного волокна величина ответной реакции иннервируемых им мышечных волокон подчиняется закону силы: на редкие раздражители ответная реакция меньше, а на частые раздражители—больше. При действии парабиотического агента и при редком ритме раздражении (например, 25 Гц) все импульсы возбуждения проводятся через парабиотический участок, так как возбудимость после предыдущего импульса успевает восстановиться. При высоком ритме раздражении (100Гц) последующие импульсы могут поступать в тот момент, когда нервное волокно еще находится в состоянии относительной рефрактерности, вызванной предыдущим потенциалом действия. Поэтому часть импульсов не проводится. Если проводится только каждое четвертое возбуждение (т.е. 25 импульсов из 100) ,то амплитуда ответной реакции становится такой же, как на редкие раздражители (25Гц)—происходит уравнивание ответной реакции.
Вторая стадия характеризуется извращенным реагированием – сильные раздражения вызывают меньший ответ, чем умеренные. В эту - парадоксальную фазу происходит дальнейшее снижение лабильности. При этом на редкие и частые раздражители ответная реакция возникает, но на частые раздражители она значительно меньше, т. к. частые раздражители еще больше снижают лабильность, удлиняя фазу абсолютной рефрактерности. Следовательно, наблюдается парадокс— на редкие раздражители ответная реакция больше, чем на частые.
В тормозную фазу лабильность снижается до такой степени, что и редкие, и частые раздражители не вызывают ответной реакции. При этом мембрана нервного волокна деполяризована и не переходит в стадию реполяризации, т. е. не восстанавливается ее исходное состояние. Ни сильные, ни умеренные раздражения не вызывают видимой реакции, в ткани развивается торможение.
Парабиоз— явление обратимое. Если парабиотическое вещество действует недолго, то после прекращения его действия нерв выходит из состояния парабиоза через те же фазы, но в обратной последовательности. Однако, при действии сильных раздражителей за тормозной стадией может наступить полная потеря возбудимости и проводимости, а в дальнейшем – гибель ткани.
Работы Н.Е.Введенского по парабиозу сыграли важную роль в развитии нейрофизиологии и клинической медицины, показав единство процессов возбуждения, торможения и покоя, изменили господствовавший в физиологии закон силовых отношений, согласно которому реакция тем больше, чем сильнее действующий раздражитель.
Явление парабиоза лежит в основе медикаментозного локального обезболивания. Влияние анестезирующих веществ связано с понижением лабильности и нарушением механизма проведения возбуждения по нервным волокнам.
Физиологические свойства и функции поперечно-полосатых мышечных клеток. Механизм сокращения поперечно-полосатых мышечных клеток.
Физиологические свойства поперечнополосатых мышц:
- возбудимость (ниже, чем в нервном волокне, что объясняется низкой величиной мембранного потенциала)
- низкая проводимость, порядка 10–13 м/с
- рефрактерность (занимает по времени больший отрезок, чем у нервного волокна)
- лабильность
- сократимость (способность укорачиваться или развивать напряжение)
Физиологические функции поперечнополосатых мышц:
- двигательная (динамическая и статическая)
- обеспечения дыхания
- мимическая
- рецепторная
- депонирующая
- терморегуляторная
Механизм сокращения поперечно- полосатой мускулатуры
При световой микроскопии было замечено, что в момент сокращения ширина А-диска не уменьшается, а Iдиски и Н-зоны саркомеров суживаются. При электронной, микроскопии было установлено, что длина нитей актина и миозина в момент соскращения не изменяется. Поэтому Хаксли и Хэнсон разработали теорию скольжения нитей. Согласно этой теории, мышца укорачивается в результате движения тонких актиновых нитей в промежутки между миозиновыми. Это приводит к укорочению каждого саркомера, образующего миофибриллы. Скольжение же нитей обусловлено тем, что при переходе в активное состояние головки отростков миозина связываются с центрами актиновых нитей и вызывают их движение относительно себя (гребковые движения). Но это последний этап всего сократительного механизма.
Сокращение начинается с того, что в области концевой пластинки двигательного нерва возникает ПД. Он с большой скоростью распространяется по сарколемме и переходит с неѐ на продольные трубочки и цистерны. Возникает деполяризация мембраны цистерн и из них в саркоплазму высвобождаются ионы кальция. На нитях актина расположены молекулы еще двух белков – тропонина и тропомиозина. При низкой (менее 10-8 моль) концентрации кальция, т.е. в состоянии покоя, тропомиозин блокирует присоединение мостиков миозина к нитям актина. Когда ионы кальция начинают выходить из СР, молекула тропонина изменяет свою форму таким образом, что освобождает активные центры актина от тропомиозина. К этим центрам присоединяются головки миозина и начинается скольжение за счет ритмического прикрепления и разъединения поперечных мостиков с нитями актина. При этом головки ритмически продвигаются по нитям актина к Z-мембранам. Для полного сокращения мышцы необходимо 50 таких циклов.
Передача сигнала от возбужденной мембраны к миофибриллам называется электромеханическим сопряжением. Когда генерация ПД прекращается и мембранный потенциал возвращается к исходному уровню, начинает работать Са-насос (фермент Са-АТФаза). Ионы кальция вновь закачиваются в цистерны саркоплазматического ретикулума и их концентрация падает ниже 10-8 моль. Молекулы тропонина приобретают исходную форму и тропомиозин вновь начинает блокировать активные центры актина. Головки миозина отсоединяются от них, и мышца за счет эластичности приходит в исходное расслабленное состояние.