Дипломная (вкр): Анатомия коллембол
Анатомия коллембол
Содержание
Введение
Глава 1. Обзор литературы
.1 Экология коллембол
.1.1 Жизненные формы
.1.2 Питание
.1.3 Жизнь в экстремальных условиях
.2 Морфология коллембол
.2.1 Внешнее строение
.2.2 Внутреннее строение
.2.2.1 Эндоскелет
.2.2.2 Мышечная система
.2.2.3 Пищеварительная система
.2.2.4 Выделительная система
.2.2.5 Дыхательная система
.2.2.6 Кровеносная система
.2.2.7 Нервная система, органы чувств
.2.2.8 Половая система
.3 Миниатюризация животных
.3.1 Эффект миниатюризации у насекомых
.4 Систематическое положение и признаки рода Mesaphorura
Глава 2. Материалы и методы Глава 3. Результаты
.1 Морфология Mesaphorura
.1.1 Внешнее строение
.1.2 Внутреннее строение
.1.2.1 Эндоскелет
.1.2.2 Мышечная система
.1.2.3 Пищеварительная система
.1.2.4 Нервная система
.1.2.5 Половая система
.1.2.6 Прочие системы
Глава 4. Обсуждение
.1 Эффект миниатюризации у коллембол
.1.1 Сравнение Mesaphorura и ранее изученных представителей данного отряда
.1.2 Сравнение эффектов миниатюризации коллембол и насекомых
.1.2.1 Сравнение объёмов органов Mesaphorura и некоторых насекомых
Выводы
Список литературы
Введение
Повышенный интерес к эффектам миниатюризации проявлялся к позвоночным и беспозвоночным животным (Hanken J., Wake D.B, 1993), а в последние годы было сделано много работ по морфологии миниатюрных насекомых (Polilov, 2015). Отряд Collembola является базальной группой шестиногих (Hexapoda) и включает в себя небольших представителей (1-3 мм в среднем) (Beutel et al., 2013), одними из самых маленьких считаются, например, Megalothorax minimus (0,35-0,55 мм) (Schneider, D’Haese, 2013), Mackenziella psocoides (0,25 мм) (Hopkin, 1997), что представляет собой интерес не только в исследовании проявления миниатюризации, но и в их сравнении с насекомыми. Работы предыдущих авторов не содержат детальных анатомических описаний или щатрагивали только отдельные системы органов (Lubbock, 1877; Folsom, 1899; Imms, 1939; Bretfeld, 1963; Wolter, 1963; Shaller,
; Eisenbeis, 1975; Verhoef, 1979; Hopkin, 1997) и все эти работы посвящены крупным коллемболам.
Целью работы стало изучение внутреннего строения коллембол рода Mesaphorura.
Были поставлены следующие задачи:
1. Изучить анатомию Mesaphorura sylvatica (Rusek, 1971) с помощью оптической микроскопии и трёхмерного компьютерного моделирования.
2. Выявить особенности внутреннего строения, связанные с уменьшением размеров тела.
3. Сравнить особенности строения коллембол, связанные с миниатюризацией, с данными по миниатюрным насекомым.
Автор выражает благодарность своему научному руководителю Кузнецовой
Наталии Александровне (МПГУ) за помощь в проведении практической части и советы
по написанию данной работы; научному консультанту Полилову Алексею Алексеевичу
(МГУ) за курирование работы; а также научному сотруднику Потапову Михаилу
Борисовичу (МПГУ) за помощь в сборе и определении объектов.
Глава 1. Обзор литературы
1.1 Экология
1.1.1 Жизненные формы
Коллемболы могут быть разделены на жизненные формы, которые отличаются друг от друга занимаемым почвенным горизонтом и имеют характерные морфологические особенности. Определение жизненных форм находит применение в сравнительном анализе экологической структуры сообществ, а также является важным индикатором состояния почвы. Можно выделить три основных жизненных формы коллембол:
1) эпидафические (поверхностные и верхнеподстилочные) формы - обитатели поверхности подстилки и верхнего горизонта подстилки;
2) гемиэдафические (полупочвенные) формы - обитатели нижних слоёв подстилки и верхнего слоя почвы;
3) эуэдафические (почвенные формы) - обитатели почвенного горизонта (Karaban et al., 2012).
Стебаева С.К. выделяет также четвёртую форму - специализированные обитатели пещер, муравейников и термитников (Бабенко и др., 1988).
От эпидафической к эуэдафической форме уменьшается размер тела, частично или полностью редуцируются пигментация, прыгательная вилка и количество омматидиев. Однако вертикальное распространение жизненных форм может сильно варьировать. Существуют два метода определения жизненной формы: по глубине обитания в почве и по морфологическим признакам, результаты последнего считается более приближенными к реальному распределению (Karaban et al., 2012).
Вертикальная стратификация коллембол в почве коррелирует с пористостью
почвы, относительной влажностью и распределением пищи. В подзолистых почвах
подстилка медленно перемещается вниз по мере её разложения, и таким образом по
вертикальному расположению отдельных таксонов можно определить фазу разложения
(Rusek, 1988).
1.1.2 Питание
Коллемболы специализируются на питании почвенной микробиоты (грибы, бактерии, актиномицеты, водоросли), контролируя динамику популяций данных организмов. Кроме этого, они поглощают мёртвую органику, включая подстилку. Некоторые виды питаются листьями (исключая жилки), другие же употребляют в пищу частично разложившимся органическим веществом или экскрементами иной почвенной фауны. Многие атмобионты (обитатели поверхности рыхлых подстилок) являются фитофагами и питаются тканями живых растений (например, Sminthurus viridis, Bourletiella spp.), другие питаются гифами грибов и спорами, а также меняют предпочтения в еде в течение года (пыльца, водоросли, ткани растений) (Rusek, 1988).
насекомое экстремальный миниатюризация орган
1.1.3 Жизнь в экстремальных условиях
Коллемболы играют определяющую роль в формировании почвы в некоторых арктических, альпийских регионах и в слабо развитых почвах, находящихся на ранней стадии сукцессии. В более развитых почвах они участвуют в разложении листового опада и вторичном расщеплении экскрементов мега- и макрофауны. Самая простая форма гумуса состоит преимущественно из экскрементов коллембол (таких как из рода Xenylla); более сложная уже включает в себя, в основном, помёт мегафауны, хотя по- прежнему экскременты коллембол являются доминирующими элементами почвенного матрикса данного гумуса. Всё это является важным для формирующих процессов почвы (Rusek, 1988).
По мере ухудшения климатических условий (в частности, уменьшение температуры) коллемболы играют всё большую роль в почве. Например, в Антарктике число коллембол достигает 86% от общей численности шестиногих. Чтобы выживать в подобных экстремальных условиях, альпийские, арктические и антарктические виды ногохвосток приспосабливаются к переохлаждению организма. Так, особи Tetracanthella wahlgreni способны выдерживать понижение температуры до -39C. При этом холодостойкость уменьшается во время питания, что было показано ещё на насекомых (Somme, 1981).
Выделяют две категории организмов в зависимости от механизмов адаптации к
холоду: толерантные и не толерантные к замораживанию. Показано, что коллемболы
относятся ко второй категории. Выживанию в подобных условиях им помогает
наличие криопротекторов в гемолимфе (глицерол, сорбитол, маннитол, глюкоза,
трегалоза и др.), а также сокращение объёма воды. Подготовка организма к
повышенной холодостойкости происходит осенью и ранней зимой и происходит в два
этапа: 1) опустошение пищеварительной системы 2) усиление сопротивления к
холоду благодаря накоплению глицерола или иных криопротекторов (Somme, 1981;
Worland, 1996).
1.2 Морфология коллембол
1.2.1 Внешнее строение
Тело коллембол разделено на голову, грудь (3 сегмента) и брюшко (6
сегментов). Крылья и сложные глаза отсутствуют, кутикула частично редуцирована.
Имеется ряд специализированных органов: вентральная трубка (на первом сегменте
брюшка), зацепка (на третьем сегменте брюшка), прыгательная вилка (на последнем
сегменте брюшка).
1.2.2 Внутреннее строение
1.2.2.1 Эндоскелет
Эндоскелет - совокупность впячиваний покровов, которые служат для крепления мышц и поддержки некоторых органов.
Основным эндоскелетом головы насекомого является тенториум (Imms, 1977). Но, в отличие от них, у скрыточелюстных (Entognatha) подобная структура редуцируется. У коллембол эндоскелет головы развит наиболее сильно, тем самым сильно напоминая тенториум насекомых, однако состоит он не только из впячиваний экзоскелета, но и из коллагеновых структур (Wolter, 1963; Koch, 2000; Blanke and Machida, 2015). Чтобы избежать путаницы, различные авторы давали ей иные термины (архитенториум, псевдотенториум). Было показано, что она не может быть гомологична тенториуму насекомых, но также и не является неким исходным образованием, от которого мог бы произойти тенториум (Matsuda, 1965; Wolter, 1963). Руки Фолсома (также “lingual stalks”) считаются гомологичными передним тенториальным аподемам насекомых, а fulcra (ед. fulcrum), или fulturae, или sternum, или sternal arms - задним тенториальным аподемам. Они связаны друг с другом системой сухожилий с которыми и образуют сложный комплекс, названный псевдотенториумом. Он также имеет свои “руки” - выросты сухожилий. Псевдотенториум крепится к экзоскелету при помощи тенториальных аподем, сухожилий и особых подвешивающих мышц. Его вид сильно варьируется у различных видов (Manton and Harding, 1964; Bitsch and Bitsch, 2002).
Эндоскелет груди не менее сложен и может быть поделён на эндотергиты, эндоплевриты и эндостерниты. Эндотергиты возникают как складки межсегментных склеритов и служат для увеличения площади поверхности крепления дорсальных продольных мышц. Эндоплевриты образуются между плевритами. Эндостерниты насекомых возникают либо как парные апофизы (фурки), либо как непарные аподемы (спина (spina) на межсегментном склерите - спинастернуме). У коллембол наблюдаются похожие эндостерниты, но по аналогии со структурами насекомых они не называются (Imms, 1977; Bitsch and Bitsch, 2002). Вероятно, структуры, внешне напоминающие таковые фурки у насекомых, у коллембол больше схожи со спинами по происхождению (Imms, 1977).
В брюшке эндоскелет развит слабее. Помимо типичных аподем (Рис.1) для
крепления брюшных мышц, могут быть развиты специализированные аподемы,
связанные с половой системой (Imms, 1977).
1.2.2.2 Мышечная система
Все мышцы можно разделить на три большие категории: скелетные мышцы, висцеральные и мышцы сердца. Скелетные мышцы прикрепляются к кутикуле и перемещают одни части тела относительно других. Висцеральные мышцы связаны с внутренними органами, например, имеются круговые мышцы вокруг кишечника и половых протоков (Chapman, 1998).
При описании головы основной акцент делается на мышцах челюстного аппарата. В голове коллембол выделяется 25 пар челюстных мышц. 10 из них связаны с максиллами, 10 - с мандибулами, 5 - с лабиумом. В зависимости от выполняемого действия делятся на: абдуктор, который выполняет отведение, аддуктор - приведение, вращатель - вращение, ректрактор - оттягивание назад, протрузор - вытягивание вперёд (Folsom, 1899). Антенны имеют пар 9 мышц, которые крепятся к различным аподемам внутри членико. (Imms, 1939), От начала груди до конца брюшка проходят три пары продольных мышц: две дорсальных и вентральная (Bretfeld, 1963). Они отвечают за сближение сегментов при сокращении (Шванвич, 1949).
В груди количество мышц различается в зависимости от вида. У двух изученных представителей (Neanura muscorum, Orchesella cincta) насчитывается 23-49 пар. В брюшке - 20-53 пары. Они могут быть поделены на четыре большие группы:
1) сегментные дорсо-вентральные мышцы, которые располагаются в границах одного сегмента;
2) латеральные дорсо-вентральные мышцы, которые находятся сбоку от предыдущих и в груди часто связаны с конечностями;
) межсегментные дорсо-вентральные мышцы, которые проходят через два сегмента;
) поперечные мышцы, лежащие на вентральной стороне тела.
От места прикрепления мышцы к конечности зависит её функция: сгибание,
разгибание, отведение, приведение. Мускулатура переднегруди заметно отличается
от мускулатуры остальных сегментов (Шванвич, 1949; Bretfeld, 1963). В брюшке
наличие специализированной мускулатуры связано с вентральной трубкой, которая
насчитывает 14 пар мышц (Eisenbeis, 1975), а также зацепкой и прыгательной
вилкой, если таковые имеются.
1.2.2.3 Пищеварительная система
Пищеварительная система типичного строения и состоит из передней, средней и задней кишок. Передняя и задняя кишки - производные инвагинации эктодермы и выстланы кутикулой. Средняя кишка имеет энтодермальное происхождение.
Передняя кишка: pharynx (глотка), esophagus (пищевод), crop (зоб).
Передняя кишка представляет собой длинную изогнутую трубку, переход между глоткой и пищеводом выражен слабо. Спереди глотка связана с ротовой полостью, а пищевод сзади отгорожен от средней кишки с помощью клапана.
Средняя кишка: ventriculus (желудок), midgut (собственно средняя кишка). Задняя кишка: pylorus, ileum, rectum/caecum (Lubbock, 1873).
Наиболее полное деление встречается только в одной работе и приведено в виде цитат более ранних авторов. В остальных работах упоминания о ряде отделов не встречаются. Отсутствие ясных границ и принципиальной разницы между некоторыми из них (например, пилорического отдела и тонкой кишки) приводит к невозможности достоверного разделения и возможных несовпадений различных мнений.
Глотка формирует четыре кармана, по два с каждой стороны, путём выпячивания. В дорсальной паре карманов расположены мандибулы, в вентральной - максиллы (Рис.2). Нижняя часть глотки образована дорсальной поверхностью лабиума, а верхняя - лабрумом (Folsom, 1899). В неё впадают протоки двух пар слюнных желёз, не всегда развитых. У представителей с колюще-сосущим ротовым аппаратом они достигают больших размеров (заходят в первый сегмент груди), чем у видов с грызущим типом ротового аппарата. (Wolter, 1963; Shaller, 1970).
Пищевод имеет собственные мышцы-расширители, подходящие к одной круговой мышце, расположенной по всей длине передней кишки. Он начинается небольшим расширением в передней части глотки и тянется до среднегруди в виде тонкой трубки единого диаметра, где заканчивается клапаном (Folsom, 1899; Wolter, 1963).
Средняя кишка представляет собой простую расширенную трубку без каких-либо придатков за исключением редко встречающихся мешковидных образований (дивертикул; “слепых кишок”), которые связаны с сосущим типом питания. Описаны у Protanura (в количестве двух), Neanura muscorum, Pseudachorutes (Wolter, 1963; Shaller, 1970).
Задняя кишка представляет собой тонкую короткую трубку, которая заканчивается анальным отверстием. Ректум, последний отдел задней кишки, не имеет дифференцировки, но, тем не менее, как и вентральная трубка принимает важную роль в осморегуляции и в регуляции ионного обмена (Verhoef, 1979).
Во время линьки обновляются все три отдела. Обновление средней кишки, как
и период линьки, подвергается циклическим изменениям, что позволяет ей
выполнять выделительную функцию взамен утраченных мальпигиевых сосудов
(Humbert, 1979).
1.2.2.4 Выделительная система
Мальпигиевы сосуды отсутствуют, за редким случаем на их месте могут находиться небольшие бугорки (Shaller, 1970). В ранних источниках ещё имеются упоминания о мальпигиевых сосудах в количестве до 3 пар (Lubbock, 1873). Но, скорее всего, речь идёт о тех же рудиментах. Структуры с выделительной функцией у коллембол представлены в большом разнообразии:
1) лабиальные нефридии (Рис. 3),
2) ацинарные, или гроздевидные, железы,
) 3 пары клеточных скоплений, или ‘рудиментарные нефридии’ (в голове, в 1 и 3 сегментах абдомена),
) средняя кишка,
) жировое тело.
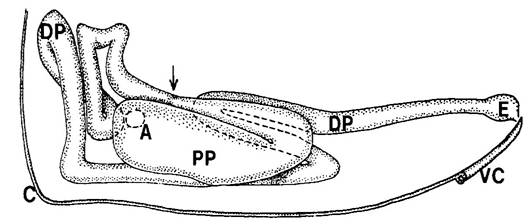
Рис. 1. Лабиальный нефридий (O.cinta). Отверстие указывает на соединение
с мешочком (не нарисован). С - кутикула, DP - дистальная часть, PP -
проксимальная часть, E - концевой мешок, VC - вентральный канал (из Verhoef,
1979).
Парные лабиальные нефридии лежат по бокам от нервной системы и кишечника и доходят до переднегруди, почти достигают дорсальной стороны головы (Wolter, 1963). Они состоят из двух частей: целомического мешочка (“саккулюс”), выстланного подоцитами, и двудольного канала нефридия, имеющего проксимальную (лабиринт) и дистальную части. Стенки проксимального канала кардинально меняют свой состав в зависимости от стадии линьки, их клетки, определённые как лизосомы, принимают участие в фагоцитозе. Дистальный канал выстлан базальным лабиринтом, который участвует в активном всасывании воды и ионов. Дистальные части обоих канальцев нефридия соединяются и впадают единым протоком на вентральной стороне лабиума. Клетки мешочка выстланы подоцитами, он участвует в фильтрации гемолимфы и формировании первичной мочи, а за её реабсорбцию отвечает нефридиальный канал. Тем не менее, до конца не понятно, происходит ли секреция конечных веществ клетками лабиринта и мешочка или же имеет место гетерофагиии и автофагии (Altner, 1968; Verhoef, 1979).