Дипломная (вкр): Анатомия коллембол
Ацинарные железы парные, расположены в вентральной части головы по бокам от центральной линии. Состоят из множества одноклеточных желёз, чьи протоки сливаются в единый канал, который открывается наружу позади протока лабиальных нефридиев (Wolter, 1963).
Клеточные скопления расположены во всех отделах тела. Они имеют родство с подоцитами, лишены выводных протоков и выполняют функцию “почек накопления”. Те, что находятся в голове у основания антенн также называют антеннальными нефридиями, или головными почками (Shaller, 1970). Структуры в первом сегменте брюшка находятся по бокам от вентральной трубки, в третьем - по бокам от зацепки. Их состав изучен слабо, но показано отсутствие кристаллов мочевой кислоты (Humbert, 1975; Verhoef, 1979).
Выделительная функция также выполняется при помощи средней кишки, которая обновляется при линьке, как это уже было упомянуто ранее. Таким образом из организма удаляются токсические элементы, совершается минеральный обмен. Не исключено, что вне линьки некоторые процессы регенерации также участвуют в выделении (Humbert, 1979).
Не менее важную роль играют клетки жирового тела, которые, в отличие от
клеточных структур, накапливают кристаллы мочевой кислоты (Шванвич, 1949).
1.2.2.5 Дыхательная система
Трахеи, как правило, отсутствуют, встречаются лишь у нескольких видов. Основное дыхание происходит за счёт диффузии газов через кутикулу, которая лишена сплошного слоя эпикутикулы. Около трети необходимого для жизнедеятельности кислорода поступает через поверхность вентральной трубки (Shaller, 1970).
Трахейная система состоит из двух частей, которые между собой не связаны. Каждая открывается единственным дыхальцем в передней части переднегруди. Механизмы, закрывающие дыхальца, отсутствуют. Благодаря тому, что дыхальце с каждой стороны всего одно, воздух поступает в трахейную систему постепенно, в отличие от насекомых, у которых при наличии нескольких дыхалец воздух быстро заполняет главный ствол и оттуда перемещается далее по ответвлениям. Трахейные стволы расходятся и ветвятся в голове, в груди, в брюшке, не заходя в области расположения зацепки, анального отверстия и вентральной трубки. Тенидии (спиральные утолщения) встречаются во всех ответвлениях диаметром до 1,5 мкм. Трахеолы достигают диаметра в 0,25 мкм (Davies, 1927).
Кутикула, обладая гидрофобностью, вместе с хетами способствует образованию вокруг тела коллемболы воздушной плёнки, которая рассматривается в качестве пластрона. Практически на всём протяжении кутикулы имеется чередование гидрофобных эпикутикулярных гранул с гидрофильными “впадинами”, через которые и происходит газообмен. Его интенсивность повышается при высокой влажности, при истирании кутикулы (после линьки транспирация вновь достигает нормального уровня). Целиком гидрофильными участками являются везикулы вентральной трубки и когти лапки. Помимо участия в газообмене и ионном обмене, вентральная трубка также применяется для передвижения, к примеру, по вертикальным поверхностям за счёт сил адгезии. Гидрофильность когтей позволяет коллемболам передвигаться по жидкости, при этом погружённые когти образуют точку опоры, а остальная часть лапки не даёт ноге потонуть, придавая плавучесть (Noble-Nesbitt, 1963).
1.2.2.6 Кровеносная система
Трубчатое сердце расположено в четвёртом сегменте брюшка и имеет от 2 до
6 пар остий. Спереди оно продолжается в виде аорты, сопровождается “крыловой”
мускулатурой. Состав гемолимфы и её клеточных элементов неизвестен (Shaller,
1970; Imms, 1977).
1.2.2.7 Нервная система, органы чувств
Нервная система по своему строению схожа с таковой насекомых. У коллембол
она состоит из пяти ганглиев (Hopkin, 1997). Надглоточный и подглоточный
ганглии (Рис.4) располагаются в голове и связаны между собой короткими
комиссурами, между которыми проходит пищевод. Остальные ганглии располагаются
по одному в каждом сегменте груди на вентральной тороне. Бывшие абдоминальные
ганглии слиты с ганглием заднегруди, который может заходить в первый сегмент
брюшка (Lubbock, 1873).
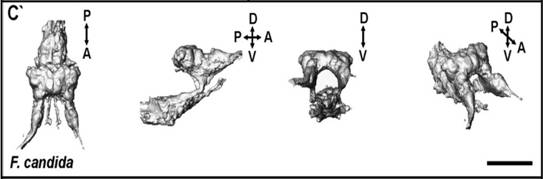
Рис. 2. Головные ганглии. P - задняя, A - передняя, V - нижняя, D -
верхняя оси. На второй проекции виден надглоточный (сверху) и подглоточный
(снизу) ганглии. Шкала: 50 мкм (из Kollmann, 2011).
Надглоточный ганглий состоит из протоцеребрума, дейтоцеребрума и тритоцеребрума. Центральное тело - совокупность несвязанных нейропилей (область, в которой сосредоточены синапсы) - не дифференцируется и лежит в середине протоцеребрума с дорсальной стороны. Все функции до конца не установлены, но одна из них - обработка визуальной информации. Ниже него описаны структуры, похожие на узелки (нодули). Их назначение неизвестно, но, по всей видимости, они отсутствуют у бескрылых насекомых. Есть предположение, что их наличие связано с эволюцией крыльев. Ниже центрального тела располагается вытянутый протоцеребральный мост. Грибовидные тела, располагающиеся в передней части протоцеребрума, также состоят из нейропилей и являются важнейшими ассоциативными центрами, принимая участие в обонятельном и зрительном запоминаниях, процессах принятия решения. Грибовидные тела упрощённого строения, с малым количеством интернейронов наименьшего размера (клеток Кеньона) и отсутствием вертикальных долей (образования аксонов клеток Кеньона).
Антеннальные доли входят в состав дейтоцеребрума. Это области нейропиля, ассоциированного с антеннами, которые состоят из отдельных гломерул - шарообразные структуры из плотного синаптического нейропиля. Число гломерул различается в зависимости от вида, у Folsomia candida было подсчитано 27. Эти доли принимают обонятельную информацию (Шванвич, 1949; Chapman, 1998; Kollmann, 2011).
Нейросекреторная система в данной работе не рассматривалась.
Тело целиком покрыто хетами и чешуйками. Хорошо развиты органы чувств, расположенные на антеннах. Имеются и трихоботрии - длинные хеты, регистрирующие направление ветра и вибрации, и хемосенсорные хеты (сенсиллы). Совокупность сенсилл может образовывать сенсорный комплекс, примером которого является антеннальный орган, расположенный на дорсальной стороне третьего сегмента антенны и участвующий в механо- и хеморецепции. Он состоит и 5 сенсилл. Другой пример - это сложный сенсорный комплекс на конце антенны (описан у Allacma fusca), возможные функции которого - восприятие механических раздражений (механорецептор), в частности, восприятие сигналов от антеннальных мышц (проприорецептор). Функции проприорецепторов также выполняют сколопии сложные внутренние структуры в первом сегменте антенны. На конце антенн могут располагаться хетоидная сенсилла и округлая папилла (везикула, или ретрактильная колба). На вентральной стороне последнего сегмента антенны могут быть найдены “сенсорные щётки” - поля коротких “шпильковидных” хет (Altner, 1978; Бабенко и др., 1988; Altner, 1988).
Постантеннальный орган - уникальная структура, которая расположена у основания антенны и устроена по-разному в зависимости от таксона. Состоит из различного количества бугорков (от 1 до розеток из 30 и больше), погружённых в поверхностную ямку. Его функция до конца не известна; возможно, он является хеморецептором (восприятие химических веществ), терморецептором (восприятие температуры) или гидрорецептором (восприятие влажности). Предполагается, что у группы Symphypleona он редуцирован до хетоподобной структуры, которая выше была включена в сложный сенсорный комплекс. У группы Neanurinae и у некоторых Entomobryomorpha он вовсе отсутствует. (Karuhize, 1971; Altner & Thies, 1976; D’Haese, 2003)
Фасеточные глаза отсутствуют, имеются глаза, состоящие максимум из 8 омматидиев каждый. Отмечена реакция коллембол на воздействие света (Jordana, 2000).
Для группы Onychiuridae характерны ложные глазки, или псевдоцелли, среди которых выделяют три основных типа на основе строения. Были выдвинуты следующие гипотезы об их функции: выделительная, защитная (выделение отпугивающих хищников репеллентов).
Ещё одни структуры, найденные в разных группах, - псевдопоры. Есть предположения, что они гомологичны ложным глазкам (D’Haese, 2003).
Существуют так называемые овальные органы, которые воспринимают
воздействия, оказываемые на экзоскелет (Бабенко и др., 1988).
1.2.2.8 Половая система
Мужская половая система представлена непарными или парными мешковатыми и иногда слитыми семенниками, которые располагаются по бокам от кишечника на нижней стороне тела либо с первого (второго) по пятый сегмент брюшка, либо занимают его целиком, а иногда могут начинаться в среднегруди и продолжаться до конца тела (Shaller, 1970). Они не разделены на фолликулы (Dallai, 2000).
Концы семяпроводов, или семяпротоков, отходят от семенников и на конце образуют расширение - семенные пузырьки, в которых накапливается сперма. Далее семяпротоки впадают в непарный семяизвергательный канал, который открывается наружу на пятом сегменте брюшка продольным мужским половым отверстием (Shaller, 1970; Matsuda, 1976). Около канала располагаются придаточные железы, секрет которых участвует в образовании сперматофора. Внутри каналов происходит разделение секрета желёз и спермы друг от друга при помощи поперечной септ (Dallai, 2000).
Женская половая система представлена парными мешковатыми, часто лопастными яичниками, которые могут проходить от среднегруди до 5 сегмента брюшка. Яйцеводы очень короткие, они объединяются для формирования непарного влагалища, которое открывается наружу на пятом сегменте брюшка поперечным женским половым отверстием. Деление на овариолы отсутствует, но у ряда видов яичники могут вторично делиться на две несимметричные доли (Shaller, 1970; Matsuda, 1976).
Размножение происходит с помощью сперматофора, который состоит из стебелька
и верхушечной капли со спермой. Самка подбирает его половым отверстием, где
сперматофор попадает в сперматеку (Рис.5). Сперматека - эктодермальный мешок,
который располагается между двумя другими похожими мешками рядом с влагалищем.
Две боковых структуры являются придаточными железами, функция секрета которых
до конца не выяснена. Существуют предположения, что он защищает яйца от
хищников, функционируя в качестве репеллента. Cперматека у самки
репродуктивного возраста достигает величины большей, чем придаточные железы. В
остальное время она малых размеров и запрятана между придаточными железами и
окружена жировым телом, поэтому её обнаружение затруднено. Способность
изменения размера сперматеки связана с тонким слоем кутикулы, который не
препятствует её растяжению во время захвата сперматофора. Напротив, придаточные
железы обладают толстой кутикулой и не меняют своих размеров (Dallai, 2008).
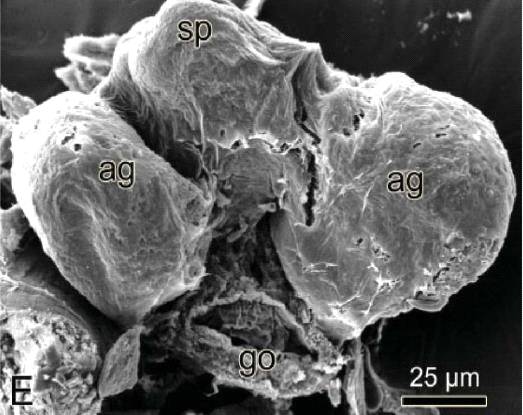
Рис. 3. Три эктодермальных кармана после препарирования дистальной части
половой системы ювенильной самки. go - половое отверстие, sp - сперматека, ag -
придаточные железы (из Dallai, 2008).
1.3 Миниатюризация животных
Миниатюризация - эволюция чрезвычайно маленьких размеров тела в ряде поколений. Помимо маленького размера, миниатюризация подразумевает изменение анатомии, физиологии, экологии, поведения. “Критическим размером” миниатюризации считается такой размер, при котором затронуты важные физиологические или экологические функции, например, локомоция, размножение, питание (Hanken and Wake, 1993).
Миниатюризация у позвоночных часто встречается среди рыб, амфибий и рептилий, реже - у птиц и млекопитающих. Появлению данного эффекта способствуют особые условия среды, куда можно отнести островную фауну, Антарктику, мейофауну (донные организмы размером от 60 мкм до 2 мм). Одним из механизмов миниатюризации считается педоморфоз, играющий огромную роль в эволюции мейофауны (Hanken and Wake, 1993; Rundell and Leander, 2010).
Наиболее частый эффект миниатюризации - упрощение и редукция структур, начиная от недоразвитости и заканчивая потерей органов или целых систем органов. Среди позвоночных наиболее часты примеры, связанные со скелетом. Потеря целых систем органов характерна для беспозвоночных (Hanken and Wake, 1993).
Практически все эволюционные изменения видов сопровождаются изменением
размеров. Если в ходе эволюции организм становится меньше, то количество
успешных клеточных делений в тканях, клетки которых способны постоянно
делиться. Из-за этого могут исчезнуть целые органы, которые не способны
функционировать в связи с малым количеством клеток. Биологические параметры,
как и физиологические системы, широко варьируют и по-разному зависят от размера
тела, поэтому довольно редко удаётся определить критический размер для какой-либо
группы близкородственных организмов. Нижняя граница размера тела может
определяться лимитом количества яиц, максимальным заполнением тела органами
(Rensch, 1948; Hanken and Wake, 1993).
1.3.1 Эффект миниатюризации у насекомых
Существуют параллелизмы, характерные большинству микронасекомых, часть из которых:
· упрощение тенториума и эндоскелета;
· редукция мускулатуры кишечника;
· сокращение числа мальпигиевых сосудов;
· упрощение кровеносной системы;
· упрощение трахейной системы (сокращение числа дыхалец);
· олигомеризация и концентрация ЦНС, асимметрия ЦНС;
· сокращение числа овариол.
Также существуют параллелизмы, характерные для части микронасекомых
(например, смещение брюшных ганглиев в брюшной отдел у Liposcelididae,
Ptiliidae, Corylophidae) и уникальные черты, присущие отдельным семействам или
микронасекомым (например, непарные гонады у Ptiliidae) (Polilov, 2015).
1.4 Систематическое положение и признаки рода
Mesaphorura
Надсемейство Onychiuroidea, семейство Tulbergiidae.
Описание рода:
Вытянутое тело длиной 0,4 - 1,2, чаще 0,6 - 1 мм. Пигмент отсутствует. Антенны короче диаметра головы. Четвёртый сегмент антенны с пятью сенсиллами различной толщины. Антеннальный орган (3 сегмент антенны) состоит из двух больших сенсорных бугорков, между которыми проходят два сенсорных ряда. Постантеннальный орган расположен в продолговатой или овальной полости, в 1,5-2 длиннее ближайших псевдооцеллей. Состоит из 18- 55 простых везикул, лежащих в два ряда. Хорошо развитые ложные глазки имеют розетчатую форму и центр в виде звезды.
Глава 2. Материалы и методы
Объекты были собраны на песчаном берегу Пироговского водохранилища города Москвы в сентябре 2015 года. Для сбора использовался метод флотации (Потапов, Кузнецова, 2011): берут сосуд, ёмкостью несколько литров (низкое ведро или тазик), засыпают порцию песка, наливают воды и аккуратно перемешивают. Через несколько минут микроартроподы всплывают, и их переносят иглой или тонкой кисточкой во флаконы.
Живые объекты были зафиксированы спиртовым Буэном, после чего хранились в 70% спирте.
Для получения изображений внешнего строения часть образцов была отснята при помощи сканирующего электронного микроскопа Jeol JSM-6380 после высушивания в критической точке.
Для изучения внутреннего строения зафиксированные образцы были залиты в аралдит, и из полученных блоков были сделаны полные срезы поперечных и продольных срезов (1 и 0,5 мкм толщиной) на микротоме Leica RM2255 с алмазным ножом. Полученные срезы окрашены толуидиновым синим и пиронином.
Для построения трёхмерной модели серия срезов была сфотографирована под
микроскопом Motic BA410 на камеру Toupteck. Трёхмерная компьютерная
реконструкция проведена в программе Bitplane Imaris 7.2.1, а дальнейшая
обработка моделей - в Autodesk Maya 2015.
Глава 3. Результаты
3.1 Морфология
Mesaphorura
3.1.1 Внешнее строение
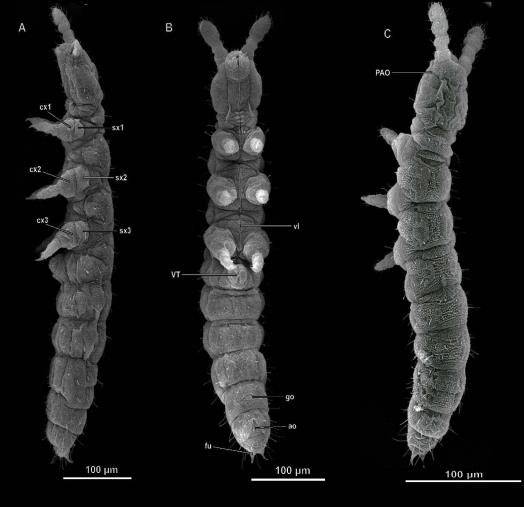
Рис. 4. Внешний вид Mesaphorura sylvatica. A - вид сбоку, B - вид снизу,
C - вид сверху. Условные обозначения:ao -анальное отверстие, cx1 - тазик
первого сегмента груди, cx2 - тазик второго сегмента груди, cx3 - тазик третьего
сегмента груди, fu - анальные шипы, go - половое отверстие, PAO -
постантеннальный орган, sx1 - субкокса первого сегмента груди, sx2 - субкокса
второго сегмента груди, sx3 - субкокса третьего сегмента груди.
Размер взрослых особей около 0,4 мм (рис. 4). На первом сегменте брюшка
расположена вентральная трубка, на последнем - анальные шипы. На голове
расположен постантеннальный орган в продолговатой полости с двумя рядами
везикул. Ложные глазки тела хорошо развиты и представляют собой розетчатую структуру.
Антенны короче диаметра головы. Тергиты хорошо развиты, склериты и плевриты
плохо различимы.
3.1.2 Внутреннее строение
3.1.2.1 Эндоскелет
Толщина кутикулы в среднем - 0, 57 мкм. Максимальное значение - 1,24 мкм,
минимальное - 0,31 мкм.