Материал: билеты
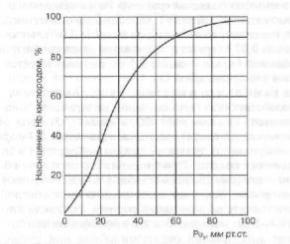
Основная функция гемоглобина - перенос кислорода и частично углекислого газа. Соединение гемоглобина с кислородом - оксигемоглобин - происходит в капиллярах легких. В виде оксигемоглобина переносится большая часть кислорода. Соединение гемоглобина с углекислым газом - карбгемоглобин - происходит в капиллярах тканей организма. В виде карбгемоглобина транспортируется 20% углекислого газа.
Виды гемоглобина.
Структура белковой части гемоглобина человека неоднородна, благодаря чему белковая часть разделяется на ряд фракций.
А-(гемоглобин взрослых)Большая часть гемоглобина взрослого человека (95—98%)
Р (примитивный) до 7-12 нед.у плода
F ( фетальный от 9-36 нед)
Сродство к кислороду гемоглобина А отражает константа Хюфнера. 1 г гемоглобина= 1,34 мл О2. У гемоглобинов Р и F сродство выше , чем у гемоглобина А. т.е они насыщаются при более низких напряжениях О2. Гемоглобин Р при 60-80 мм.рт.ст, F при 40-50 мм.рт.ст.
Виды соединений гемоглобина.
Оксигемоглобин. Кислород образует обратимую связь с гемом (оксигенация), причем валентность железа не изменяется. При этом восстановленный гемоглобин (НЬ) становится оксигенированным НЬО2 (оксигемоглобин), точнее Нb(О2)4 Каждый гем присоединяет по одной молекуле кислорода,
Количество О2, которое может быть связано в 1 л крови у мужчин, составляет 180—200 мл/л (кислородная емкость крови), у женщин она на 6—8% меньше, так как у них меньше Hb. Образование
оксигемоглобина.
Главным фактором, обеспечивающим образование оксигемоглобина, является высокое парциальное давление О2 в альвеолах (100 мм рт.ст.). Связывание кислородом гемоглобином происходит в капиллярах легких очень быстро. Пологий характер кривой образования и диссоцийции оксигемоглобина в верхней ее части свидетельствует о том, что в случае значительного падения Ро2 в легких содержание О2 в крови будет сохраняться достаточно высоким. Так, даже при падении Ро в
136
легких до 60 мм рт.ст. (8,0 кПа) насыщение гемоглобина кислородом равно 90% — это весьма важный биологический факт: организм все еще будет обеспечен О2, т.е. имеется высокая надежность механического обеспечения организма кислородом, что весьма важно для человека при жизни в горах, полетах на низких высотах — до 3 км.
Не только образование оксигемоглобина в легких, но и диссоция в тканях проходит в пределах одного и того же верхнего участка кривой (75-96% насыщения гемоглобина кислородом).
В венозной крови, поступающей в капилляры легких, равно 40 мм рт.ст. (при этом насыщение НЬО2=75%!), а в артериальной крови оно достигает 100 мм рт.ст., как Ро2 в альвеолах. В условиях эксперимента с увеличением Ро3 от 0 до 40 мм рт.ст. насыщение гемоглобина кислородом вначале идет очень быстро, затем сильно замедляется (нижним часть кривой, см. рис. 12.6). Имеется ряд вспомогательных факторов, способствующих оксигенапии крови:
1)отщепление от карими моглобина СО2 и удаление его (эффект Вериго);
2)понижение тсмгпратуры в легких;
3)увеличение рН крови (эффект Бора).
Следует отметить, что с возрастом связывание О2 гемоглобином ухудшается. Диссоциация оксигемоглобина происходит в тканевых капиллярах, куда поступает артериальная кровь. При этом гемоглобин не только отдает О2 тканям, но и присоединяет образовавшийся в ткани СО2.
Главным фактором, обеспечивающим диссоциацию оксигемоглобина, является падение давления кислорода, который быстро потребляется тканями. Поскольку возникает большой градиент Ро2, диссоциация оксигемоглобина идет быстро, и О2 переходит из капилляров в ткань. Длительность полудиссоциации равна 0,02 с (время прохождения каждого эритроцита черт капилляр большого круга
— около 2,5 с), поэтому имеется огромный запас времени для отщепления О2. Весьма важно, что имеется ряд вспомогательных факторов, способствующих диссоциации оксигемоглобина в тканях. К ним относятся:
1)накопление СО2 в тканях;
2)закисление среды;
3)повышение температуры;
4)увеличение количества 2,3-дифосфоглицерата — промежуточного продукта, который образуется в эритроцитах при расщеплении глюкозы.
При гипоксии количество 2,3-дифосфоглицерата образуется больше, что улучшает диссоциацию оксигемоглобина и обеспечение тканей организма кислородом. Ускоряет диссоциацию оксигемоглобина также и АТФ, но в значительно меньшей степени, так как ее в эритроцитах содержится в 4—5 раз меньше, чем 2,3-дифосфоглицерата.
Ускорение диссоциации оксигемоглобина при накоплении CО2 и ионов Н+ в крови объясняется конформационными изменениями белковой части молекулы гемоглобина.
пой части молекулы гемоглобина.
Степень выраженности влияния всех факторов (падение Ро2и рН, накопление СО2 и повышение температуры органа) возрастает при увеличении интенсивности обмена веществ в активно работающем
137

органе. Чем активнее функционирует рабочий орган, тем быстрее потребляется О2 и падает его напряжение, быстрее накапливается СО2, закисляется среда и повышается температура ткани вследствие интенсификации метаболизма — все это ускоряет диссоциацию оксигемоглобина и улучшает доставку О2 к активно функционирующим органам.
2)Карбгемоглобин. HbCO2 –
, соединение гемоглобина (НЬ) с углекислым газом (СО2), участвует в обмене СО2 в организме животных и человека. Выделяющийся в процессе жизнедеятельности тканей СО2 диффундирует в капилляры, где частично вступает в связь с НЬ (отдавшим до того свой кис
лород тканям). В капиллярах лёгких иКарбгемоглобин. легкораспадается на НЬ и СО2. В форме Карбгемоглобина транспортируется ок. 1/3 СО2, выделяемого через лёгкие (б. ч. СО2транспортируется в форме солей уго
льной к-ты, содержащихся в плазме и эритроцитах).
3)Карбоксигемоглобин. Гемоглобин может соединяться с угарным газом (СО), образуя карбоксигемоглобин. Поскольку сродство гемоглобина к СО в 300 раз больше, чем к кислороду, и НЬСО диссоциирует в 10 000 раз медленнее, чем НЬО2, гемоглобин, связанный с СО, не может транспортировать О2. Даже при крайне низких парциальных давлениях угарного газа гемоглобин превращается в карбоксигемоглобин: НЬ+СО—НЬСО. В норме на долю НЬСО приходится лишь 1 % от общего количества гемоглобина крови, у курильщиков — значительно больше: к вечеру он достигает
20%.
4)Метгемоглобин. Гем может подвергаться также истинному окислению (двухвалентное железо превращается в трехвалентное). Окисленный гем носит название гематина (метгема), а вся полипептидная молекула — метгемоглобина. Опасность таких состояний заключается в том, что окисленный гемоглобин очень слабо диссоциирует (не отдает О тканям) и, естественно, не может присоединять дополнительные молекулы О2, т.е. он теряет свои свойства переносчика кислорода. В крови человека в норме метгемоглобин содержится в незначительна количествах не более 1%, но при некоторых заболеваниях, отравлениях определенными ядами, при действии некоторых лекарств, например, фенацетина, его содержание увеличивается.
5)Гликированный гемоглобин. В норме 5,8-6,2% (контроль лечения сахарного диабета)
71. Функциональная система поддержания постоянного количества эритроцитов в сосудистом русле, качество функционирования эритроцитов. Эритропоэз, его оценка и регуляция.
Схема ФС поддержания кол-ва эритроцитов в крови
138
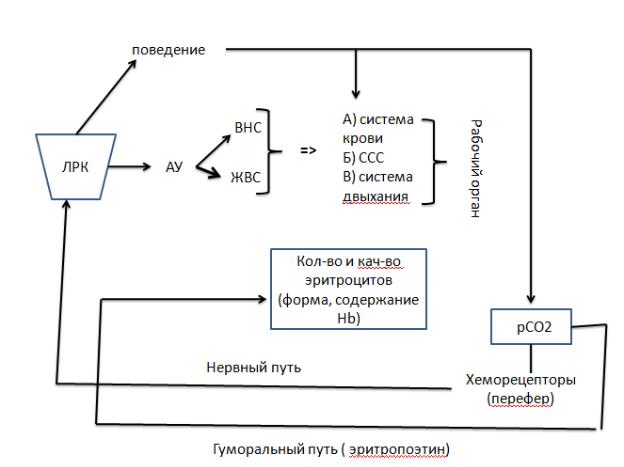
Эритропоэтин синтезируется в почках. Эритропоэтин в спорте допинг.
Физиология эритропоэза
Образование эритроцитов - эритропоэз - осуществляется в красном костном мозге, который находится в плоских костях и метафизах трубчатых костей.
Факторы, обеспечивающие эритропоэз
Железо
Поступает в костный мозг при разрушении эритроцитов, из депо, а также с пищей и водой. Взрослому человеку для нормального эритропоэза требуется в суточном рационе 12—15 мг железа. Железо откладывается в различных органах и тканях, главным образом в печени и селезенке. Если железа в организм поступает недостаточно, то развивается железодефицитная анемия. Всасыванию железа в кишечнике способствует аскорбиновая кислота. В слизистой оболочке тонкой кишки находится белокпереносчик железа — трансферрин. Он доставляет железо в ткани, имеющие трансферриновые рецепторы. В клетке комплекс трансферрина и железа распадается, и железо вступает в связь с другим белком-переносчиком – ферритином. Клетки предшественники зрелых эритроцитов накапливают железо в ферритине. В дальнейшем оно используется, когда клетка начинает образовывать большое количество гемоглобина.
витамин С, который стимулирует всасывание железа из кишечника, усиливает действие фолиевой кислоты и способствует образованию гема.
Медь
139
Усваивается непосредственно в костном мозге и принимает участие в синтезе гемоглобина, способствуя включению железа в структуру гема. Если медь отсутствует, то эритроциты созревают лишь до стадии ретикулоцита. Недостаток меди приводит к анемии.
Витамин В12 и фолиевая кислота
Витамин В12 и и фолиевая кислота принимают участие в синтезе глобина. Они обусловливают образование в эритробластах нуклеиновых кислот, являющихся одним из основных строительных материалов клетки.
витамин В2 необходим для образования липидной стромы эритроцитов
Гормоны
Гормоны, регулирующие обмен белков (соматотропный гормон гипофиза, гормон щитовидной железы
— тироксин и др.) и кальция (паратгормон, тиреокальцитонин).
Мужские половые гормоны (андрогены) стимулируют эритропоэз, тогда как женские (эстрогены) — тормозят его, что обусловливает меньшее число эритроцитов у женщин по сравнению с мужчинами.
Эритропоэтины
Местом синтеза эритропоэтинов являются почки, печень, селезенка, костный мозг. Эритропоэтины оказывают действие непосредственно на клетки предшественники эритроидного ряда . Они вызывают:
ускорение и усиление перехода стволовых клеток костного мозга в эритробласты;
увеличение числа митозов клеток эритроидного ряда;
исключение одного или нескольких циклов митотических делений;
ускорение созревания неделящихся клеток — нормобластов, ретикулоцитов.
«Микроокружение» костного мозга
Фибробласты и эндотелиальные клетки являются источником ростковых факторов кроветворения. На эритропоэз действуют соединения, синтезируемые моноцитами, макрофагами, лимфоцитами и другими клетками, получившие название «интерлейкины».
72. Группы крови, резус-фактор. Правила переливания крови. Кровезамещающие растворы.
Группы крови. На данный момент различают 29 групп крови, среди них: система АВ0, система резусфактор. Группы крови были в начале ХХ века Лендштейнером и Янским.
Классификация групп крови по системе АВ0 основана на наличии или отсутствии на мембране эритроцитов антигенов А и В, а в плазме крови – антител α и β. Агглютинация (склеивание эритроцитов) происходит, если в крови встречаются одноименные агглютиногены и агглютинины (А с α или В с β).
Группы крови |
Аглютиноген (эритроцит) |
Аглютинин (плазма) |
|
|
|
I |
0 |
α β |
|
|
|
II |
A |
β |
|
|
|
140