Курсовая работа (т): Биологические особенности сибирской ряпушки в связи с её искусственным разведением
Подготовка эмбрионов к выходу из оболочки один из критических периодов эмбрионального
развития (Мешков, 1965). Известно, что выделение ферментов из желез вылупления
происходит под влиянием изменений светового и температурного режимов, химизма
воды, а также вследствие действия на икру толчков и встряхиваний (Богданов,
2006).
.3 Постэмбриональное развитие
Вылупление личинок ряпушки происходит дружно в короткий срок за 6-8 дней
при температуре воды 3,5-7,0 °С, но при более низких температурах (1,5-5,0 °С)
этот процесс растягивается до 10-15 дней. Предличинки мелкие: длина тела -
7,50-7,53 мм, масса - 2,10-2,18 мг (табл. 2).
Таблица 2 - Морфометрические показатели предличинок сибирской ряпушки массового вылупления
|
Показатель |
Колебания средних величин |
|
Длина, мм общая тела |
7,91-7,95 7,50-7,53 |
|
Высота, мм тела желтка |
0,57-0,60 0,56-0,57 |
|
Масса, мг тела желтка |
2,10-2,18 0,07-0,08 |
|
Масса желтка от массы тела, % |
3,20-3,80 |
|
Диаметр жировой капли, мм |
0,67-0,69 |
Личиночные этапы охватывают развитие от начала активного питания внешней
пищей до малькового периода. Время наступления этапов определяется условиями
обитания, температурным фактором, обеспеченностью кормом. Ряпушка сибирская
переходит на экзогенное питания, как и другие сиговые, когда количество желтка
определяется как остаточное. В этот момент особи внутри вида, независимо от
сроков и стадии вылупления, длительности и температуры выдерживания, имеют
одинаковую, степень развития жаберно-челюстного аппарата, дифференцировку
плавниковой каймы, интенсивность пигментации и близкие линейно-весовые
показатели. У личинок, не получающих экзогенный корм после резорбции желтка,
вначале происходит увеличение длины тела и количества жаберных лепестков на
жаберных дугах, дифференциация плавников, а в дальнейшем развитие прекращается:
исчезает скопление мезенхимы в спинном плавнике, уменьшается высота тела,
исчезает жировая капля или сохраняются ее небольшие остатки, снижаются масса и
упитанность тела. При сравнении степени развития сибирской ряпушки с другими
видами сиговых при переходе на личиночный этап установлено, что она более
развита, чем пелядь, но менее, чем муксун, занимая между ними промежуточное
положение (Сергиенко, 2015).
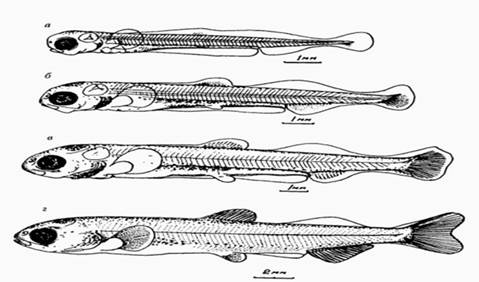
Рисунок 2 - Личиночное развитие сибирской ряпушки (Богданов, 1998).
В таблице 3 приведена морфологическая характеристика этапов личиночного
периода сибирской ряпушки.
Таблица 3 - Морфологическая характеристика этапов личиночного периода сибирской ряпушки
|
Показа |
|
|
|
Этап |
|
|
|
|||||
|
тель |
I |
II |
III |
IV |
V |
VI |
VII |
|||||
|
Места |
Начало |
Область |
Область |
Лучей хво |
Начало пиг |
Боковой |
Спинного |
|||||
|
пигмента |
пигмента |
переднего |
слуховых |
стового |
ментации |
части туло |
плавника, |
|||||
|
ции |
ции обла |
мозга, обо |
пузырей, |
плавника у |
боковой ли |
вища, лу |
слабая пиг |
|||||
|
|
сти перед |
нятельных |
начало пиг |
основания, |
нии, хвосто |
чей хвосто |
ментация |
|||||
|
|
него мозга |
долей, |
ментации |
начало пиг |
вой плавник |
вого плав |
туловища, |
|||||
|
|
|
верхней |
лучей хво |
ментации |
пигменти |
ника за |
хвостовые |
|||||
|
|
|
челюсти, |
стового |
нижней че |
рован у ос |
середину, |
лучи пиг |
|||||
|
|
|
жаберных |
плавника у |
люсти |
нования |
слабая |
ментирова |
|||||
|
|
|
крышек, |
основания |
|
|
пигмента |
ны почти до |
|||||
|
|
|
жаберных |
|
|
|
ция спин |
конца |
|||||
|
|
|
дуг |
|
|
|
ного плав |
|
|||||
|
|
|
|
|
|
|
ника |
|
|||||
|
Количе |
6 лепест |
8-10 ле |
12-16 ле |
Жаберные |
- |
- |
- |
|||||
|
ство ле |
ков, |
пестков, |
пестков, в |
лепестки за |
|
|
|
|||||
|
пестков + |
2-4 бугор |
2-4 бугорка |
конце ста |
кладывают |
|
|
|
|||||
|
бугорков |
ка |
|
дии закла |
ся на всем |
|
|
|
|||||
|
на 2й и |
|
|
дываются 6- |
протяжении |
|
|
|
|||||
|
3й жа |
|
|
8 бугорков |
верхних дуг |
|
|
|
|||||
|
берных |
|
|
на верхней |
до конца |
|
|
|
|||||
|
дугах |
|
|
стороне дуг |
|
|
|
|
|||||
|
Хвостовой |
Начало за |
4-5 гипу |
Конец хор |
20 ребри |
20 лучей не |
20 лучей |
По 4 боко |
|||||
|
плавник |
кладки ги |
ралий, 12- |
ды загиба |
стых лучей, |
доходят до |
доходят до |
вых луча с |
|||||
|
|
пуралий и |
14 мезен |
ется кверху; |
одна линия |
конца плав |
конца |
каждой сто |
|||||
|
|
мезенхим |
химных |
18 лучей, |
членисто |
никовой |
плавнико |
роны, |
|||||
|
|
ных лучей |
лучей |
начинается |
сти, в конце |
складки, в |
вой склад |
3 линии чле |
|||||
|
|
|
|
их окосте |
этапа 2 по |
конце этапа |
ки, две ли |
нистости. |
|||||
|
|
|
|
нение (реб |
логие выем |
закладыва |
нии члени |
Лучи выхо |
|||||
|
|
|
|
ристость) |
ки на конце |
ется вторая |
стости, |
дят за край |
|||||
|
|
|
|
|
хвостовой |
линия чле |
появляются |
плавниковой |
|||||
|
|
|
|
|
плавнико |
нистости |
боковые |
складки |
|||||
|
|
|
|
|
вой складки |
|
лучи по бо |
|
|||||
|
|
|
|
|
|
|
кам плавника |
|
|||||
|
Спинной |
Слабое |
Скопление |
Мускульные |
Начало за |
8 лучей, вы |
12 лучей не |
12 ребри |
|||||
|
плавник |
скопление |
мезенхимы |
почки |
кладки хря |
сотой до се |
до конца |
стых лучей |
|||||
|
|
мезенхимы |
и закладка |
|
щевых лу |
редины |
плавнико |
до конца |
|||||
|
|
|
мускуль |
|
чей |
плавниковой |
вой склад |
плавниковой |
|||||
|
|
|
ных почек |
|
|
складки |
ки |
складки |
|||||
|
Анальный |
Слабое |
Скопление |
Мускуль |
Мускуль |
Закладка 8 |
14 лучей |
14 лучей |
|||||
|
плавник |
скопление |
ные почки |
ные почки |
мезенхимных |
не до кон |
не до кон |
||||||
|
|
мезенхимы |
|
в конце |
|
лучей |
ца плавни |
ца плавни |
|||||
|
|
|
|
этапа |
|
|
ковой |
ковой |
|||||
|
|
|
|
|
|
|
складки |
складки |
|||||
|
Грудные |
- |
- |
- |
Скопление |
Закладыва |
8 лучей в |
10 лучей |
|||||
|
плавники |
|
|
|
мезенхимы |
ются 4 ме |
верхней |
не до кон |
|||||
|
|
|
|
|
|
зенхимных |
части |
ца плавни |
|||||
|
|
|
|
|
|
луча |
плавников |
ковой |
|||||
|
|
|
|
|
|
|
|
складки |
|||||
|
Глубина вы |
От слабо |
Седловидная, |
Vобразная |
В конце |
- |
- |
- |
||||||
|
емки на |
выражен |
до ⅓ ширины |
выемка до |
этапа по |
|
|
|
||||||
|
спинной |
ной до |
плавниковой |
⅔ ширины |
чти полное |
|
|
|
||||||
|
стороне |
седловид |
складки |
плавнико |
разделение |
|
|
|
||||||
|
плавниковой |
ной |
|
вой складки |
жирового и |
|
|
|
||||||
|
складки |
|
|
|
спинного |
|
|
|
||||||
|
|
|
|
|
плавников |
|
|
|
||||||
|
Плавательный |
- |
- |
- |
- |
В конце этапа |
- |
- |
||||||
|
пузырь |
|
|
|
|
заполняется |
|
|
||||||
|
|
|
|
|
|
воздухом |
|
|
||||||
В эмбриональном развитии сиговых рыб выделяют нечувствительные стадии,
когда икринки можно перевозить, перебирать и исследовать без опасения массовой
гибели партии икры: после оплодотворения и до стадии мелкоклеточной морулы; от
стадии пигментации глаз и до появления и образования жаберных лепестков
(Саковская, 1991).
ГЛАВА 2. ВЛИЯНИЕ РАЗЛИЧНЫХ ФАКТОРОВ СРЕДЫ НА СИБИРСКУЮ РЯПУШКУ
.1 Влияние параметров водной среды (температура, гидрохимические
показатели)
Температура воды является одним из важнейших факторов, оказывающих воздействие на отправление жизненных функций рыбы, определяющих ее рост и развитие. Этот фактор действует на рыбу как непосредственно - изменяя интенсивность ферментативных процессов, происходящих в организме, активность потребления пищи, характер обмена веществ, ход развития половой системы и прочие, так и косвенно, оказывая влияние на улучшение или ухудшение состояния кормовой базы (Иванов, 1988).
Рассматривая сиговых рыб по отношению к температуре можно отметить, что это холодолюбивые, зачастую стенотермные формы.
Так, сибирская ряпушка - холодолюбивая, пойкилотермная рыба. Крайние температуры, при которых она способна выживать 0-250С. Ряпушка перестает питаться при 18-200С, а максимальный рост наблюдается при температуре воды 8-150С. Повышение температуры свыше 230С переносится плохо и зачастую вызывает гибель организма (Сергиенко, 2015).
Нерест ряпушки обычно начинается при температурах воды 6-80С и заканчивается при охлаждении воды до 0-20С.
Хотя влияние температуры воды на миграции рыб очевидно, необходимо указать, что она при этом не является единственным и определяющим фактором, а воздействует в совокупности с другими условиями среды.
Продолжительность инкубационного периода и время выклева также напрямую зависят от температуры. Минимальная температура во время развития эмбрионов, в зависимости от типа нерестилища, может составить от 0,1 до 30С. Инкубационный период проходит без отклонений от нормы, если температура воды соответствует 8-100С, а повышение ее ускоряет развитие только до определенной границы. Если значительное повышение температуры пришлось на период гаструляции, то резко возрастает % уродств, в худшем случае, происходит гибель организма на ранних стадиях эмбрионального развития или ранних этапах постэмбриогенеза. При повышении температуры личинки выходят из яйца меньших размеров и морфологически недоразвитыми.
В зависимости от температуры воды изменяется и количество растворенного в воде кислорода, который необходим для дыхания рыб. При понижении температуры содержание кислорода в воде увеличивается, а при повышении уровень кислорода снижается. Обмен веществ и потребление кислорода увеличивается прямопропорционально повышению температуры воды и, наоборот, уменьшается с ее понижением. Но это происходит только в определенных температурных пределах (Шкорбатов, 1966).
По количеству кислорода, необходимого для нормального развития, всех рыб делят на несколько групп, в которых сиговые занимают положение рыб, нуждающихся в очень больших количествах кислорода (7-11 мг/л). При содержании его до 5 мг/л дыхание их делается, практически, невозможным. То есть, представители лососевых относятся к оксигенофильным рыбам, что объясняет их требовательность к кислородному режиму.
Количество растворенного в воде кислорода зависит от температуры, солености, ледового покрова, развития растительности, процессов распада органических веществ и других факторов.
Немаловажной является и активная реакция среды. Влияние степени концентрации водородных и гидроксильных ионов на гидробионтов установлено. Жизнедеятельность каждого вида рыб протекает нормально лишь в определенных границах концентраций. Как правило, активная реакция среды зависит от соотношения растворенного в воде кислорода и свободной углекислоты, и изменяется в зависимости от суточного и сезонного хода фотосинтеза.
Так как жизненный цикл ряпушки складывается из нескольких периодов, то и воздействие активной реакции среды на организм в каждом из них будет различным. Как правило, пресные воды подвержены большим колебаниям рН что связано, главным образом, с цветением воды и массовым развитием планктонных водорослей. В свою очередь, выделившиеся в большом количестве гуминовые кислоты, угнетают рост рыбы. Также избыток СО2 в пресных водах вызывает увеличение кислотности.
Как для сиговых, так и для других видов рыб, изменение границ рН вызывает нарушения в обмене веществ, так как снижается способность организма поглощать кислород. Оптимальная величина рН для сиговых составляет от 7 до 8.
Оптимальная рН для ряпушки входит в эти пределы (7-8), то есть предпочтение отдается нейтральной или слабощелочной среде. Кислая среда, в любых своих проявлениях, угнетающе действует на молодь.
Если же рН составляет меньше 5,6, ряпушка уже не может нормально размножаться, а реакция среды со значениями выше 9 и более приводит к ее гибели (Сергиенко, 2015).
Нитриты (NO2) накапливаются при повышенном уровне аммиака, могут вызывать окисление двухвалентного железа гемоглобина крови в трехвалентное железо метгемоглобина, неспособного переносить кислород. При этом кровь приобретает коричневый цвет.
Для сиговых порог токсичности нитритов колеблется от 0,1 до 1 мг. При
хорошей аэрации нитриты окисляются до нитратов. Нитраты становятся токсичными
при концентрации 100-300 мг/л.
2.2 Влияние освещенности, уровня и течения воды на сибирскую ряпушку
Свет в жизни рыб играет огромную роль. В зависимости от стадии онтогенеза, физиологического состояния, а также видоспецифических особенностей организм по-разному реагирует на действие светового фактора. Уже в период эмбриогенеза действие светового фактора оказывает значительное влияние на формирование будущего организма. Доказано, что у осенненерестующих рыб наблюдается более быстрое развитие икры в темноте, вследствие чего происходит более ранний выклев. Свет оказывает отрицательное влияние на развитие скелета у эмбрионов данных видов (Коровина и др., 1965).
На ранних этапах постэмбриогенеза для сибирской ряпушки свет является основным фактором, обеспечивающим пищепотребление, оборонительные реакции, вертикальные и горизонтальные миграции, способствующие сохранению и распространению вида. Личинки сибирской ряпушки проявляют положительный фототаксис и более низкую пороговую чувствительность к свету по сравнению с особями, находящимися на более поздних этапах развития. В дальнейшем, при переходе мальков на тип питания, характерный для взрослых особей данного вида, и в начале функционирования других рецепторных систем, участвующих в процессе пище добывания, отношение рыбы к действию светового фактора изменяется (Иванов, 1988).
Особую роль играет свет в жизни ряпушки в период их полового созревания. Фотопериодизм является одним из наиболее важных факторов окружающей среды, обеспечивающих созревание половых продуктов у многих видов рыб (Потапова, 1978).
Для большинства видов сиговых рыб течение воды в реке является стимулирующим фактором для созревания половых продуктов и при нересте. Вместе с тем уровень воды в реке также имеет большое значение для этих рыб. Течение облегчает скат рыбы, с другой определяет направление миграции. Это означает, что чем сильнее течение, тем благоприятнее условия миграции с точки зрения энергетических затрат рыбы и тем однозначное для нее направление перемещения (Иванов, 1988).
Одним из наиболее перспективных холодноводных объектов аквакультуры
является сибирская ряпушка. Зрительная система этого вида пока не подвергалась
детальному изучению. Учитывая, однако, что ряпушка является типичным
планктофагом, можно предположить, что ей в определенной степени свойственны
закономерности, установленные для других планктофагов, которые остаются
наиболее чувствительными к свету на протяжении всего периода онтогенеза. Этих
рыб называют зрительными, так как все виды их активности связаны со светлым
периодом суток. Они обитают в верхних, наиболее освещенных слоях воды. По
сравнению с рыбами других видов планктофаги имеют наибольшую контрастную
чувствительность сетчатки глаза (Гирса, 1981). Известно, что у ранних личинок
сибирской ряпушки проявляется ярко выраженный положительный фототаксис и что
интенсивность потребления кислорода у них на свету возрастает (Шкорбатов,
1966).
ГЛАВА 3. УПРАВЛЕНИЕ ПОЛОВЫМИ ЦИКЛАМИ У СИБИРСКОЙ РЯПУШКИ РАЗЛИЧНЫМИ МЕТОДАМИ
Методы стимулирования полового созревания производителей при искусственном выращивании рыб получают все большее распространение в связи с ростом масштабов рыбоводства и нарастающими потребностями населения в пищевой продукции. Они позволяют сократить время выдерживания рыб до момента получения зрелых половых продуктов, сдвигать сроки инкубации икры и увеличивать период выращивания молоди в первый вегетационный сезон. Для получения качественных половых продуктов необходимо учитывать биологические и физиологические особенности разводимых видов рыб, в соответствии с которыми выбирается один из трех разработанных учеными рыбоводами методов стимулирования: экологический, физиологический, комбинированный.
Процесс созревания сиговых рыб во многом зависит от температурных и гормональных факторов, соответственно, в рыбоводстве применяют экологическую стимуляцию сиговых.
Сущность экологического метода заключается в следующем:
из естественной популяции или искусственно созданного маточного стада отбираются здоровые рыбы, от которых планируется получить половые продукты в ранние сроки;
отобранные рыбы размещаются в бассейны или садки (самки и самцы раздельно);
в рыбоводных емкостях устанавливаются условия, близкие к нерестовым;
регулируются температурный режим, проточность и освещенность.
В этих условиях происходит интенсивное созревание половых продуктов и рыбы нерестятся на 2-3 месяца раньше, чем в естественных условиях обитания (Кучко, 2015).
Среди сиговых сибирская ряпушка - одна из выносливых к абиотическим факторам среды вид, обладающий высокими потенциальными возможностями роста, отличающийся скороспелостью.
Производителей сиговых рыб для рыбоводных целей отлавливают на нерестилищах или на подходах к ним. В реках в безледный период на чистых тоневых участках производителей отлавливают закидными неводами (Черняев, 1987).
В реках с большой скоростью течения или с заболоченными берегами применяют различные типы ловушек (вентеря, моды и т. д.). Зрелых производителей используют в первую очередь, рыб с недозревшими половыми продуктами оставляют в садках для выдерживания. Сиговые хорошо переносят перевозку в живорыбных лодках при температуре не выше 10°С. Возможность транспортировки производителей в живорыбных лодках позволяет начинать их отлов на две недели раньше и дает возможность заготовить наибольшее их количество.
Отлов производителей сиговых следует начинать при снижении температуры воды в водоеме до 10 °С и заканчивать при наступлении ледостава. За указанный период одна неводная бригада (6 чел.) 500-метровым неводом способна обловить около 500 га глубоководных маточных озер и заготовить до 50 тыс. производителей.
Поскольку нерест у сиговых очень растянут (более 3 мес.), производителей до созревания половых продуктов выдерживают в садках. Высокую выживаемость производителей можно обеспечить при создании благоприятных условий в садках (эластичность стенок, достаточная глубина, хороший водообмен и благоприятный гидрохимический режим).
Для размещения русловых садков следует использовать небольшие речки и ручьи, связывающие озера. Ручей нужно расширить и углубить, превратив его в канал, длина которого будет зависеть от необходимой площади русловых садков: ширина - до 9м, глубина - до 1,5 м. На концах канала строят водонапорные деревянные плотины с открытыми водосливами. Верхняя плотина должна обеспечивать подъем уровня воды в головном озере до 1 м и необходимый водообмен в канале в течение всего периода выдерживания. Нижняя плотина дает возможность регулировать уровень воды в канале.
Садки длиной 30 м, шириной до 9 м и глубиной не менее 1 м отделяют друг от друга водонепроницаемыми стенками из досок, обитых полиэтиленовой пленкой или забетонированных, а дно засыпают песком. Отловленных производителей выпускают в канал.