Материал: fiza_5_semestr_2_reyting_1
23. Транспорт кислорода. Кривая диссоциации оксигемоглобина.
О2 переносится к тканям в двух формах: связанный с гемоглобином и растворенный в плазме. В крови содержится лишь незначительное количество О2, растворимого в плазме. Согласно закону Генри, количество газа, растворенного в жид¬ кости, прямо пропорционально его парциальному давлению и коэффи¬ циенту растворимости. Растворимость О2 в плазме крови низка: при РО2 = = 1 мм рт.ст. в 100 мл крови растворяется 0,0031 мл О2
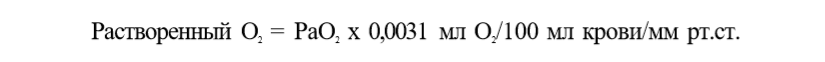
При нормальных физиологических условиях (РаО2 = 100 мм рт.ст.) в 100 мл крови растворяется 0,31 мл О2, т.е. 0,31 об.%. Такое количество О2 не обеспечивает потребности организма, поэтому основное значение име¬ ет другой способ переноса — в виде связи с гемоглобином внутри эритро¬ цита. Гемоглобин является основным протеином эритроцитов. Главной функцией гемоглобина является транспорт О2 от легких к тканям и транс¬ порт СО2 от тканей к легким. Каждая молекула гемоглобина человека со¬ стоит из белка глобина и гема. Основной глобин взрослых — НЬА являет¬ ся тетрамером, состоящим из двух полипептидных цепей а и двух поли¬ пептидных цепей р. В спиральную структуру каждой полипептидной цепи глобина встроен гем, который является комплексным соединением двух¬ валентного иона железа Fe2+ и порфирина. Ион железа гема способен присоединять одну молекулу О2, т.е. одна молекула гемоглобина способна связать 4 молекулы О2 Следует особо подчеркнуть уникальные особенно¬ сти иона Fe2+ тема обратимо связывать молекулу О2 НЬ + О2 <-> НЬО2, в то время как обычно при реакции изолированного Fe2+ и кислорода обра¬ зуется Fe3+. Окисленный ион Fe3+ не способен высвобождать О2, т.е. об¬ разуется необратимая связь, а связь иона Fe2+ тема с О2 происходит за счет конформационных изменений третичной и четвертичной структуры глобина, она обратима, т.е. в тканях происходит высвобождение О2 Гемоглобин, связанный с четырьмя молекулами О2, называется оксигемоглобином, а гемоглобин, не содержащий О2или менее четырех молекул О2, — деоксигенированным гемоглобином. 1 г гемоглобина способен максимально связать 1,34 мл О2 Учитывая, что нормальное содержание гемоглобина составляет 15 г/100 мл, можно рассчитать, что в 100 мл крови максимально может содержаться 20.1 мл О2 связанного с гемоглобином. Данная величина называется кислородной емкостью крови (КЕК):
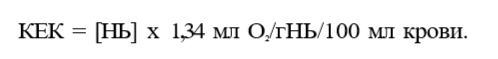
Наиболее важным параметром, определяющим количество кислорода, связанного с гемоглобином, является насыщение гемоглобина кислоро¬ дом — сатурация (SаО2), который рассчитывают по формуле:
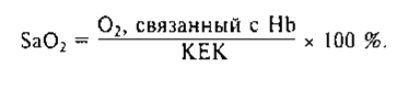
При РаO2, равном 100 мм рт.ст., насыщение гемоглобина кислородом артериальной крови составляет около 97 %. В венозной крови (РО2 = 40 мм рт.ст.) SaO2 приблизительно равна 75 %.
Кривая диссоциации оксигемоглобина Зависимость насыщения гемоглобина О2 от парциального напряжения О2 может быть представлена графически в виде кривой диссоциации окси¬ гемоглобина. Кривая имеет сигмовидную форму, при этом нижняя часть кривой (РаО2< 60 мм рт.ст.) имеет крутой наклон, а верхняя часть (РаО2 > 60 мм рт.ст.) относительно пологая. Нижний участок кривой диссоциа¬ ции оксигемоглобина показывает, что при снижении РаО2 продолжается насыщение гемоглобина кислородом,т.е. ткани продолжают извлекать до¬ статочное количество О2 из крови. Верхняя пологая часть кривой демонст¬ рирует относительное постоянство насыщения гемоглобина кислородом, а следовательно, и содержания кислорода в крови независимо от изменений РаО2 (рис. 7.9).
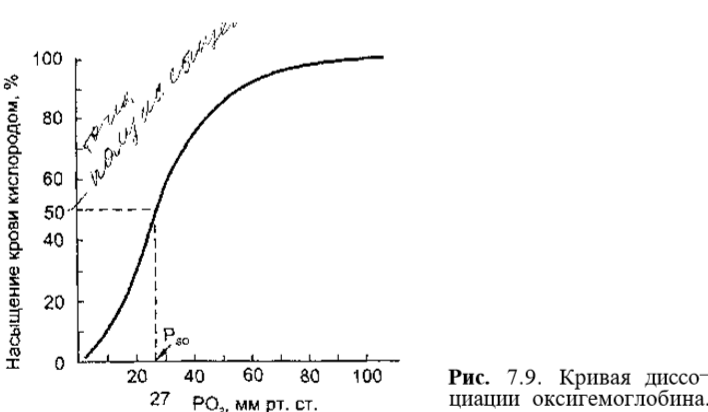
Положение кривой диссоциации оксигемоглобина зависит от сродства гемоглобина с кислородом. При снижении сродства гемоглобина к О2, т.е. облегчении перехода О2 в ткани, кривая сдвигается вправо. Повышение сродства гемоглобина к О2 означает меньшее высвобождение кислорода в тканях, при этом кривая диссоциации сдвигается влево. Важным показате¬ лем, отражающем сдвиги кривой диссоциации оксигемоглобина, является параметр Р50, т.е. такое РО2, при котором гемоглобин насыщен кислоро¬ дом на 50 % (см. рис. 7.9). В нормальных условиях у человека (при t 37 °С, рН 7,40 и РаСО2= 40 мм рт.ст.) Р5о - 27 мм рт.ст. При сдвиге кривой дис¬ социации вправо Р50 увеличивается, а при сдвиге влево — снижается. На сродство гемоглобина к О2оказывают влияние большое количество метаболических факторов, к числу которых относятся рН, РСО2 темпера¬ тура, концентрация в эритроцитах 2,3-дифосфоглицерата (2,3-ДФГ). Сни¬ жение рН, повышение РСО2 и температуры снижают сродство гемоглоби¬ на к О2 и смещению кривой вправо. Такие метаболические условия созда¬ ются в работающих мышцах, и такой сдвиг кривой является физиологиче¬ ски выгодным, так как повышенное высвобождение О2необходимо для активной мышечной работы. В противоположность этому повышение рН, снижение температуры и снижение РСО2(такие условиях создаются в лег¬ ких) смещают кривую диссоциации оксигемоглобина влево (рис. 7.10).
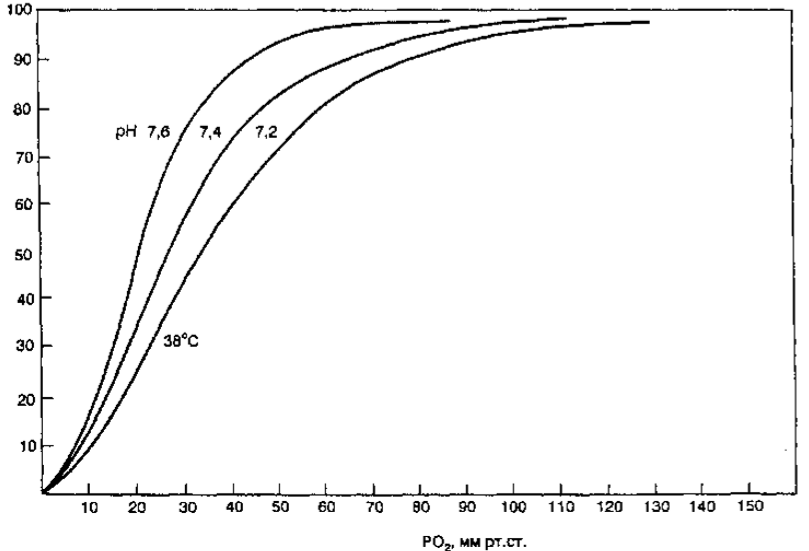
Влияние рН и РаСО2 на кривую диссоциации называется эффектом Бора. 2,3-ДФГ образуется в эритроцитах в процессе гликолиза и выполняет функцию главного энергетического субстрата (в эритроцитах отсутствуют митохондрии, поэтому не происходят реакции окислительного фосфорилирования, и АТФ не имеет большого значения как источник энергии). В условиях продолжительной гипоксии увеличивается содержание 2,3-ДФГ в эритроцитах, что приводит к снижению сродства гемоглобина к O2 и более интенсивному переходу его из крови в ткани. Снижение концентра¬ ции 2,3-ДФГ в эритроцитах приводит к сдвигу кривой диссоциации влево. На кривую диссоциации оксигемоглобина может оказать влияние и окись углерода (СО). СО имеет сродство к гемоглобину в 240 раз выше, чем О2, и, связываясь с гемоглобином, образует карбоксигемоглобин (НЬСО). При этом даже небольшие количества СО могут связать большую часть НЬ крови и значительно уменьшить содержание О2 крови. Кроме того, СО сдвигает кривую диссоциации влево, что препятствует высвобож¬ дению О2 в тканях и также усугубляет гипоксию. Еще одним фактором, влияющим на сродство НЬ к кислороду, является метгемоглобин — гемоглобин, содержащий железо, окисленное до Fе3+. У здорового человека общее содержание метгемоглобина не превышает 3 %, однако при приеме некоторых лекарств (например, фенацетин, суль¬ фаниламиды, нитроглицерин) и дефиците фермента метгемоглобин-редуктазы происходит образование значительных количеств метгемоглобина. Метгемоглобинемия вызывает смещение кривой диссоциации влево, т.е препятствует высвобождению в тканях, а при повышении концентрации метгемоглобина более 60 % происходит также и уменьшение нормального НЬ, что приводит к тяжелой гипоксии.
24.Доставка кислорода к тканям и потребление ими кислорода.
Кислород переносится к тканям в двух формах: связанный с гемоглобином и растворенный в плазме. Основная часть кислорода переносится в связанной форме с гемоглобином. Ион железа гема способен присоединять одну молекулу кислорода, т.е. одна молекула гемоглобина способна связать 4 молекулы кислорода. Окисленный ион Fe3+ не способен высвобождать кислород, т.е. образуется необратимая связь, а связь иона Fe2+ гема с кислородом происходит за счет конформационных изменений третичной и четвертичной структуры глобина, она обратима, т.е. в тканях происходит высвобождение кислорода.
Гемоглобин, связанный с 4 молекулами кислорода, называется оксигемоглобин. 1 г гемоглобина способен максимально связать 1,34 мл кислорода.
Кислородная емкость крови-количество 02, которое связывается кровью до полного насыщения гемоглобина.
Изменение концентрации гемоглобина в крови, например, при анемиях, отравлениях ядами изменяет ее кислородную емкость.
При рождении в крови у человека более высокие значения кислородной емкости и концентрации гемоглобина. Насыщение крови кислородом выражает отношение количества связанного кислорода к кислородной емкости крови, т.е. под насыщением крови 02 подразумевается процент оксигемоглобина по отношению к имеющемуся в крови гемоглобину. В обычных условиях насыщение О2 составляет 95 — 97%. При дыхании чистым кислородом насыщение крови 02 достигает 100%, а при дыхании газовой смесью с низким содержанием кислорода процент насыщения падает. При 60 — 65% наступает потеря сознания.
25.Транспорт углекислого газа.
Углекислый газ является конечным продуктом клеточного метаболизма. СО2 образуется в тканях, диффундирует в кровь и переносится кровью к легким в трех формах: растворенной в плазме, в составе бикарбоната и в виде карбаминовых соединений эритроцитов. Количество СОг, растворимого в плазме, как и для О2 определяется за¬ коном Генри, однако его растворимость в 20 раз выше, поэтому количест¬ во растворенного СО2 довольно значительно и составляет до 5—10 % от общего количества СО2крови. Реакция образования бикарбоната описывается следующей формулой:
СО2 + Н2О <-> Н2СО3<-» Н+ + HCO3-.
Первая реакция протекает медленно в плазме и быстро — в эритроцитах, что связано с содержанием в клетках фермента карбоангидразы. Вторая ре¬ акция — диссоциация угольной кислоты — протекает быстро, без участия ферментов. При повышении в эритроците ионов HCO3- происходит их диффузия в кровь через клеточную мембрану, в то время как для ионов Н+ мембрана эритроцита относительно непроницаема и они остаются внутри клетки. Поэтому для обеспечения электронейтральности клетки в нее из плазмы входят ионы СГ (так называемый хлоридный сдвиг) (рис. 7.11). Высвобождающиеся ионы Н+ связываются с гемоглобином: Н+ + НЬО2 <-> Н+ • НЬ + O2.
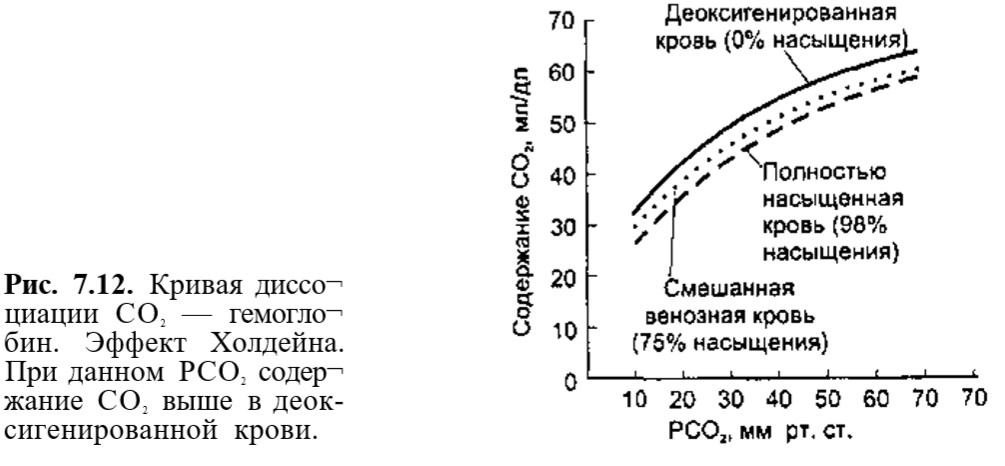
Восстановленный гемоглобин является более слабой кислотой, чем оксигемоглобин. Таким образом, наличие восстановленного НЬ в венозной крови способствует связыванию СО2, тогда как окисление НЬ в сосудах легких облегчает его высвобождение. Такое повышение сродства СО2 к ге¬ моглобину называется эффектом Холдейна. На долю бикарбоната прихо¬ дится до 90 % всего СОг, транспортируемого кровью. Карбаминовые соединения образуются в результате связывания СО2 с концевыми группами аминокислот белков крови, важнейшим из которых является гемоглобин (его глобиновая часть): НЬ • NH2 + СО2 ----- НЬ • NH • СООН. В ходе этой реакции образуется карбаминогемоглобин. Реакция протека¬ ет быстро и не требует участия ферментов. Как и в случае с ионами Н+, вос¬ становленный НЬ обладает большим сродством к СО2, чем оксигемоглобин.
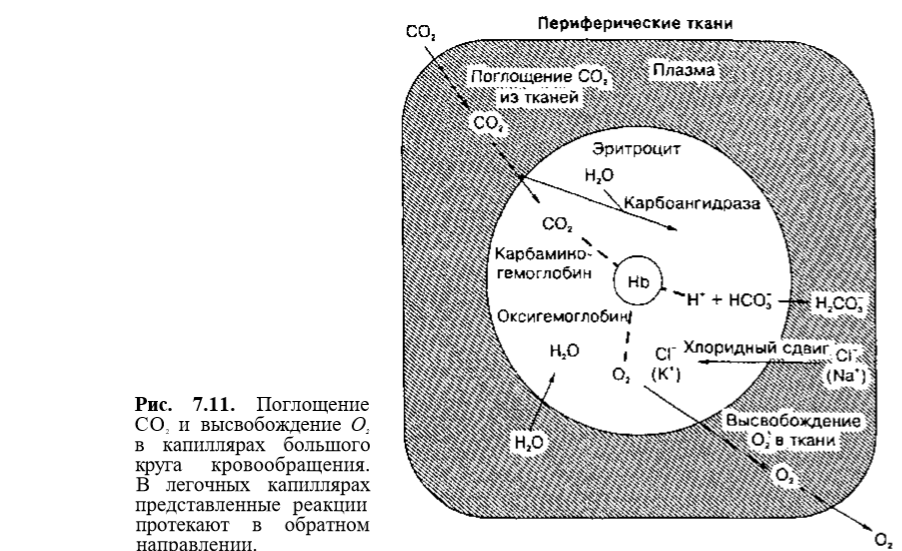
Поэтому деоксигенированный гемоглобин облегчает связывание СО2 в тка¬ нях, а соединение НЬ с О2 способствует высвобождению СО2. В виде карбаминовых соединений содержится до 5 % общего количества СО2 крови. Кривая диссоциации СО2 — гемоглобин значительно отличается от кривой диссоциации оксигемоглобина — она более линейна (рис. 7.12). Концентрация СО2 при любой величине РСО2 зависит от степени насы¬ щения гемоглобина кислородом: чем выше насыщение, тем меньше кон¬ центрация СО2 (эффект Холдейна). Определение парциального напряжения О2 и СО2 крови проводится при помощи автоматических газоанализаторов, использующих для каждого из измеряемых газов специальный электрод.
26.Дыхательный центр продолговатого мозга, его функции. Локализация и функциональные свойства дыхательных нейронов продолговатого мозга.
Под дыхательным центром понимают совокупность нейронов специфических (дыхательные) ядер продолговатого мозга, способных генерировать дыхательный ритм. В физиологических условиях дыхательный центр получает афферентные сигналы от периферических и центральных хеморецепторов, сигнализирующих соответственно о парциальном давлении О2в крови и концент¬ рации Н+ во внеклеточной жидкости мозга. В период бодрствования дея¬ тельность дыхательного центра регулируется дополнительными сигналами, исходящими из различных структур ЦНС. У человека это, например, структуры, обеспечивающие речь. Речь (и особенно пение) может в значи¬ тельной степени отклонить напряжение газов крови от нормального уров¬ ня и даже снизить реакцию дыхательного центра на гипоксию или гиперкапнию. Афферентные сигналы от хеморецепторов тесно взаимодействуют с другими афферентными стимулами дыхательного центра, но в конечном счете гуморальный контроль дыхания всегда доминирует над нейрогенным. Например, человек произвольно не может бесконечно долго задерживать дыхание из-за нарастающих во время остановки дыхания гипоксии и гиперкапнии. Дыхательный центр выполняет две основные функции в системе дыха¬ ния: моторную, или двигательную, регулирующую сокращения дыхатель¬ ных мышц, и гомеостатическую, изменяющую характер дыхания при сдвигах содержания О2 и СО2 во внутренней среде организма. Двигательная функция дыхательного центра заключается в генерации дыхательного ритма и его паттерна. Под генерацией дыхательного ритма понимают генерацию дыхательным центром вдоха и его прекращение. Под паттерным дыханием следует понимать длительность вдоха и выдоха, величину дыхательного объема, минутного объема дыхания. Моторная функция дыхательного центра адаптирует дыхание к метаболическим по¬ требностям организма, приспосабливает дыхание в поведенческих реак¬ циях, а также осуществляет интеграцию дыхания с другими функциями ЦНС. Гомеостатическая функция дыхательного центра поддерживает норма¬ льные величины дыхательных газов (О2, СО2) и рН в крови и внеклеточ¬ ной жидкости мозга, регулирует дыхание при изменении температуры тела, адаптирует дыхательную функцию к условиям измененной газовой среды, например при пониженном и повышенном барометрическом дав¬ лении. Локализация и функциональные свойства дыхательных нейронов. Нейро¬ ны дыхательного центра локализованы в дорсомедиальной и вентролатеральной областях продолговатого мозга и образуют так называемые дорсаль¬ ную и вентральную дыхательную группу. Дыхательные нейроны, активность которых вызывает инспирацию или экспирацию, называются соответственно инспираторными и экспираторны¬ ми нейронами. Инспираторные и экспираторные нейроны иннервируют дыхательные мышцы. В дорсальной и вентральной дыхательной группах
27.Дыхательные нейроны спинного мозга и варолиевого моста, их роль в регуляции вентиляции легких.
Дыхательные нейроны, активность которых вызывает инспирацию или экспирацию, называются соответственно инспираторными и экспираторны¬ ми нейронами. Инспираторные и экспираторные нейроны иннервируют дыхательные мышцы. В дорсальной и вентральной дыхательной группах.
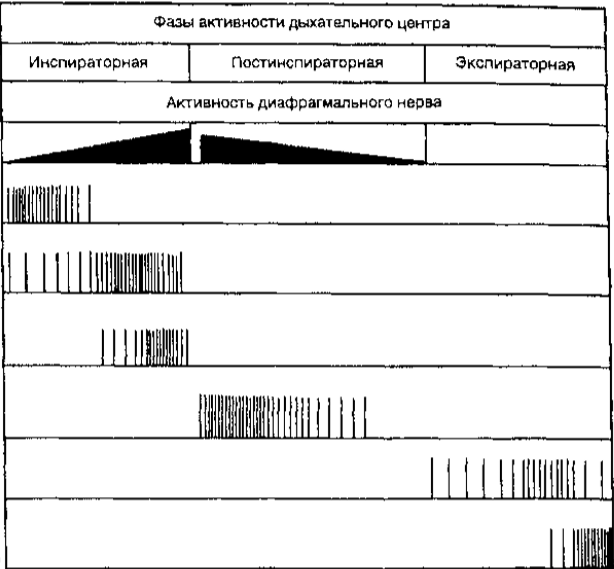
Рис. 7.13. Биоэлектрическая активность основных типов дыхательных нейронов в течение трех нейронных фаз дыхательного цикла. Инспираторные; 1 — ранние; 2 — полные; 3 — поздние; 4 — постинспираторные; 5 — экс¬ пираторные; б — преинспираторные нейроны.
продолговатого мозга обнаружены следующие основные типы дыхатель¬ ных нейронов: 1) ранние инспираторные, которые разряжаются с макси¬ мальной частотой в начале фазы вдоха; 2) поздние инспираторные, макси¬ мальная частота разрядов которых приходится на конец инспирации; 3) полные инспираторные с постоянной или постепенно нарастающей ак¬ тивностью в течение фазы вдоха; 4) постинспираторные, которые имеют максимальный разряд в начале фазы выдоха; 5) экспираторные с постоян¬ ной или постепенно нарастающей активностью, которую они проявляют во вторую часть фазы выдоха; 6) преинспираторные, которые имеют мак¬ симальный пик активности непосредственно перед .началом вдоха. Тип нейронов определяется по проявлению его активности относительно фазы вдоха и выдоха. На рис. 7.13 схематично изображены паттерны (образцы) электриче¬ ской активности дыхательных нейронов. Дорсальная дыхательная группа (ДДГ) представляет собой симметрич¬ ные области продолговатого мозга, расположенные вентролатеральнее ядра одиночного пучка (рис. 7.14). Дыхательные нейроны этой группы от¬ носятся только к инспираторному типу нейронов и представлены поздни¬ ми и полными инспираторными нейронами. Нейроны ДДГ получают афферентные сигналы от легочных рецепторов растяжения по волокнам блуждающих нервов, нейроны которого имеют обширные синаптические связи с другими отделами дыхательного центраи с различными отделами ЦНС. Только часть инспираторных нейронов ДДГ связана аксонами с дыхательными мотонейронами спинного мозга. Вентральная дыхательная группа (ВДГ) расположена латеральнее обо юднОго ядра продолговатого мозга, иди ядра блуждающего нерва. ВДГ по¬ дразделяется на ростральную и каудальную части относительно уровня за¬ движки (obex) продолговатого мозга (см. рис. 7.14).