Материал: fiza_5_semestr_2_reyting_1
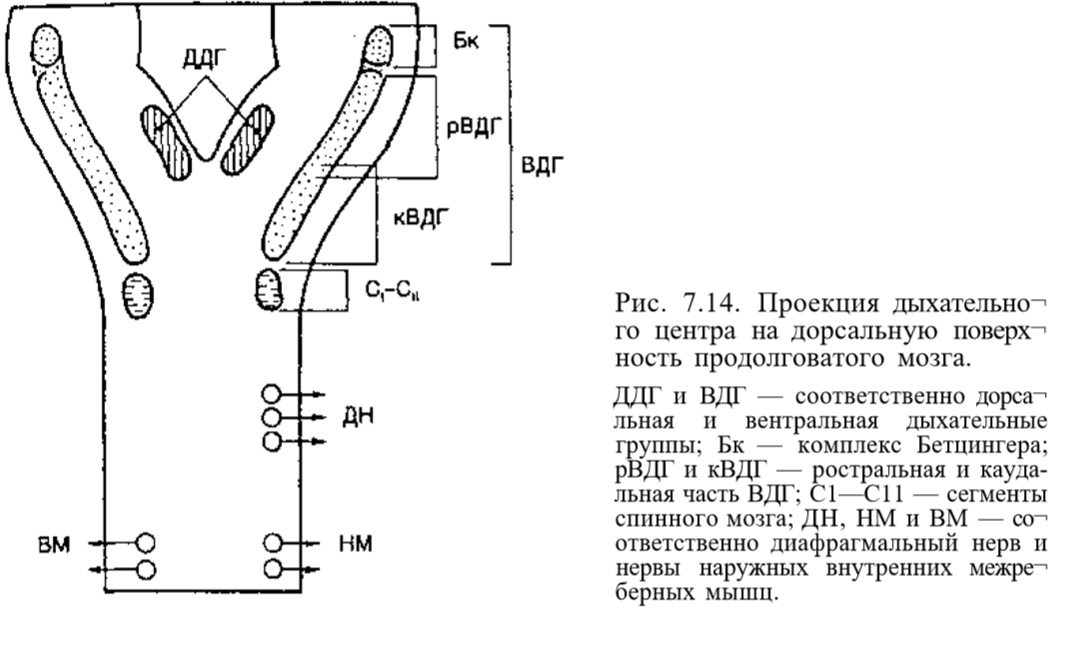
Ростральная часть ВДГ состоит из и:нспираторных нейронов разных ти¬ пов: ранних, полных, поздних инспираторных и постинспираторных. Ран¬ ние инспираторные и постинспираторные нейроны ВДГ называются проприобульбарными нейронами, так как они не направляют свои аксоны за пределы дыхательного центра продолговатого мозга и контактируют толь¬ ко с другими типами дыхательных нейронов. Часть полных и поздних инс¬ пираторных нейронов направляет свои аксоны к дыхательным мотонейро¬ нам спинного мозга. Каудальная часть ВПГ состоит только из экспираторных нейронов, Все экспираторные нейроны направляют аксоны в спинной мозг. При этом 40%~ экспираторных нейронов нннервируют внутренние межреберные мышцы, а 60 % — мышцы брюшной стенки. Ростральнее ВДГ локализованы компактной группой экспираторные нейроны (комплекс Бетцингера), аксоны которых связаны только с други¬ ми типами нейронов дыхательного центра. Предполагают, что именно эти нейроны синхронизируют деятельность правой и левой половин дыхатель¬ ного центра. Нейроны дыхательного центра в зависимости от проекции их аксонов подразделяют на три группы: • проприобульбарные нейроны, связанные с другими нейронами дыхате¬ льного центра и участвующие только в генерации дыхательного ритма; • нейроны, которые синаптически связаны с дыхательными мотонейрона¬ ми спинного мозга и управляют мышцами вдоха и выдоха; • нейроны, иннервирующие мышцы верхних дыхательных путей и регули¬ рующие поток воздуха в дыхательных путях. 368
Другие области локализации дыхательных нейронов. В мосту находятся два ядра_дыхательных нейронов: медиальное парабрахиальное ядро и ядро Келликера-Фюзе Иногда эти ядра называют пневмотаксическим центром. р В первом ядре находятся преимущественно инспираторные, экспиратор¬ ные, а также фазовопереходные нейроны, а во втором — инспираторные нейроны. Предполагают,что дыхательные нейроны моста регулируют сме¬ ну фаз дыхания и скорость дыхательных движений. В сочетании с двусто¬ ронней перерезкой блуждающих нервов разрушение указанных ядер вызы¬ вает остановку дыхания на вдохе. Диафрагмальные мотонейроны своими аксонами образуют диафрагмальный нерв. Нейроны расположены узким столбом в медиальной части вентральных рогов от С111.доС1V. Диафрагмальный нерв состоит из 700—800 миелиновых и более 1500 безмиелиновых волокон. Подавляющее количе¬ ство волокон является аксонами а-мотонейронов, а меньшая часть пред¬ ставлена афферентными волокнами мышечных и сухожильных веретен, локализованных в диафрагме, а также рецепторов плевры, брюшины и свободных нервных окончаний самой диафрагмы. Мотонейроны сегментов спинного мозга, иннервирующие дыхательные мышцы. На уровне C1—С11 вблизи латерального края промежуточной зоны серого вещества находятся инспираторные нейроны, которые участвуют в регуляции активности межреберных и диафрагмальных мотонейронов (см. рис. 7.14). Мотонейроны, иннервирующие межреберные мышцы, локализованы в сером веществе передних рогов на уровне от ThIVдо ThxМотонейроны, иннервирующие мышцы брюшной стенки, локали¬ зованы в пределах вентральных рогов спинного мозга на уровне Thiv— LIII
28. Генерация дыхательного ритма. Дыхательный цикл. Классификация инспираторных и экспираторных нейронов дыхательного центра продолговатого мозга.
В соответствии с метаболическими потребностями дыхательная система обеспечивает газообмен О2 и СО2 между окружающей средой и организмом. Эту жизненно важную функцию регулирует сеть многочисленных взаимосвязанных нейронов ЦНС, расположенных в нескольких отделах мозга и объединяемых в комплексное понятие "дыхательный центр". При воздействии на его структуры нервных и гуморальных стимулов происходит приспособление функции дыхания к меняющимся условиям внешней среды. Структуры, необходимые для возникновения дыхательного ритма, впервые были обнаружены в продолговатом мозге. Перерезка продолговатого мозга в области дна IV желудочка приводит к прекращению дыхания. Поэтому под главным дыхательным центром понимают совокупность нейронов специфических дыхательных ядер продолговатого мозга. Дыхательный центр управляет двумя основными функциями: двигательной, которая проявляется в виде сокращения дыхательных мышц, и гомеостатической, связанной с поддержанием постоянства внутренней среды организма при сдвигах в ней содержания О2 и СО2. Двигательная, или моторная, функция дыхательного центра заключается в генерации дыхательного ритма и его паттерна. Благодаря этой функции осуществляется интеграция дыхания с другими функциями. Под паттерном дыхания следует иметь в виду длительность вдоха и выдоха, величину дыхательного объема, минутного объема дыхания. Гомеостатическая функция дыхательного центра поддерживает стабильные величины дыхательных газов в крови и внеклеточной жидкости мозга, адаптирует дыхательную функцию к условиям измененной газовой среды и другим факторам среды обитания.
Для того чтобы понять нейронные процессы, лежащие в основе дыхания, необходимо вспомнить о том, что дыхание - это ритмическое сокращение и расслабление дыхательных мышц. При спокойном дыхании это сокращение мышечной части диафрагмы и прекращение этого сокращения. Явления, происходящие в аппарате внешнего дыхания между началом следующих друг за другом вдохов (инспираций), называются дыхательным циклом. Длительность дыхательного цикла у человека от 3 до 5 секунд. Важно учесть, что дыхательный цикл состоит не из двух, а из трех фаз.
Первая фаза дыхательного цикла - инспирация. В эту фазу возникает возбуждение диафрагмальных мотонейронов. Вслед за инспираторной активностью появляется ток воздуха в легкие. Далее наблюдается повышение активности инспирации, в это время воздух с постоянной скоростью поступает в легкие. Возбуждение постепенно усиливается в течение 1 - 2,5 секунд (при спокойном дыхании) за счет подключения дополнительных мотонейронов. В диафрагмальном нерве содержится около 1000 аксонов мотонейронов, которые возбуждаются не одновременно. Затем возбуждение диафрагмальных мотонейронов резко ослабляется, прекращается инспираторная активность. Это прекращение инспираторной активности, которое является началом экспирации, приводит к расслаблению инспираторных мышц.
Экспирация состоит из двух фаз. Упругие силы, накопившиеся в легких во время инспирации (растяжение эластических компонентов легочной ткани), обеспечивают ток воздуха из легких. Следует обратить внимание на то, что в конце инспирации силы растяжения легких настолько велики, что им требуется противодействие (в противном случае выдох будет слишком быстрым). Инспираторные мышцы на некоторое время остаются сокращенными. Эта фаза называется постинспирация. Постинспираторная активность противодействует упругим силам и делает выдох более медленным и плавным. Во время второй фазы экспирации импульсная активность диафрагмальных мотонейронов отсутствует. При спокойном дыхании не наблюдается и активности мотонейронов экспираторных мышц. При углублении дыхания появляется активность экспираторных нейронов и мышц, и выдох становится активным.
Основными параметрами дыхательного цикла, которые можно измерить, являются: дыхательный объем, общая длительность цикла, длительность инспирации, длительность экспирации. Совокупность параметров, характеризующих объемно - временные отношения дыхательного цикла принято называть паттерном дыхания.
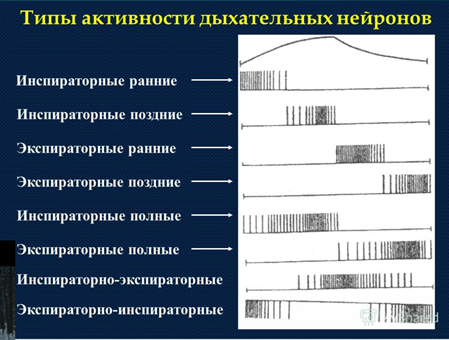
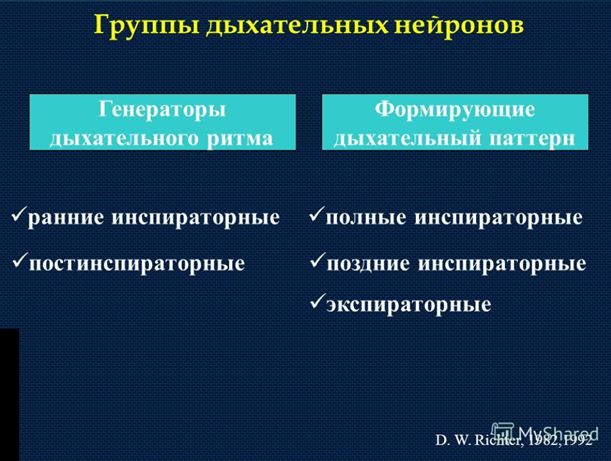
Классификация:
29. Рефлексы регуляции дыхания с рецепторов слизистой полости носа, гортани, трахеи, бронхиол и j-рецепторов.
Рефлекторная регуляция дыхания осуществляется благодаря тому, что нейроны дыхательного центра имеют связи с многочисленными механорецепторами дыхательных путей и альвеол легких и рецепторов сосудистых рефлексогенных зон. В легких человека находятся следующие типы механорецепторов: 1) ирритантные, или быстроадаптирующиеся, рецепторы слизистой оболочки дыхательных путей; 2) рецепторы растяжения гладких мышц дыхательных путей; 3) J-рецепторы. Рефлексы со слизистой оболочки полости носа. Раздражение ирритантных рецепторов слизистой оболочки полости носа, например табачным дымом, инертными частицами пыли, газообразными веществами, водой вызывает сужение бронхов, голосовой щели, брадикардию, снижение сердечного выброса, сужение просвета сосудов кожи и мышц. Защитный рефлекс проявляется у новорожденных при кратковременном погружении в воду. У них возникает остановка дыхания, препятствующая проникновению воды в верхние дыхательные пути. Рефлексы с глотки. Механическое раздражение рецепторов слизистой оболочки задней части полости носа вызывает сильнейшее сокращение диафрагмы, наружных межреберных мышц, а следовательно, вдох, который открывает дыхательный путь через носовые ходы (аспирационный рефлекс). Этот рефлекс выражен у новорожденных. Рефлексы с гортани и трахеи. Многочисленные нервные окончания расположены между эпителиальными клетками слизистой оболочки гортани и главных бронхов. Эти рецепторы раздражаются вдыхаемыми частицами, раздражающими газами, бронхиальным секретом, инородными телами. Все это вызывает кашлевой рефлекс, проявляющийся в резком выдохе на фоне сужения гортани и сокращение гладких мышц бронхов, которое сохраняется долгое время после рефлекса. Кашлевой рефлекс является основным легочным рефлексом блуждающего нерва. Рефлексы с рецепторов бронхиол. Многочисленные миелинизи- рованные рецепторы находятся в эпителии внутрилегочных бронхов и бронхиол. Раздражение этих рецепторов вызывает гиперпноэ, бронхоконстрикцию, сокращение гортани, гиперсекрецию слизи, но никогда не сопровождается кашлем. Рецепторы наиболее чувствительны к трем типам раздражителей: 1) табачному дыму, многочисленным инертным и раздражающим химическим веществам; 2) повреждению и механическому растяжению дыхательных путей при глубоком дыхании, а также пневмотораксе, ателектазах, действии бронхоконстрикторов; 3) легочной эмболии, легочной капиллярной гипертензии и к легочным анафилактическим феноменам. Рефлексы с J-рецепторов. В альвеолярных перегородках в контакте с капиллярами находятся особые J-рецепторы. Эти рецепторы особенно чувствительны к интерстициальному отеку, легочной венозной гипертензии, микроэмболии, раздражающим газам и ингаляционным наркотическим веществам, фенилдигуаниду (при внутривенном введении этого вещества). Стимуляция J-рецепторов вызывает вначале апноэ, затем поверхностное тахипноэ, гипотензию и брадикардию.
30.Рефлексы регуляции дыхания с рецепторов растяжения легких (Геринга-Брейера) и проприорецепторов грудной клетки.
Рефлекс Геринга — Брейера. Раздувание легких у наркотизированного животного рефлекторно тормозит вдох и вызывает выдох. Перерезка блуждающих нервов устраняет рефлекс. Нервные окончания, расположенные в бронхиальных мышцах, играют роль рецепторов растяжения легких. Их относят к медленно адаптирующимся рецепторам растяжения легких, которые иннервируются ми- елинизированными волокнами блуждающего нерва. Рефлекс Геринга — Брейера контролирует глубину и частоту дыхания. У человека он имеет физиологическое значение при дыхательных объемах свыше 1 л (например, при физической нагрузке). У бодрствующего взрослого человека кратковременная двусторонняя блокада блуждающих нервов с помощью местной анестезии не влияет ни на глубину, ни на частоту дыхания. У новорожденных рефлекс Геринга — Брейера четко проявляется только в первые 3—4 дня после рождения. Проприоцептивный контроль дыхания. Рецепторы суставов грудной клетки посылают импульсы в кору больших полушарий и являются единственным источником информации о движениях грудной клетки и дыхательных объемах. Межреберные мышцы, в меньшей степени диафрагма, содержат большое количество мышечных веретен. Активность этих рецепторов проявляется при пассивном растяжении мышц, изометрическом сокращении и изолированном сокращении интрафузальных мышечных волокон. Рецепторы посылают сигналы в соответствующие сегменты спинного мозга. Недостаточное укорочение инспираторных или экспираторных мышц усиливает импульсацию от мышечных веретен, которые через / -мотонейроны повышают активность «-мотонейронов и дозируют таким образом мышечное усилие
31. Гуморальная регуляция вентиляции легких. Влияние изменений рО2, рСо2, рН крови на вентиляцию легких.
Главным физиологическим стимулом дыхательных центров является двуокись углерода. Регуляция дыхания обусловливает поддержание нормального содержания СО2 в альвеолярном воздухе и артериальной крови. Возрастание содержания СО2 в альвеолярном воздухе на 0,17% вызывает удвоение МОД, а вот снижение содержания О2 на 39-40% не вызывает существенных изменений МОД. При повышении в замкнутых герметических кабинах концентрации СО2 до 5-8% у обследуемых наблюдалось увеличение легочной вентиляции в 7-8 раз. При этом концентрация СО2 в альвеолярном воздухе существенно не возрастала, так как основным признаком регуляции дыхания является необходимость регуляции объема легочной вентиляции, поддерживающей постоянство состава альвеолярного воздуха. Деятельность дыхательного центра зависит от состава крови, поступающей в мозг по общим сонным артериям. В 1890 г. это было показано Фредериком в опытах с перекрестным кровообращением. У двух собак, находившихся под наркозом, перерезали и соединяли перекрестно сонные артерии и яремные вены. При этом голова первой собаки снабжалась кровью второй собаки и наоборот. Если у одной из собак, например у первой, перекрывали трахею и таким путем вызывали асфиксию, то гиперпноэ развивалось у второй собаки. У первой же собаки, несмотря на увеличение в артериальной крови напряжения СО2 и снижение напряжения О2, развивалось апноэ, так как в ее сонную артерию поступала кровь второй собаки, у которой в результате гипервентиляции снижалось напряжение СО2 в артериальной крови. Двуокись углерода, ионы водорода и умеренная гипоксия вызывают усиление дыхания. Эти факторы усиливают деятельность дыхательного центра, оказывая влияние на периферические (артериальные) и центральные (модулярные) хеморецепторы, регулирующие дыхание. Артериальные хеморецепторы находятся в каротидных синусах и дуге аорты. Они расположены в специальных тельцах, обильно снабжаемых артериальной кровью. Аортальные хеморецепторы на дыхание влияют слабо, и имеют большее значение для регуляции кровообращения. Артериальные хеморецепторы являются уникальными рецепторными образованиями, на которые гипоксия оказывает стимулирующее влияние. Афферентные влияния каротидных телец усиливаются также при повышении в артериальной крови напряжения двуокиси углерода и концентрации водородных ионов. Стимулирующее действие гипоксии и гиперкапнии на хеморецепторы взаимно усиливается, тогда, как в условиях гипероксии чувствительность хеморецепторов к двуокиси углерода резко снижается. Артериальные хеморецепторы информируют дыхательный центр о напряжении О2 и СО2 в крови, направляющейся к мозгу. Центральные хеморецепторы расположены в продолговатом мозге латеральнее пирамид. Перфузия этой области мозга раствором со сниженным рН резко усиливает дыхание, а при высоком уровне рН дыхание ослабевает, вплоть до апноэ. То же происходит при охлаждении или обработке этой поверхности продолговатого мозга анестетиками. Центральные хеморецепторы, оказывая сильное влияние на деятельность дыхательного центра, существенно изменяют вентиляцию легких. Установлено, что снижение рН спинномозговой жидкости всего на 0,01 сопровождается увеличением легочной вентиляции на 4 л/мин. Центральные хеморецепторы реагируют на изменение напряжения СО2 в артериальной крови позже, чем периферические хеморецепторы, так как для диффузии СО2 из крови в спинномозговую жидкость и далее в ткань мозга необходимо больше времени. Гиперкапния и ацидоз стимулируют, а гипокапния и алкалоз – тормозят центральные хеморецепторы. Совокупность дыхательных нейронов следовало бы рассматривать как созвездие структур, осуществляющих центральный механизм дыхания. Таким образом, вместо термина «дыхательный центр» правильнее говорить о системе центральной регуляции дыхания, которая включает в себя структуры коры головного мозга, определенные зоны и ядра промежуточного, среднего, продолговатого мозга, Варолиева моста, нейроны шейного и грудного отделов спинного мозга, центральные и периферические хеморецепторы, а также механорецепторы органов дыхания. Своеобразие функции внешнего дыхания состоит в том, что она одновременно и автоматическая, и произвольно управляемая.
Хеморефлексы дыхания. Рог и РСО2 ® зртериэльнои крови чс— ловека и животных поддерживается на достаточно стабильном уровне, несмотря на значительные изменения потребления О2 и выделение СОг- Гипоксия и понижение pH крови (ацидоз) вызывают усиление вентиляции (гипервентиляция), а гипероксия и повышение pH крови (алкалоз) — понижение вентиляции (гиповентиляция) или апноэ. Контроль за нормальным содержанием во внутренней среде организма О2, СОг и pH осуществляется периферическими и центральными хеморецепторами. Адекватным раздражителем для периферических хеморецепторов является уменьшение Р02 артериальной крови, в меньшей степени увеличение Рсщ и pH, а для центральных хеморецепторов — увеличение концентрации Н4 во внеклеточной жидкости мозга.