Материал: fiza_5_semestr_2_reyting_1
32. Артериальные (периферические) и центральные хеморецепторы, их роль в регуляции вентиляции легких.
Артериальные
(периферические) хеморецепто- р ы.
Периферические хеморецепторы находятся
в каротидных и аортальных тельцах.
Сигналы от артериальных хеморецепторов
по синокаротидным и аортальным нервам
первоначально поступают к нейронам
ядра одиночного пучка продолговатого
мозга, а затем переключаются на нейроны
дыхательного центра. Ответ периферических
хеморецепторов на понижение Рао2 является
очень быстрым, но нелинейным. При Рао2
в пределах 80—60 мм рт. ст. (10,6—8,0 кПа)
наблюдается слабое усиление вентиляции,
а при Рао2 ниже 50 мм рт. ст. (6,7 кПа) возникает
выраженная гипервентиляция.
Расог
и pH крови только потенцируют эффект
гипоксии на артериальные хеморецепторы
и не являются адекватными раздражителями
для этого типа хеморецепторов
дыхания.
Реакция
артериальных хеморецепторов и дыхания
на гипоксию. Недостаток 02 в артериальной
крови является основным раздражителем
периферических хеморецепторов. Импульсная
активность в афферентных волокнах
синокаротидного нерва прекращается
при Расgt;2 выше 400 мм рт. ст. (53,2 кПа). При
нормоксии частота разрядов синокаротидного
нерва составляет 10% от их максимальной
реакции, которая наблюдается при Рао2
около 50 мм рт. ст. и ниже. Гипоксическая
реакция дыхания практически отсутствует
у коренных жителей высокогорья и исчезает
примерно через 5 лет у жителей равнин
после начала их апаптации к высокогорью
(3500 м и выше).
Центральные
хеморецепторы. Окончательно не установлено
местоположение центральных хеморецепторов.
Исследователи считают, что такие
хеморецепторы находятся в ростральных
отделах продолговатого мозга вблизи
его вентральной поверхности, а также в
различных зонах дорсального дыхательного
ядра.
Наличие
центральных хеморецепторов доказывается
достаточно просто: после перерезки
синокаротидных и аортальных нервов у
подопытных животных исчезает
чувствительность дыхательного центра
к гипоксии, но полностью сохраняется
реакция дыхания на гиперкапнию и ацидоз.
Перерезка ствола мозга непосредственно
выше продолговатого мозга не влияет на
характер этой реакции.
Адекватным
раздражителем для центральных
хеморецепторов является изменение
концентрации Н* во внеклеточной жидкости
мозга. Функцию регулятора пороговых
сдвигов pH в области центральных
хеморецепторов выполняют структуры
гематоэнцефалического барьера, который
отделяет кровь от внеклеточной жидкости
мозга. Через этот барьер осуществляется
транспорт 02, С02 и Н+ между кровью и
внеклеточной жидкостью мозга. Транспорт
С02 и Н+ из внутренней среды мозга в плазму
крови через структуры гематоэнцефалического
барьера регулируется с участием фермента
карбоангидразы.
Реакция
дыхания на С02. Гиперкапния и ацидоз
стимулируют, а гипокапния и алкалоз
тормозят центральные хеморецепторы.
Для
определения чувствительности центральных
хеморецепторов к изменению pH внеклеточной
жидкости мозга используют метод
возвратного дыхания. Испытуемый дышит
из замкнутой емкости, заполненной
предварительно чистым 02. При дыхании в
замкнутой
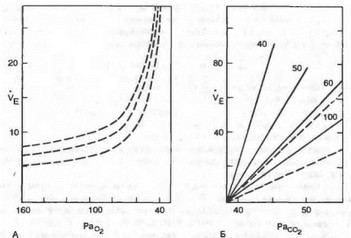 Рис.
8.12. Изменение вентиляции легких (Ve, л*мии
1) в зависимости от парциального давления
Ог (А) и СО2 (Б) в альвеолярном воздухе
при различном содержании Ог в альвеолярном
воздухе (40, 50, 60 и 100 мм рт. ст.).
В
системе
выдыхаемый СО2 вызывает линейное
увеличение концентрации СО2 и одновременно
повышает концентрацию ЬГ в крови, а
также во внеклеточной жидкости мозга.
Тест проводят в течение
5 мин под контролем содержания СО2 в выдыхаемом воздухе.
На рис. 8.12 показано изменение объема вентиляции при различном уровне напряжения СОг в артериальной крови. При Расог ниже 40 мм рт. ст. (5,3 кПа) может возникнуть апноэ в результате гипокапнии. В этот период дыхательный центр мало чувствителен к гипоксической стимуляции периферических хеморецепторов.
33. Координация (взаимодействие) функции внешнего дыхания с кровообращением и другими функциями организма.
В филогенетическом развитии организма человека и животных дыхательный центр приобретает сложные синаптические взаимоотношения с различными отделами ЦНС.
В отличие от других физиологических функций организма дыхание находится под контролем автономной (вегетативной) и соматической нервной системы, поэтому у человека и животных дыхание нередко называют вегето-соматической функцией. Существует тесное взаимодействие рефляции дыхания ^моральной и рефлекторной природы и процессами сознательной деятельности мозга. Однако во время сна или в состояниях, связанных с отсутствием сознания у человека, сохраняется внешнее дыхание и обеспечивается нормальное поддержание газового гомеостаза внутренней среды. С другой стороны, человек имеет возможность по собственному желанию
изменять глубину и частоту дыхания или задерживать его, например во время пребывания под водой. Произвольное управление дыханием основано на корковом представительстве проприоцептивного анализатора дыхательных мышц и на наличии коркового контроля дыхательных мышц.
Электрическое раздражение коры больших полушарий у человека и животных показало, что возбуждение одних корковых зон вызывает увеличение, а раздражение других — уменьшение легочной вентиляции. Наиболее сильное угнетение дыхания возникает при электрической стимуляции лимбической системы переднего мозга. При участии центров терморегуляции гипоталамуса возникает ги- перпноэ при гипертермических состояниях.
Однако многие нейрофизиологические механизмы взаимодействия нейронов переднего мозга с дыхательным центром остаются пока мало изученными.
Дыхание опосредованно через газы крови влияет на кровообращение во многих органах. Важнейшим гуморальным, или метаболическим, регулятором локального мозгового кровотока являются Н+ артериальной крови и межклеточной жидкости. В качестве метаболического регулятора тонуса сосудов мозга рассматривают также СО2. В последнее время эта точка зрения подвергается сомнению, поскольку СО2 как молекулярное соединение практически отсутствует во внутренней среде организма. Молекулярный СОг (О —С “О) встречается в организме в альвеолярном воздухе, а в тканях только при переносе СО2 через аэрогематический и гистогематический барьеры. В крови и межклеточной жидкости СОг находится в связанном состоянии, в виде гидрокарбонатов, поэтому правильнее говорить о метаболической регуляции Н+ тонуса гладких мышц артериальных сосудов и их просвета. В головном мозге повышение концентрации Н+ расширяет сосуды, а понижение концентрации Н+ в артериальной крови или межклеточной жидкости, напротив, повышает тонус гладких мышц сосудистой стенки. Возникающие при этом изменения мозгового кровотока способствуют изменению градиента pH по обе стороны гематоэнцефалического барьера и создают благоприятные условия либо для вымывания из сосудов мозга крови с низким значением pH, либо для понижения pH крови в результате замедления кровотока.
Функциональное взаимодействие систем регуляции дыхания и кровообращения является предметом интенсивных физиологических исследований. Обе системы имеют общие рефлексогенные зоны в сосудах: аортальную и синокаротидные. Периферические хеморе- цепторы дыхания аортальных и каротидных телец, чувствительные к гипоксии в артериальной крови, и барорецепторы стенки аорты и каротидных синусов, чувствительные к изменению системного артериального давления, расположены в рефлексогенных зонах в непосредственной близости друг от друга. Все названные рецепторы посылают афферентные сигналы к специализированным нейронам основного чувствительного ядра продолговатого мозга — ядра одиночного пучка. В непосредственной близости от этого ядра находится дорсальное дыхательное ядро дыхательного центра. Здесь же в продолговатом мозге находится сосудодвигательный центр.
Координацию деятельности дыхательного и сосудодвигательного центров продолговатого мозга осуществляют нейроны ряда интегративных ядер бульбарной ретикулярной формации.
34.Изменения вентиляции легких при физической нагрузке.
При физической нагрузке потребление 02 и продукция С02 возрастают в среднем в 15—20 раз. Одновременно усиливается вентиляция и ткани организма получают необходимое количество 02, а из организма выводится С02.
Каждый человек имеет индивидуальные показатели внешнего дыхания. В норме частота дыхания варьирует от 16 до 25 в минуту, а дыхательный объем — от 2,5 до 0,5 л. При мышечной нагрузке разной мощности легочная вентиляция, как правило, пропорциональна интенсивности выполняемой работы и потреблению 02 тканями организма. У нетренированного человека при максимальной мышечной работе минутный объем дыхания не превышает 80 л «мин \ а у тренированного может быть 120—150 л»мин -1 и выше. Кратковременное произвольное увеличение вентиляции может составлять 150—200 л*мин -1.
В момент начала мышечной работы вентиляция быстро увеличивается, однако в начальный период работы не происходит каких- либо существенных изменений pH и газового состава артериальной и смешанной венозной крови. Следовательно, в возникновении ги- перпноэ в начале физической работы не участвуют периферические и центральные хеморецепторы как важнейшие чувствительные структуры дыхательного центра, чувствительные к гипоксии и к понижению pH внеклеточной жидкости мозга.
Уровень вентиляции в первые секунды мышечной активности регулируется сигналами, которые поступают к дыхательному центру из гипоталамуса, мозжечка, лимбической системы и двигательной зоны коры большого мозга. Одновременно активность нейронов дыхательного центра усиливается раздражением проприоцепторов работающих мышц. Довольно быстро первоначальный резкий прирост вентиляции легких сменяется ее плавным подъемом до достаточно устойчивого состояния, или так называемого плато. В период «плато», или стабилизации вентиляции легких, происходит снижение Рао2 и повышение Расо2 крови, усиливается транспорт газов через аэрогематический барьер, начинают возбуждаться периферические и центральные хеморецепторы. В этот период к нейрогенным стимулам дыхательного центра присоединяются гуморальные воздействия, вызывающие дополнительный прирост вентиляции в процессе выполняемой работы. При тяжелой физической работе на уровень вентиляции будут влиять также повышение температуры тела, концентрация катехоламинов, артериальная гипоксия и индивидуально лимитирующие факторы биомеханики дыхания.
Состояние «плато» наступает в среднем через 30 с после начала работы или изменения интенсивности уже выполняемой работы. В соответствии с энергетической оптимизацией дыхательного цикла повышение вентиляции при физической нагрузке происходит за счет различного соотношения частоты и глубины дыхания. При очень высокой легочной вентиляции поглощение Ог дыхательными мышцами сильно возрастает. Это обстоятельство ограничивает возможность выполнять предельную физическую нагрузку. Окончание работы вызывает быстрое снижение вентиляции легких до некоторой величины, после которой происходит медленное восстановление дыхания до нормы.
35. Изменения вентиляции легких при сдвигах парциального давления газов.
Газообмен О2 и СО2 через альвеолярно-капиллярную мембрану происходит с помощью диффузии, которая осуществляется в два этапа. На первом этапе диффузионный перенос газов происходит через аэрогематический барьер, на втором - происходит связывание газов в крови легочных капилляров, объем которой оставляет 80-150 мл при толщине слоя крови в капиллярах всего 5-8 мкм. Плазма крови практически не препятствует диффузии газов, в отличие от мембраны эритроцитов.
Структура легких создает благоприятные условия для газообмена: дыхательная зона каждого легкого содержит около 300 млн. альвеол и примерно такое же число капилляров, имеет площадь 40-140 м2, при толщине аэрогематического барьера всего 0,3-1,2 мкм.
Особенности диффузии газов количественно характеризуются через диффузионную способность легких. Для О2диффузионная способность легких - это объем газа, переносимого из альвеол в кровь в 1 минуту при градиенте альвеолярно-капиллярного давления газа, равном 1 мм рт.ст.
Движение газов происходит в результате разницы парциальных давлений. Парциальное давление - это та часть давления, которую составляет данный газ из общей смеси газов. Пониженное давление О2 в ткани способствует движению кислорода к ней. Для СО2 градиент давления направлен в обратную сторону, и СО2 с выдыхаемым воздухом уходит в окружающую среду.
Градиент парциального давления кислорода и углекислого газа – это сила, с которой молекулы этих газов стремятся проникнуть через альвеолярную мембрану в кровь.
Парциальное напряжение газа в крови или тканях - это сила, с которой молекулы растворимого газа стремятся выйти в газовую среду.
На уровне моря атмосферное давление составляет в среднем 760 мм рт.ст., а процентное содержание кислорода - около 21%. В этом случае рО2 в атмосфере составляет: 760 х 21/100=159 мм рт.ст. При вычислении парциального давления газов в альвеолярном воздухе следует учитывать, что в этом воздухе присутствуют пары воды (47 мм рт.ст.). Поэтому это число вычитают из значения атмосферного давления, и на долю парциального давления газов приходится (760^47) =713 мм рт.ст. При содержании кислорода в альвеолярном воздухе, равном 14 %, его парциальное давление будет 100 мм рт. ст. При содержании двуокиси углерода, равном 5,5%, парциальное давление СО2 составит примерно 40 мм рт.ст.
В артериальной крови парциальное напряжение кислорода достигает почти 100 мм рт.ст., в венозной крови - около 40 мм рт.ст., а в тканевой жидкости, в клетках - 10-15 мм рт.ст. Напряжение углекислого газа в артериальной крови составляет около 40 мм рт.ст., в венозной - 46 мм рт.ст., а в тканях - до 60 мм рт.ст.
36.Изменения вентиляции легких при высотной гипоксии.
С увеличением высоты над уровнем моря падает барометрическое давление и парциальное давление Ог, однако насыщение альвеолярного воздуха водяными парами при температуре тела не изменяется. На высоте 20 000 м содержание О2 во вдыхаемом воздухе падает до нуля. Если жители равнин поднимаются в горы, гипоксия увеличивает у них вентиляцию легких, стимулируя артериальные хеморецепторы. Изменения дыхания при высотной гипоксии у разных людей различны. Возникающие во всех случаях реакции внешнего дыхания определяются рядом факторов: 1) скорость, с которой развивается гипоксия; 2) степень потребления О2 (покой или физическая нагрузка); 3) продолжительность гипоксического воздействия.
Первоначальная гипоксическая стимуляция дыхания, возникающая при подъеме на высоту, приводит к вымыванию из крови СО2 и развитию дыхательного алкалоза. Это в свою очередь вызывает увеличение pH внеклеточной жидкости мозга. Центральные хеморецепторы реагируют на подобный сдвиг pH в цереброспинальной жидкости мозга резким снижением своей активности, что затормаживает нейроны дыхательного центра настолько, что он становится нечувствительным к стимулам, исходящим от периферических хеморецепторов. Довольно быстро гиперпноэ сменяется непроизвольной гиповентиляцией, несмотря на сохраняющуюся гипоксемию. Подобное снижение функции дыхательного центра увеличивает степень гипоксического состояния организма, что чрезвычайно опасно, прежде всего для нейронов коры большого мозга.
При акклиматизации к условиям высокогорья наступает адаптация физиологических механизмов к гипоксии. К основным факторам долговременной адаптации относятся: повышение содержания С02 и понижение содержания Ог в крови на фоне снижения чувствительности периферических хеморецепторов к гипоксии, а также рост концентрации гемоглобина.
37.Изменения вентиляции легких при повышенном атмосферном давлении.
Во время водолазных и кессонных работ человек находится под давлением выше атмосферного на 1 атм. На каждые 10м погружения. В этих условиях увеличивается количество газов, растворенных в крови, и особенно азота. При быстром подъеме водолаза на поверхность физически растворенные в крови и тканях газы не успевают выделиться из организма и образуют пузырьки – кровь «закипает». Кислород и углекислый газ быстро связываются кровью и тканями. Особую опасность представляют пузырьки азота, которые разносятся кровью и закупоривают мелкие сосуды (газовая эмболия), что сопровождается тяжелыми повреждениями ЦНС, органов зрения, слуха, сильными болями в мышцах и в области суставов, потерей сознания. Такое состояние, возникающее при быстрой декомпрессии, называется кессонной болезнью. Пострадавшего необходимо вновь поместить в среду с высоким давлением, а затем постепенно производить декомпрессию. Вероятность возникновения кессонной болезни может быть значительно снижена при дыхании специальными газовыми смесями, например гелиево-кислородной. Гелий почти нерастворим в крови, он быстрее диффундирует из тканей.
Задачи:
1. Здоровый житель равнинной области приехал в высокогорную местность. Как изменится у него вязкость крови в условиях высокогорья? Назовите нормативы этого показателя и факторы, от которых зависит вязкость крови. Какова физиологическая основа изменения вязкости крови в условиях высокогорья?
Ответ:В ответ на снижение парциального давления кислорода в воздухе почки вырабатывают больше эритропоэтина, возрастает продукция эритроцитов красным костным мозгом, увеличивается гематокритный показатель и, соответственно, вязкость крови (норма – 4,5-5,0). Это компенсаторная реакция системы крови, направленная на увеличение количества кислорода в артериальной крови. Факторы:
-гематокритное число
-питание (при обильном белковом питании-вязкость крови может возрастать)
-наличие гормонов, микроэлементов, витаминов -количество интерлейкинов и эритропоэтинов 2. При операциях на сердце для сохранения движения крови и ее оксигенации используют аппарат искусственного кровообращения (АИК). В этих условиях кровь поступает в сосудистое русло не из сердца, а из АИК, внутренняя поверхность которого не идентична эндокарду и эндотелию. Что в связи с этим может произойти с эритроцитами при применении АИК? Назовите количество эритроцитов у мужчин и женщин в норме. ответ: Внутренние поверхности АИК не идентичные таковым в эндотелии и эндокарде. Поэтому на стенках АИК происходит разрушение части эритроцитов и их гемолиз. Количество эритроцитов у мужчин в норме - 4-5х10^12\л, у женщин - 3,8-4,5х10^12\л
3.С целью профилактического осмотра пациенту был назначен общий клинический анализ крови. Пациент позавтракал перед сдачей крови. Какие показатели крови могут быть изменены у данного пациента? Какова причина этих изменений?
Ответ:Повышение количества лейкоцитов – физиологический (пищевой) лейкоцитоз, связанный с поступлением пищи. Повышение глюкозы – экзогенное поступление сахара в организм. Повышение холестерина,СОЭ - если еда была жирной.
4. Результаты общего клинического анализа крови беременной женщины показали, что скорость оседания эритроцитов (СОЭ) у неё равна 23 мм/час. Назовите величину СОЭ у женщин в норме. При каких состояниях может быть изменена величина СОЭ? Объясните причину повышения СОЭ при физиологической беременности.
Ответ:СОЭ у женщин в норме от 2 до 15 мм/ч. СОЭ зависит от фибриногена, холестерина. Величина СОЭ может быть повышена при воспалительных заболеваниях крови, раке, анемии, инфаркте, а снижена при заболеваниях печени, сгущении крови и голодании. А у беременных увеличено содержание фибриногена, поэтому повышается СОЭ. При беременности образуется большее количество белков, необходимых для нормального созревания плода, а увеличение количества белка в крови обуславливает увеличение СОЭ, так как эритроциты связываются с белком.
5. У пациента Н. для организации переливания крови определяли группу крови с помощью моноклональных антител (цоликлонов анти-А и анти-В). При этом реакции агглютинации эритроцитов не было обнаружено.
Какая группа крови по системе AB0 у пациента Н.?
Исходя из данных полученных в процессе определения группы крови для организации переливания с помощью моноклональных антител (поликлонов, анти-А и анти-В) у пациента Н. по системе АВ0 I группа крови, так как именно у обладателей данной группы в эритроцитах отсутствуют агглютиногены, вызывающие реакцию агглютинации.