Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
Copyright ОАО «ЦКБ «БИБКОМ» & ООО «Aгентство Kнига-Cервис»
уровне, что косвенно свидетельствует о наличии окислительного стресса.
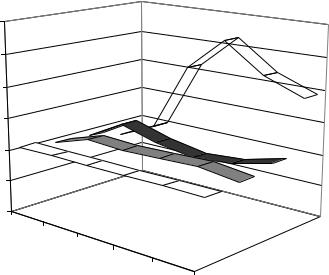
При анализе результатов, полученных при определении содержания МДА в образцах мицелия, хранящихся на средах, с добавлением соединений селена (10-4 в пересчете на элемент), сравнение проводили с показателями, отмеченными в исходных образцах на стадии логарифмического роста. Содержание МДА в хранящемся мицелии штаммов обоих изученных видов, существенно различающихся трофическими особенностями в природных условиях, достоверно ниже контрольных показателей мицелия аналогичного возраста и срока хранения (рис. 18).
Процент от исходных |
показателей |
300 |
|
|
|
|
|
250 |
|
|
|
|
|
200 |
|
|
|
|
|
150 |
|
|
|
|
|
100 |
|
|
|
|
|
50 |
|
|
|
|
|
0 |
|
|
|
|
|
3 мес. |
6 мес |
9 мес. |
12 мес. |
18 мес. |
24 мес |

 Исходное содержание в контрольном образце, принятое за 100%

 0пыт 1

 Опыт 2

 Контроль
Рисунок 18 – Динамика содержания малонового диальдегида (МДА) в образцах мицелия G. lucidum (на примере штамма Gl-3) при продолжительном хранении на различных средах: контроль – КГА; опыт 1 – КГА, обогащенный Na2SeO4; опыт 2 – КГА, обогащенный 9-фенил-симметричным-октагидроселеноксанте- ном (вещества добавлены в концентрации 10-4 г/л среды в пересчете на селен)
Сохранение культур в жизнеспособном состоянии в течение длительного периода хранения, более стабильный, относительно
120
контрольных показателей, антиоксидантный статус мицелия, в совокупности свидетельствуют о значительном нивелировании фактора окислительного стресса.
Известно, что селен, как часть глутатионпероксидазы, оказывает защитное действие при окислительном стрессе, катализируя распад перекиси водорода или разложение гидроперекисей липидов и тем самым, прерывая переокислительную цепную реакцию свободных радикалов (Grossman and Wendel, 1983). Кроме того, вряде источников на соединения селена – селенаты – указывают как на антиметаболиты (Birkett and Rowlands, 1981). Органические же соединения селена в плане воздействия на рост и метаболизм, в частности, грибных культур, изучены сравнительно недостаточно. Возможно, в данном случае имеет место стабилизация обменных процессов, на фоне которой замедление метаболических реакций определяет торможение свободнорадикальных процессов. Это предположение вполне согласуется с полученными данными по стимуляции (в сравнении с контролем) развития мицелия в период адаптации к субстрату, то есть в фазу, сопровождающуюся адаптационным стрессом.
Полученные результаты однозначно свидетельствуют о целесообразности использования соединений селена в практике хранения культур ксилотрофных базидиомицетов.
121
Глава 5 АДАПТАЦИЯ НЕКОТОРЫХ ВИДОВ КСИЛОТРОФНЫХ БАЗИДИОМИЦЕТОВ К ВОЗДЕЙСТВИЮ ПОЛИЕНОВОГО МАКРОЛИДА НИСТАТИНА
Эргостерин является наиболее распространенным стерином у грибов и входит в состав клеточных мембран. Этот компонент мембран является своеобразной биохимической мишенью для повреждающего действия полиеновых макролидов, в том числе нистатина. Эргостерин полностью соответствует структуре мишени для полиенов.
В литературе имеются сведения об изменении состава стеринов в клетках дрожжей и мицелиальных грибов, которые приобрели устойчивость к полиенам как под действием мутагенов, так и в процессе адаптаций. Сообщается о трех типах изменений клеточных стеринов, обеспечивающих такую устойчивость, однако, как указывалось в разделе 1.3, нет единого мнения относительно механизмов полиенрезистентности. Вероятно одновременное существование различных систем адаптации. Кроме того, информация о современных исследованиях, посвященных данному вопросу, встречается крайне редко, и ориентирована на несколько иные стороны проблемы стеринового обмена грибов. В то же время полиеновые макролиды, и в том числе нистатин, обладающие значительной токсичностью, в настоящее время ограничены в применении и теряют актуальность как терапевтические средства, что может служить одной из причин некоторого ослабления интереса к ним и с позиций фундаментальных исследований.
5.1 Особенности толерантных к действию токсичных концентраций нистатина штаммов Ganoderma lucidum
В качестве объектов исследования нами использованы несколько штаммов G. lucidum. Это тканевые изоляты, выделенные из базидиом Gl-1, Gl-3, Gl-6; а также штаммы, полученные нами в лабораторных условиях (споровые изоляты). В ходе реализации интенсивной технологии культивирования нами неоднократно были получены экземпляры типичных плодовых тел G. lucidum.
122
При каждом плодоношении базидиоспоры собирали в асептических условиях, после чего с ними проводили исследовательские работы: изучение микроморфологии, проращивание методом высева спорового порошка в высокой степени разведения физиологическим раствором на питательные среды. В результате были получены монокариотические и дикариотические штаммы G. lucidum. Для исследований, связанных с выполнением данной работы, из них было отобрано, кроме указанных выше тканевых изолятов, три дикариотических штамма: GD-I-1, GD-I-2, GD-I-4. Предварительно были проведены исследования по установлению концентрации нистатина, лимитирующей развитие изученных штаммов G. lucidum. Установлено, что такой концентрацией является 120 ЕД/мл. Условно указанные выше штаммы названы полиенчувствительными.
Кроме названных мицелиальных культур, выделенных тканевым и споровым способом, в исследования были взяты два дикариотических штамма спорового происхождения, выращенные на средах, содержащих полиеновый макролид нистатин (в дальнейшем, полиенрезистентные штаммы). Для получения полиенрезистентных штаммов, на питательные среды (сусло-агар), содержащие указанную дозу выше нистатина, высевали споровый порошок, затем наблюдали прорастание спор и рост мицелия. Прорастание было отмечено только в 10% инокулированных чашек, тогда как в контроле (среда без нистатина), это значение составило 100%. Мицелий, развивающийся на среде с нистатином, характеризовался высокой плотностью, ярко-белой окраской и крайне медленными, хотя и отличными друг от друга, темпами роста. Таким образом, получены пять полиенрезистентных штаммов G. lucidum: GD-II–ун1, GD-II–ун2, GD-II–ун3, GD-II–
ун4, GD-II–ун5.
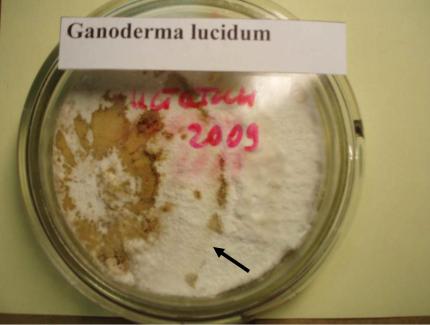
В одном случае, при развитии штамма GD-II–ун2, после относительно медленного освоения мицелием половины питательной среды, было отмечено формирование своеобразного валика по периметру колонии, затем темпы роста мицелия заметно возросли, и оставшийся субстрат был освоен вдвое быстрее, чем первая его часть. Валик и более старая часть колонии приобрели кожистую структуру и характерный темный пигмент (рис. 19).
123
Copyright ОАО «ЦКБ «БИБКОМ» & ООО «Aгентство Kнига-Cервис»
Рисунок 19 – Развитие полиенрезистентного штамма GD II-ун2 G. lucidum на сусло-агаре, содержащем 120 ЕД/мл нистатина (стрелкой указан мицелиальный валик)
Это можно объяснить постепенной активацией адаптационных биохимических механизмов, позволяющих противостоять воздействию высоких доз нистатина. После полного освоения колониями питательной среды части мицелия были отвиты в пробирки со скошенным сусло-агаром без добавления нистатина.
Впоследствии был произведен рассев всех включенных
висследование штаммов G. lucidum на чашки Петри на суслоагар, в трех повторениях для выращивания одновозрастного мицелия. После полного освоения среды мицелиальные пленки аккуратно снимали и высушивали на воздухе. Определение содержания эргостерина в мицелии проводили газохроматографическим методом с дериватизацией в триметилсилильные производные.
Результаты исследований выявили существенные различия
всодержании эргостерина даже между обычными (полиенчувствительными) штаммами G. lucidum в 1,3 – 2,1 раза. При этом максимальное содержание эргостерина обнаружено в мицелии штамма Gl-1, который характеризуется повышенной склонностью к плодоношению в чистой культуре. Этот факт косвенно
124