Материал: ИздательствоСанкт-Петербургский государственный педиатрический медицинский университет ISBN978-5-907065-27-7Год2018Страниц28Уровень образованияОрдинатура, Специалитет. Нейрогуморальная регуляция менструального цикла
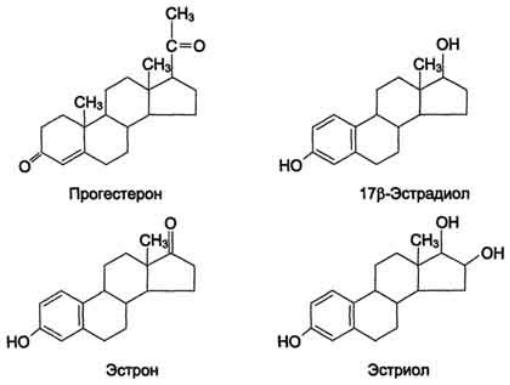
ками в основном в период старения – в постменопаузе; наиболее активная фракция – эстрадиол, она значима в наступлении и сохранении беременности.
На протяжении всего менструального цикла количество половых гормонов неодинаково. По мере роста фолликула увеличивается синтез всех половых гормонов, но преимущественно эстрогенов. В период после овуляции и до начала менструации в яичниках преимущественно синтезируется прогестерон, выделяемый клетками желтого тела.
Эстрогены
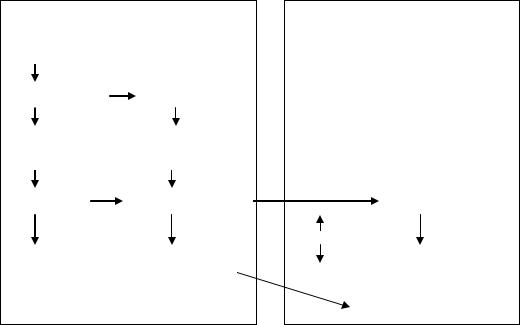
Согласно современным представлениям, образование эстрогенов яичников предполагает выработку андрогенов (андростендиона) в клетках теки фолликулов с последующей ароматизацией андрогенов в клетках гранулёзы. ЛГ, воздействуя на клетки теки, активирует фермент, который катализирует отщепление боковой цепи холестерола и превращает его в прегненолон, тем самым стимулирует образование основного андрогена яичников – андростендиона. ФСГ взаимодействует с клетками гранулёзы, активирует содержащийся в этих клетках ароматазный ферментативный комплекс и стимулирует превращение андрогенов в эстрогены. Ароматизация андрогенов под действием ароматазного комплекса, содержащего цитохром Р450-оксидазу, включает 3 реакции гидроксилирования, которые протекают с участием О2 и NADPH.
Женские половые гормоны. (Северин Е.С. - 2003)
Основные эффекты эстрогенов:
Определяют развитие вторичных половых признаков;
Стимулируют развитие половых органов, особенно матки;
Способствуют росту и развитию фолликулов в яичнике;
15
Вызывают пролиферацию эндометрия, стимулируют его регенерацию после менструации;
Способствуют развитию выводящей системы молочных желез;
Усиливают перистальтику маточных труб в период овуляции и миграции оплодотворенной яйцеклетки;
Стимулируют углеводный обмен (синтез в цикле Кребса АДФ, АТФ и актомиозина), способствуют накоплению гликогена во влагалищном эпителии;
Усиливают этерификации холестерина (стимулируют липогенеза и тормозят липолиз);
Влияют на терморегуляцию, вызывая снижение температуры тела, в частности базальной (в прямой кишке);
Участвуют в водно-солевом обмене (задерживают натрий и воду в организме);
Регулируют обмен кальция в трубчатых костях;
Подавляют костно-мозговое кроветворение (эритро- и тромбоцитопоэз); Значительная часть эстрогенов продуцируется путём периферической арома-
тизации андрогенов в жёлтом теле, фетоплацентарном комплексе (во время беременности), корой надпочечников, в жировых клетках, печени, коже и других тканях, где обнаружена повышенная ароматазная активность.
В клетках гранулёзы может синтезироваться менее активный эстроген - эстрон, а ещё менее активный эстриол образуется из эстрона в крови. Инактивируется эстрадиол в результате гидроксилирования ароматического кольца по атому углерода С2 и образования конъюгатов с серной или глюкуроновой кислотами, которые и выводятся из организма с жёлчью или мочой.
Эстрогены стимулируют развитие тканей, участвующих в размножении, определяют развитие многих женских вторичных половых признаков, регулируют транскрипцию гена рецептора прогестина. В лютеиновой фазе под действием эстрогенов вместе с прогестинами пролиферативный эндометрий (эпителий матки) превращается в секреторный, подготавливая его к имплантации оплодотворённой яйцеклетки.
Совместно с простагландином F2α эстрогены увеличивают чувствительность миометрия к действию окситоцина во время родов. Эстрогены оказывают анаболическое действие на кости и хрящи. Другие метаболические эффекты эстрогенов включают поддержание нормальной структуры кожи и кровеносных сосудов у женщин, способствуют образованию оксида азота в сосудах гладких мышц, что вызывает их расширение и усиливает теплоотдачу. Эстрогены стимулируют синтез транспортных белков тиреоидных и половых гормонов. Эстрогены могут индуцировать синтез факторов свёртывания крови II, VII, IX и X, уменьшать концентрацию антитромбина III.
Эстрогены оказывают влияние на обмен липидов. Так, увеличение скорости синтеза ЛПВП и торможение образования ЛПНП, вызываемое эстрогенами, приводит к снижению содержания холестерола в крови.
Примерно 95% циркулирующих в крови эстрогенов связано с транспортными белками – СГСБ (секс-гормонсвязывающий белок) и альбумином. Биологической активностью обладает только свободная форма эстрогенов.
16
Клетки theca (ЛГ) |
|
Гранулезные клетки (ФСГ) |
|
Холестерин |
|
|
|
Прегненолон |
Прогестерон |
|
|
17(ОН)– |
17(ОН)– |
|
|
прегнелон |
прогестерон |
|
|
ДГЭА |
Андростендион |
|
Эстрон |
Ароматаза
Андростен- Тестостерон
 Эстрадиол диол
Дигидротестостерон
Упрощенная схема взаимодействия клеток theca и гранулезных клеток в процессе образования эстрадиола (Drummond A.E., 2006).
Регуляция секреции эстрогенов
В детском возрасте концентрация эстрогенов в крови низкая, поскольку незрелые яичники вырабатывают небольшое количество гормонов. В пубертатный период чувствительность гипоталамо-гипофизарной системы к действию ЛГ и ФСГ снижается. Импульсная секреция ГнРГ устанавливает суточный ритм секреции ЛГ и ФСГ. В начале каждого менструального цикла секреция ФСГ и ЛГ вызывает развитие первичных фолликулов. Созревающий фолликул в результате совместного действия ЛГ, стимулирующего продукцию андрогенов клетками теки, и ФСГ, стимулирующего ароматизацию андрогенов, секретирует эстрогены, которые по механизму отрицательной обратной связи угнетают секрецию ФСГ. Концентрация ФСГ в крови остаётся низкой ещё и в результате торможения секреции этого гормона белком ингибином, выделяемым яичниками
По мере созревания фолликула концентрация эстрадиола повышается, чувствительность гипофизарных клеток к гонадолиберину возрастает, и эстрадиол по механизму положительной обратной связи повышает секрецию ЛГ и ФСГ.
Повышение секреции ЛГ приводит к овуляции – освобождению яйцеклетки из лопнувшего фолликула. После овуляции клетки гранулёзы превращаются в жёлтое тело, которое, помимо эстрадиола, начинает вырабатывать всё большее количество основного гормона лютеиновой фазы – прогестерона (прогестина). Если возникает беременность, жёлтое тело продолжает функционировать и секретировать прогестерон, однако на более поздних этапах беременности прогестерон в основном продуцируется плацентой. Если оплодотворение не происходит, высокая концентрация прогестерона в плазме крови по механизму отрицательной обратной связи угнетает активность гипоталамо-гипофизарной системы, тормозится секреция ЛГ и ФСГ, жёлтое тело разрушается, и снижается продукция стероидов яичниками. Наступает менструация, которая длится при-
17
мерно 5 дней, после чего начинает формироваться новый поверхностный слой эндометрия, и возникает новый цикл.
Образование прогестерона
Прогестерон, образующийся главным образом жёлтым телом во время менструации в лютеиновую фазу, секретируется также фетоплацентарным комплексом во время беременности. В небольших количествах он вырабатывается корой надпочечников. В фолликулярной фазе менструального цикла концентрация прогестерона в плазме обычно не превышает 5 нмоль/л, а в лютеиновой фазе увеличивается до 40–50 нмоль/л. В крови прогестерон связывается с транспортным глобулином транскортином и альбумином, и только 2% гормона находится в свободной биологически активной форме. Т1/2 прогестерона в крови составляет 5 мин. В печени гормон конъюгируется с глюкуроновой кислотой и выводится с мочой.
Биологические эффекты прогестерона
В высоких дозах блокирует выделение ФСГ и ЛГ, в низких – стимулируют выделение гонадотропинов;
Подавляет овуляцию при оплодотворении яйцеклетки
Обеспечивают сохранение жизнедеятельности оплодотворенной яйцеклетки;
Подавляет возбудимость и сократительную способность миометрия;
Подавляет пролиферативные и осуществляют секреторные изменения в функциональном слое эндометрия;
Имеет Na-уретический эффект (в противоположность эстрогенам);
Способствует подготовке молочных желез к лактации, действуя на альвеолярный аппарат молочных ходов;
Способствует усвоению организмом веществ, в частности белков (анаболический эффект);
Обусловливает повышение базальной температуры тела за счет снижения порога чувствительности центра терморегуляции;
Снижает тонус венозных клапанов
Действие прогестерона в основном направлено на репродуктивную функцию организма. Образование прогестерона отвечает за увеличение базальной температуры тела на 0,2–0,5°С, которое происходит сразу после овуляции и сохраняется на протяжении лютеиновой фазы менструального цикла. При высоких концентрациях прогестерон взаимодействует с рецепторами, локализованными в клетках почечных канальцев, конкурируя таким образом с альдостероном. В результате конкурентного ингибирования альдостерон теряет возможность стимулировать реабсорбцию натрия.
Прогестерон может также оказывать действие и на ЦНС, в частности вызывать некоторые особенности поведения в предменструальный период.
18
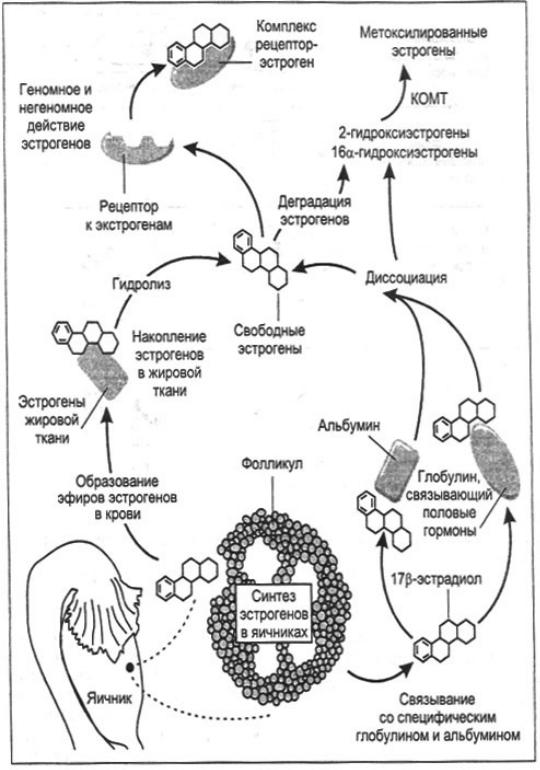
Процессы образования, транспорта и метаболизма эстрогенов
(Gruber C.J., еt al., 2002).
Андрогены (андростендион и тестостерон) продуцируются текаклетками фолликула и межуточными клетками. Их уровень на протяжении менструального цикла не меняется. Попадая в клетки гранулезы, андрогены активно подвергаются ароматизации, приводящей к их конверсии в эстрогены. В норме уровень основного андрогенного гормона тестостерона составляет 1,6– 1,9 нмоль/л.
19