Материал: Кленова Н.А. Биохимия патологических состояний
мента. Поскольку комплекс С1 формируется с участием кальция, агенты, избирательно связывающие ионы Са2+ (ЭГТА), угнетают активацию комплемента только по классическому пути.
Стабильность комплексных протеаз различна при различных значениях рН: ферменты альтернативного пути проявляют бóльшую активность в кислой среде, а классического пути – в щелочной.
Регуляция активности комплемента в плазме осуществляется с помощью ингибиторных белков. Важнейшими из них являются ингибиторы С1 и С3 В условиях дефицита ингибитора С1 , являющегося одновременно ингибитором активного контактного фактора, плазмина и калликреина, происходит чрезмерное выделение медиаторов воспаления, быстрое расходование С1-компонента комплемента. Ингибитор С1 представляет собой α2-глобулин, который синтезируется в моноцитах и относится к подклассу ингибиторов сериновых протеаз. Он препятствует спонтанной активации С1 и медленно разрушает С1 , выполнившего свою функцию.
Ингибитор С3 компонента расщепляет его на неактивные фрагменты С3с и С3d. Одновременно он тормозит протеолиз В-фактора и, соответственно, блокирует активацию комплемента по альтернативному пути. Недостаток ингибитора С3 приводит к истощению запасов остальных компонентов комплемента, то есть к снижению бактерицидных свойств организма и хроническим инфекциям.
Патологией является как повышение, так и понижение способности к активации комплемента. Поскольку основной целью функционирования комплемента служит лизис клеток, особенно опасна его повышенная и неконтролируемая активность, обычно вызывающая повреждение клеток самого организма. Чаще всего к этому приводит избыток комплексов анти- ген-антитело, активирующих комплемент по классическому пути и приводящих к освобождению огромных количеств медиаторов воспаления, повреждающих ткани.
Явления гиперактивации комплемента выражены при следующих заболеваниях:
1.Системная красная волчанка (СКВ). Образование большого количества комплексов антиген-антитело обусловлено генетической поломкой узнавания главного комплекса белков гистосовместимости (ГКГС) и формированием антител к ядрам собственных клеток. Болезнь сопровождается тяжелой почечной недостаточностью из-за отложения в почечных канальцах крупных комплексов: антиген- антитело-комплемент и развитием вторичной иммунодефицитности из-за исчерпания резервов компонентов комплемента.
2.Хронический гломерулонефрит. Отложение в мембранах почечного
эпителия производных компонента С3 . В плазме больных обнаруживается фактор, который активирует С3, образуя особый, дополнительный путь активации комплемента. Наличие этого фактора,
16
вызывающего постоянную активацию комплемента, приводит к отложению в почечном эпителии производных С3 и постоянному расходованию компонентов комплемента, поэтому развивается его недостаточность.
3.Сывороточная болезнь. Введение в организм больших доз чужеродных веществ (белков) сопровождается синтезом большого количество антител и в результате образуется много комплексов анти- ген-антитело. Это сопровождается активацией комплемента, фактора Хагемана, выделением гистамина.
4.Иммуноваскулит. Поражение сосудов вследствие отложения комплексов антиген-антитело на интиме. Изменение интимы ведет к активации фактора Хагемана и микротромбозам.
5.Хронический ревматоидный полиартрит. Присутствие в плазме видоизмененных антител вызывает гиперактивацию системы комплемента и, как следствие, снижение уровня компонентов комплемента в суставной жидкости. Видоизмененные антитела определяются в плазме (α и γ-глобулины) и составляют так называемый рев-
матоидный фактор.
6.Амилоидоз. Патогенез связывают с накоплением веществ, которые являются производными или хотя бы приближаются по структуре к некоторым компонентам комплемента. При первичном амилоидозе накапливаются, прежде всего волокна иммуноглобулинов, при вторичном (осложнение тяжелых заболеваний) возникают белки, близ-
кие к пропердину и С-реактивному белку.
Среди генетически обусловленных состояний дефицита комплемента наиболее изучен дефицит С2 у человека. Подобный генетический дефект приводит к развитию ювенильного ревматизма, системной красной волчанки, бронхиальной астмы, экземы. Врожденный дефицит факторов на-
чальных этапов активации обычно не вызывает тяжелых расстройств, так как есть возможность взаимозаменяемости активации по классическому или по альтернативному пути.
«Вторая волна» медиаторов воспаления. Среди медиаторов воспале-
ния «второй волны» особое значение имеют простагландины, лейкотриены, тромбоксаны, простациклины. Первичным источником всех выше названных биологически активных соединений, обладающих широким спектром воздействий, является арахидоновая кислота. Многочисленные биохимические превращения арахидоновой кислоты осуществляются различными ферментативными системами, среди которых особая роль принадлежит циклооксигеназе (ЦОГ), липоксигеназе (ЛОГ) и системе гидроксилаз, составляющих цитохром Р450.
Превращению арахидоновой кислоты данными ферментными системами предшествует отщепление самой кислоты от фосфолипидов (в ос-
17
новном от фосфатидилинозитола) цитоплазматических мембран под действием фосфолипаз.
Циклооксигеназное окисление арахидоновой кислоты.
Арахидоновая кислота присутствует в мембранных фосфолипидах, в основном в составе фосфатидилинозитола. Освобождение ее происходит
спомощью фосфолипазы А2. Активация самой фосфолипазы А2 сложный, рецепторнозависимый процесс. Транслокация и активация фермента сопряжены с диссоциацией комплекса G-белков (Gi-типа) и часто связаны
содновременной активацией фосфолипазы С:
Фосфолипаза А2 Фосфатидилинозитол Арахидоновая кислота
Фосфолипаза С Фосфолипаза А2
Диацилглицерол |
Арахидоновая кислота. |
Внастоящее время есть основания предполагать, что в клетке фосфолипаза С ассоциирована с белком или липидом с М. 20 кДа [39].Фосфолипаза
А2 обнаружена как в мембраносвязанном состоянии, так и в цитозоле (лизосомального происхождения). Оптимум рН для ее действия лежит в кислой
области. Предполагается, что в активации цитозольного фермента участвует кальмодулин и Са2+[19].
После освобождения арахидоновая кислота подвергается превраще-
нию в циклическую эндоперекись (PGG2) под действием растворимой циклооксигеназы (ЦОГ). Изучение молекулярной организации ЦОГ показало, что для проявления ее активности необходимы гем и негемовое железо [21], а также транслокация фермента в интрацеллюларную область мембраны. Ингибитором активности ЦОГ служат ацетилсалициловая кислота
иамидопирин. Это лежит в основе их жаропонижающего действия.
Вразличных клетках циклическая эндоперекись претерпевает разнообразные превращения: во многих клетках под действием мультиферментного комплекса, называемого простагландинсинтетазой, производятся простагландины. Причем в большинстве клеток ЦОГ также входит в данный комплекс ферментов. Кроме ЦОГ в него входят пероксидазы, редуктазы и изомеразы. Установлено также участие в окислении арахидоновой кислоты
ипроизводстве биологически активных соединений цитохрома Р-450. Этот гемопротеид катализирует окисление различных эндогенных и чужеродных веществ и найден в клетках растений, микроорганизмов и животных [21]. Он является терминальной оксидазой моноаминоксидаз.
Известны две группы первичных простагландинов – серий Е и F, отличающихся друг от друга тем, что первые содержат кетогруппу, а вторые
–гидроксильную группу при С-9 циклопентанового кольца. Каждая из се-
рий включает по три простагландина: Е1, Е2, Е3, F1α, F2α, F3α. Остальные
18
относятся к вторичным, так как являются продуктами ферментативного превращения первичных. Так, простагландины серии А образуются в результате дегидратации циклопентанового кольца простагландинов Е (ПГЕ), а серии В – из простагландинов А (ПГА) путем изомеризации двойной связи кольца. Всего различают 10 типов простагландинов, обозначаемых буквами латинского алфавита от А до J. Учитывая количество двойных связей, к буквам добавляется нижний индекс 1,2,3. В зависимости от пространственного положения гидроксила к индексам добавляются буквы α и β. Простагландины обладают широким спектром биологической активности: стимулируют сокращение матки, бронхов и миокарда, тормозят желудочную секрецию. В клетках эндотелия сосудов производные простагландинов – простациклины – вызывают вазодилатацию и тормозят агрегацию и активацию тромбоцитов. Конечные продукты биосинтеза простагландинов неодинаковы в различных органах и тканях. Простагландины типа F усиливают аллергическую реакцию, типа Е: ПГЕ1 – природный пироген, разобщитель окисления и фосфорилирования, ПГЕ2 ускоряет агрегацию тромбоцитов.
Изучение комплекса ферментов, катализирующих превращение арахидоновой кислоты в тромбоцитах, показало существенные различия с другими клетками. Этот комплекс был назван тромбоксансинтетазой. Тромбоксансинтетаза локализована в мембранах эндоплазматической сети [9], здесь же обнаруживаются некоторые компоненты моноаминоксидазной системы: гемопротеид близкий к цитохрому Р-450, цитохром b5. Тромбоксансинтетаза катализирует превращение простагландина ПГН2
втромбоксан А2 (ТрА2), который является мощным стимулятором активации и агрегации тромбоцитов. Установлено, что для нормального функционирования тромбоксансинтетазы необходимы гем и протопорфирин IX [Ho P.P.K., Walters C.P., Sullivan H.R., 1976, цит. 10]. Циклический АМФ
ввысоких концентрациях подавляет гидролитическое отщепление арахидоновой кислоты в фосфолипидах мембран тромбоцитов.
Ингибитор цитохрома Р-450 имидазол блокирует процесс превраще-
ния простагландина ПГG2 в ПГН2, что угнетает производство тромбоксана А2 и активацию и агрегацию тромбоцитов в ходе воспалительного процесса. Цитохром Р-450 участвует также в синтезе простациклина ПГI2 в эндотелии, однако простациклины оказывают противоположное тромбоксанам действие – ингибируют активацию и агрегацию тромбоцитов. В связи
сэтим в ходе воспалительного процесса стимулируются как компоненты свертывающей, так и компоненты противосвертывающих систем. Преимущество в активности той или иной системы при развитии воспаления зависит от индивидуальных особенностей организма.
Таким образом, в циклооксигеназном превращении арахидоновой кислоты на дальнейших этапах активно участвуют и ферменты системы гид-
роксилаз – цитохром Р-450.
19
Липоксигеназный путь превращений арахидоновой кислоты.
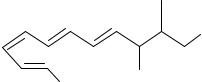
Окисление данной кислоты осуществляет комплекс ферментов, называемый липоксигеназой. Различные липоксигеназы осуществляют окисление ненасыщенных жирных кислот, имеющих 4 двойные связи (арахидоновая или 5,8, 11,14-эйказатетраеновая кислота) в разных положениях двойной связи. Все известные в настоящее время биологически активные соединения окислены в 5-м положении под действием 5-липоксигеназы. Поскольку данные соединения содержат двойные связи и впервые были обнаружены в лейкоцитах, они названы лейкотриены. Помимо липидного компонента некоторые лейкотриены (ЛТ) содержат аминокислотные остатки. Общую формулу наиболее важных лейкотриенов можно представить следующим образом:
OH
COOH
X
C5H11
Х – аминокислотный фрагмент молекулы.
Различные лейкотриены обозначаются латинскими буквами. В лейкотриене С аминокислотный участок представлен глутатионом, лейкотриен D содержит цистеилглицин, а лейкотриен Е – цистеин. Во всех случаях аминокислотные фрагменты присоединены к остатку жирной кислоты через атом серы цистеина. Наличие и количество двойных связей обозначаются нижним индексом. Например, ЛТС4, ЛТС3, ЛТС5 и т.п.[Samulson B., Borgeant P., Hammarstroms, 1979, цит. 12].
Лейкотриены являются сильными спазмогенами гладких мышц дыхательных путей и кишечника. В отличие от гистамина, лейкотриены вызывают более сильное и продолжительное сокращение, однако их действие развивается медленнее, чем под действием гистамина [3].
Лейкотриены проявляют выраженную активность в концентрациях 5·10–9 – 5,5·10–4М. Механизм их спазмогенного действия до конца еще не изучен, известно лишь, что он не связан с мобилизацией кальция из саркоплазматического ретикулума. Лейкотриены С4 и D4 повышают проницаемость сосудов кожи, оказывая подобное гистамину действие [Hanna C.J.and oll., 1981, цит. 12]. Основной функцией лейкотриенов В считают индукцию хемокинеза лейкоцитов, их агрегации и дегрануляции. ЛТВ4 – мощный фактор хемотаксиса для нейтрофилов и эозинофилов и сравним по действию с С5а фрагментом белков комплемента.
20