Материал: Литусов Н.В. Частная вирусология
106
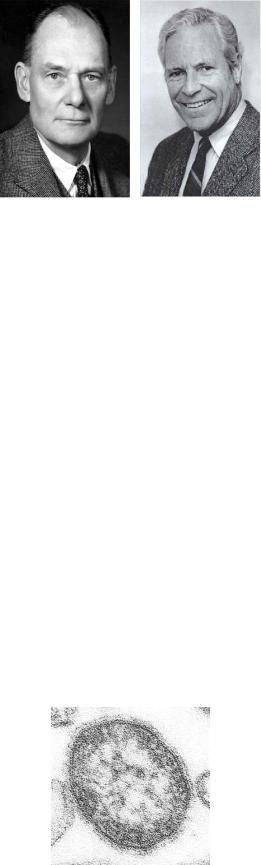
В 1954 г. американские ученые Дж. Эндерс и Т. Пиблс (рисунок 109) выделили от больного ребенка в культуре клеток вирус кори.
А |
Б |
Рисунок 109 - А - Джон Эндерс (John Franklin Enders, 1897-1985 гг.); Б - Томас Пиблс (Thomas Chalmers Peebles, 1921-2010 гг.). Заимствовано из Интернет-
ресурсов.
Таксономическое положение. Возбудитель кори (Measles morbillivirus –
MeV) относится к РНК-содержащим вирусам порядка Mononegavirales семейства Paramyxoviridae рода Morbillivirus. В состав этого рода включено 7 видов вирусов, из которых патогенным для человека является только возбудитель кори, остальные представители этого рода поражают животных.
Вирус кори имеет один серотип и более 20 генотипов, объединенных в 8 групп (A, B, C, D, E, F, G, H). На территории России в разное время были изолированы штаммы – представители генотипов A, D4, D6, H1, C2. Представители генотипа А являлись эндемичными до середины 90-х годов ХХ века. В последующем стала отмечаться эндемичная циркуляция представителей генотипов D4 и D6. Единичные случаи выделения в России штаммов генотипов С2 и Н1 связаны с завозом инфекции.
При персистировании вируса кори в ЦНС человека он вызывает развитие подострого склерозирующего панэнцефалита (ПСПЭ).
Структура вируса. Морфология вируса кори типична для парамиксовирусов: вирион сферической формы, диаметр вириона составляет 150-250 нм, снаружи вирион покрыт липопротеиновым суперкапсидом с шипами длиной до 8 нм (рисунок 110).
Рисунок 110Вирус кори, электронная микроскопия. Заимствовано из Интернетресурсов.
107
Геном вируса кори представляет собой одноцепочечную нефрагментированную молекулу минус-РНК. В геноме вируса закодирована информация о 6 структурных белках: N, P, M, F, H и L (рисунок 111).
3' |
N |
|
P |
|
M |
|
F |
|
H |
|
L |
5' |
|
|
|
|
|
Рисунок 111 – Геном вируса кори и кодируемые им структурные белки.
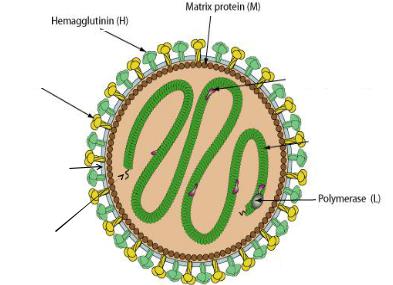
Снаружи вирусная частица имеет суперкапсид – липидный бислой. В состав суперкапсида включены белки Н (гемагглютинин) и F (белок слияния), образующие на поверхности оболочки шипы. Изнутри к суперкапсиду прилегает матриксный белок М. В центре вирусной частицы располагается нуклеокапсид спирального типа симметрии. В состав нуклеокапсида входит нуклеопротеин (белок N), фосфопротеин (Р-белок) и L-белок. Белки Р и L ассоциированы с РНК-зависимой РНКполимеразой. Структура вируса кори представлена на рисунке 112.
|
Н-белок |
|
||
М-белок |
||||
( |
гемагглютинин |
) |
||
|
||||
|
||||
|
|
|
|
|
F-белок
(белок слияния) Р-белок (фосфопротеин)
N-белок
(нуклеопротеин)
Липидный бислой (суперкапсид)
|
|
L-белок |
|
|
РНК |
|
|
|
|
РНК-полимераза |
||||
|
||||
|
|
(P+L-белки) |
||
Рисунок 112 – Структура вируса кори. Заимствовано с сайта ViralZone.
Вирус кори обладает гемагглютинирующей и гемолитической активностью. Нейраминидаза отсутствует.
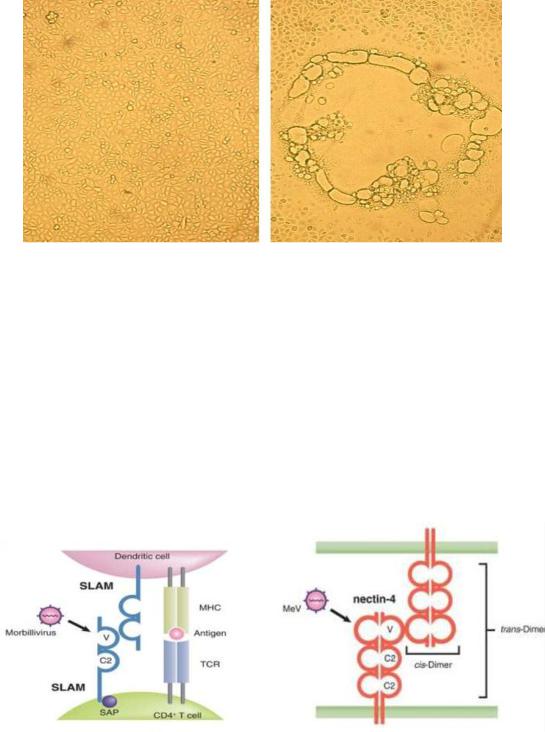
Культивирование. Вирус кори культивируют на первичнотрипсинизированных культурах клеток почек обезьян и человека, а также на перевиваемых культурах клеток HeLa и Vero. На клеточных культурах вирус размножается с образованием гигантских многоядерных клеток (до 100 ядер) – симпластов (рисунок 113).
108
А Б
Рисунок 113 – Цитопатический эффект вируса кори на культуре клеток Vero – образование гигантских многоядерных клеток – симпластов с последующей деструкцией и формированием крупных полостей типа “мыльных пузырей”. А – нормальная клеточная культура. Б – инфицированная вирусом культура. Заимствовано из Интернет-ресурсов.
Жизненный цикл вируса кори также протекает в цитоплазме инфицированной клетки. Вначале вирус с помощью Н-белка (гемагглютинина) взаимодействует с рецепторами на поверхности клетки. В качестве рецепторов вирус кори использует сигнальную молекулу активации лимфоцитов (Signaling lymphocyte activation molecule – SLAM/CD150) и рецептор эпителиальных клеток – нектин-4 (рисунок 114).
Рисунок 114 – Клеточные рецепторы для вируса кори. Заимствовано из Интернетресурсов.
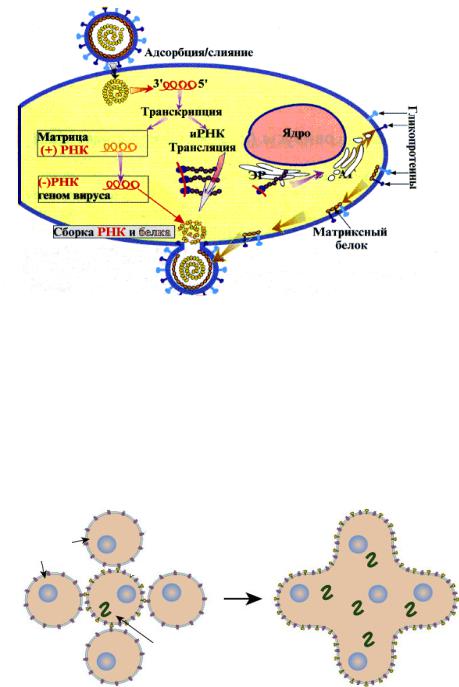
После адгезии F-белок (белок слияния) обусловливает слияние суперкапсидной оболочки вируса с клеточной мембраной. В результате этого нуклеокапсид проникает внутрь клетки. В цитоплазме клетки происходит раздевание вируса и высвобождение вирусной РНК. В цитоплазме клетки на основе вирусной минус-РНК с помощью вирусной РНК-зависимой РНК-полимеразы синтезируется мРНК, а затем – копии плюс-РНК. Плюс-РНК выступает в качестве матрицы для синтеза минус-РНК дочерних вирионов. Одновременно на основе вирусной минус-РНК синтезируется иРНК, которая служит матрицей для синтеза
109
вирусных белков. Сборка дочерних вирионов происходит также в цитоплазме клетки. Вначале формируется нуклеокапсид с Р- и L-белками, который транспортируется к предварительно модифицированным участкам клеточной мембраны. В этих участках с наружной стороны встроены белки Н и F, а с внутренней стороны – белок М. Выход дочерних вирионов из клетки осуществляется путем почкования (рисунок 115).
Рисунок 115 – Схема репродукции вируса кори (Воробьев А.А., Быков А.С., 2003).
При кори в организме возможно образование гигантских многоядерных клеток (клеток Уортина-Финкельдея) в результате слияния инфицированной клетки с незараженными клетками. В результате этого образуется характерный для коревой инфекции многоядерный синцитий. Схема образования многоядерных гигантских клеток представлена на рисунке 116.
Незараженные |
клетки |
Синцитий |
Зараженная |
клетка |
Рисунок 116 – Схема образования синцития. Заимствовано из Интернет-ресурсов.
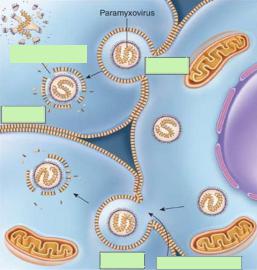
Этот процесс способствует перемещению вируса из инфицированной клетки в здоровую клетку без выхода во внеклеточное пространство (рисунок 117). Такое перемещение способствует сохранению вируса на фоне высоких титров антител.
110
Декапсидация
Клетка 1
Клетка 2
Клетка 3 Точка слияния
Рисунок 117 – Перемещение вируса кори из инфицированной клетки в здоровую. Заимствовано из Интернет-ресурсов.
Эпидемиология. Корь относится к антропонозным инфекциям. Заболевание распространено повсеместно. Восприимчивость человека к инфекции высокая. Чаще корью заболевают дети 4-5 лет. Источником инфекции при кори является больной человек, который заразен для окружающих с последних дней инкубационного периода и до 4 дня после появления сыпи. С 5 дня высыпаний больной считается незаразным. Основным механизмом передачи инфекции является аэрогенный, путь инфицирования - воздушно-капельный. Возбудитель выделяется во внешнюю среду больным человеком со слизью во время кашля, чихания. Входными воротами для вируса кори являются слизистые оболочки дыхательных путей и конъюнктива.
По данным ВОЗ, в мире ежегодно регистрируется до 30 млн случаев заболевания корью, из которых более 500 тысяч заканчивается летальным исходом (в 1999 г. зарегистрировано 873000 летальных исходов, в 2003 г. – 530000летальных исходов, в 2015 г. – 134200 случаев смерти).
Патогенез. После заражения вирус кори внедряется в клетки респираторного эпителия. Клетками-мишенями для вируса кори являются также альвеолярные макрофаги и дендритные клетки дыхательных путей, которые доставляют вирус в лимфатические узлы. В инфицированных клетках и в лимфоидных органах происходит первичная репликация и накопление вирусов. Из мест первичной локализации возбудитель проникает в кровь (первичная вирусемия на 2-3 день инкубационного периода). Количество вируса в крови во время первичной вирусемии невелико, поэтому может быть нейтрализовано введением гаммаглобулина. На этом основана пассивная иммунизация, проводимая в очагах коревой инфекции.
С 3 дня инкубационного периода в лимфатических узлах обнаруживаются гигантские многоядерные клетки Уортина-Финкельдея. Репродукция вируса в лимфоузлах приводит к развитию вторичной вирусемии на 5-7 день после инфицирования. Продолжительность вторичной вирусемии составляет 4-7 дней. В это время поражается эндотелий капилляров, в результате чего возникает кожная сыпь.