Материал: Особенности энергетических процессов головного мозга. Основные биохимические тесты Учебно-методическое пособие
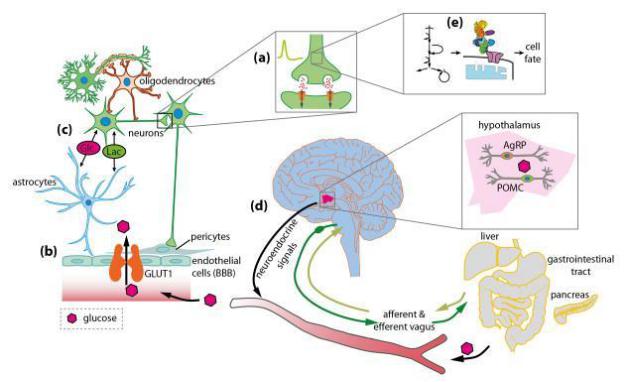
Рис. 1 Роль глюкозы в метаболизме мозга (Grayson BE, et al. 2013).
Наибольшая доля энергии в мозге расходуется на нейронные вычисления и обработку информации, например, генерирование потенциалов действия и постсинаптических потенциалов, генерируемых после синаптических событий, и поддержание ионных градиентов и потенциала покоя нейронов. Кроме того, метаболизм глюкозы обеспечивает энергию и предшественников для биосинтеза нейротрансмиттеров. Важно отметить, что астроцитарный гликоген, по-видимому, имеет непосредственное отношение к обучению.
Потребность мозга в кислороде и глюкозе заметно изменяется в ходе онтогенеза, значительно повышаясь с его ростом и дифференцировкой, а
также формированием отдельных структурно-функциональных ансамблей нейронов. По мере развития головного мозга скорость окисления глюкозы в нем возрастает и одновременно увеличивается зависимость функциональной активности нейронов от интенсивности окислительных процессов как источника энергии.
6
Головным мозгом потребляется до 70% глюкозы, образующейся в печени и выделяющейся из нее в кровь. Потребление глюкозы мозгом взрослого человека, рассчитанное по артериовенозной разнице, составляет в среднем 0,25-0,30 мкмоль/мин. У мелких лабораторных животных (крыс,
мышей) этот показатель выше и в среднем равен 0,60-0,80 мкмоль/мин.
Собственные углеводные запасы в нервной ткани относительно невелики. Это обстоятельство наряду с отмеченной ограниченной способностью мозга использовать другие субстраты окисления лежит в основе характерной для нервной ткани зависимости от постоянного поступления глюкозы из крови. Только при продолжительном голодании клетки начинают использовать дополнительный источник энергии — кетоновые тела.
При уменьшении уровня глюкозы в крови головной мозг продолжает потреблять по-прежнему высокие количества глюкозы и кислорода. И лишь при снижении концентрации глюкозы крови ниже критических величин
(тяжелая гипогликемия) значительно падает потребление мозговой тканью как глюкозы, так и кислорода и развивается коматозное состояние с потерей сознания.
Попытки компенсировать развитие комы и поддерживать энергетический баланс головного мозга путем введения животным различных метаболитов глюкозы (гексозофосфатов, лактата, пирувата,
фруктозы, галактозы и др.) в значительных количествах были неудачными.
При гипогликемической коме лишь внутривенные инъекции глюкозы, могут нормализовать энергетический метаболизм мозга и вывести животное из коматозного состояния. Эти наблюдения указывают на весьма ограниченную способность головного мозга компенсировать уменьшенное поступление глюкозы за счет окисления других энергетических субстратов. Основной причиной этого является низкая проницаемость гематоэнцефалического барьера (ГЭБ) в мозге взрослых животных для других субстратов окисления.
7
Транспорт глюкозы в мозг осуществляется преимущественно с помощью специальной системы переносчиков, активно функционирующей в широких пределах концентраций глюкозы в крови — от 2,75 до 16,50
мкмоль/мл. На долю пассивной диффузии приходится не более 5% от общего потока глюкозы.
Исследования активного переноса глюкозы через ГЭБ, выполненные in vitro на препаратах капилляров мозга, которые рассматривают как анатомический локус ГЭБ, работы на культуре клеток мозга, а также эксперименты in vivo с 14С-глюкозой или ее дериватами, позволили установить основные характеристики этого процесса.
Гексокиназная реакция является доминирующим путем пополнения пула метаболитов гликолиза в мозге, поскольку, как уже упоминалось,
глюкоза представляет собой основной энергетический субстрат в этой ткани.
Окисление иных энергетических субстратов и ввод компонентов в гликолитическую цепь через другие реакции (фосфотриозы и др.) в нервной ткани не имеет существенного значения. Все это позволяет рассматривать гексокиназную реакцию как первый пункт контроля над скоростью энергетического обмена в головном мозге. Лишь в экстремальных ситуациях
— при резкой гипогликемии или в условиях чрезвычайно интенсивного гликолиза при кислородной недостаточности — лимитирующим этапом может стать транспорт глюкозы через ГЭБ.
В клетках центральной нервной системы наиболее энергоёмким процессом, потребляющим до 40 % производимого АТФ, является функционирование транспортной Nа+/K+-АТФ-азы (Na+/K+-«насосa»)
клеточных мембран (рис. 2). Активный транспорт ионов Na+ и K+
компенсирует постоянный поток ионов через ионные каналы.
8
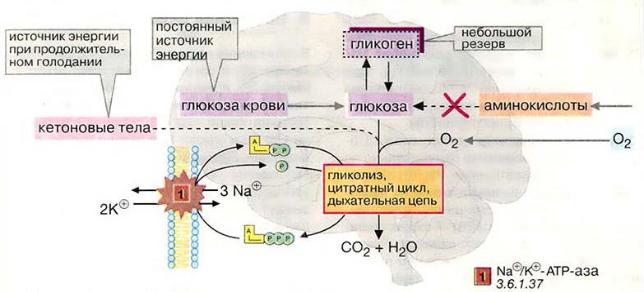
Рис. 2 Распределение энергии в клетках центральной нервной системы
(Нейрохимия под ред. Болдырев А.А, 2010)
Наркотические вещества угнетают в мозге главным образом окисление глюкозы, молочной кислоты и пировиноградной кислоты,
совершенно не действуя, например, на окисление янтарной кислоты. Это угнетение приводит к понижению функциональной активности нервной ткани. Вот почему понижение нервной деятельности во время наркоза или сна сопровождается уменьшением потребления глюкозы мозгом. Наоборот,
при возбуждении центральной нервной системы глюкоза, доставляемая кровью, задерживается и окисляется мозгом в повышенном количестве.
Кроме энергии, глюкоза обеспечивает субстратами процессы биосинтеза медиаторов, аминокислот, липидов, нуклеиновых кислот. Такими субстратами являются промежуточные продукты гликолиза, ацетил-КоА, α-
кетокислот цикла Кребса, метаболиты пентозофосфатного цикла (рибоза-5-
фосфат и НАДФН).
В нервной ткани происходит интенсивный синтез жирных кислот,
сложных липидов (глицерофосфолипидов, сфингомиелина, гликолипидов),
холестерина. Синтез цереброзидов и сульфатидов активнее в период миелинации, а синтез ганглиозидов - при дифференциации нейронов.
9
Расчеты, проведенные на основании многочисленных экспериментов с глюкозой, содержащей 14С в различных положениях углеродной цепи,
показывают, что около 85-90% глюкозы, потребляемой мозгом взрослого животного, полностью окисляется до С02 и Н20; около 5% расходуется в реакциях гликолиза с образованием молочной кислоты и лишь 5-7%
используется в других реакциях (синтез гликогена, синтез церамидной части гликолипидов и гликопротеидов, нейротрансмиттеров и др.). В некоторых случаях, например в экспериментах на мелких лабораторных животных
(белые крысы, мыши) с использованием введенной интрацистернально глюкозы 14С, показана возможность полного 100% окисления этого субстрата до С02 и Н20.
Вопросы для самоконтроля:
1.Опишите основные источники энергии в головном мозге.
2.Укажите физиологическую норму концентрации глюкозы в ткани головного мозга.
3.Опишите транспортные системы глюкозы в ЦНС.
4.Участником, каких неэнергетических процессов является в головном мозге глюкоза.
Лабораторная работа №1. Приготовление ткани головного мозга для определения субстратов
С целью максимально быстрой фиксации ткани для прекращения метаболических реакций и сохранения уровня субстратов применялся метод замораживания мозга с помощью жидкого азота.
Замороженные полушария головного мозга гомогенизировались в фарфоровой ступке, охлажденной жидким азотом. Далее гомогенат депротеинизировали 5% раствором хлорной кислоты (НСlО4).
Тканевой экстракт для определения глюкозы, пирувата и лактата готовили из расчета: 2 г ткани на 6,5 мл НСlО4. Выдерживали на холоде в течение 15 минут и производили центрифугирование при 3000 g 15 минут.
10