Материал: Особенности энергетических процессов головного мозга. Основные биохимические тесты Учебно-методическое пособие
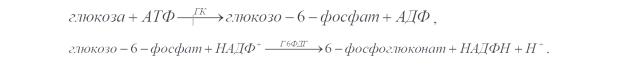
Лабораторная работа №3. Определение активности фермента гексокиназы, лимитирующего фактора гликолиза в клетках головного мозга.
Активность гексокиназы (ГК, КФ 2.7.1.1) определяли спектрофотометрически по увеличению светопоглощения при 340 нм и 37˚С при восстановлении НАДФ.
Реакции имели вид:
Приготовление гомогената из тканей лабораторного животного:
Ткани для приготовления гомогената извлекают тотчас после декапитации животного. Все операции следует проводить при температуре не выше +4о С.
Навески тканей: головной мозг (500 мг), печень (250 мг), сердце (500 мг),
скелетные мышцы (500 мг), тщательно измельчают ножницами и переносят в стакан гомогенизатора. Навеску ткани гомогенизируют 1–2 мин в 7 объёмах охлаждённого фосфатного буфера. Гомогенат центрифугируют (с
охлаждением до +4о С) 10 мин при 600 g для осаждения неразрушенных клеток и ядерной фракции. Супернатант используют в качестве источника гликолитических ферментов. Для получения безмитохондриальной фракции первоначальный гомогенат центрифугируют 10 мин (с охлаждением до +4о
С) при 10000 g.
Ход определения: Реакционная среда состояла из 50 мМ Tрис-HCl
буфера, рН 8,0, содержащего 10 мМ MgCl2, 1 мМ НАДФ, 2 мМ АТФ, 20 мМ глюкозу и супернатант исследуемой ткани 500 мкл. Реакцию запускали добавлением Г6ФДГ (12,5 мкг/мл). За единицу активности фермента принимали количество белка, катализирующее перенос 1 мкмоля фосфата с АТФ на глюкозу.
Количество белка определяли по методу Бредфорда.
16
Лабораторная работа №4. Определение концентрации белка в гомогенате головного мозга методом М.М. Bradford (1976).
Принцип метода: Метод основан на сдвиге спектра поглощения кумасси (COOMASSIE BLUE) в сторону значений 595 нм прямо пропорционально концентрации содержащегося в растворе белка. Кумасси образует комплекс с белком; этот комплекс измеряют при длине волны 595
нм. Абсорбционная фотометрия комплекса кумасси/белок имеет очень высокую чувствительность и эффективна даже в случае следовых концентраций белков.
Реагент (Брэдфорд): 100 мг Кумасси G-250 растворить в 50 мл спирта и добавить 100 мл ортофосфорной кислоты, довести до 1л водой и профильтровать через бумажный фильтр.
Внимание! реагент очень чувствителен к белку (1-2µg/ml). Все должно быть абсолютно чистым и посуда и бумажный фильтр и кюветы и руки,
иначе раствор посинеет и его можно будет вылить. Чистый раствор Брэдфорда имеет коричневый цвет и синеет при наличии белка.
Ход определения:
Смешать 0,5 мл полученного гомогената с 0,5 мл реагента Бредфорда.
Через 10 минут измерить оптическую плотность раствора (D) на ФЭКе при
595 нм против контрольного раствора (0,5 мл фосфатного буфера и 0,5 мл красителя).Концентрация белка определялась путем сравнения полученного значения D с калибровочной кривой. Калибровочный график строится по значениям оптических плотностей, полученных для известных концентраций альбумина.
17
Тема № 3. Мембранный транспорт глюкозы
Глюкоза не растворяется в липидах, поэтому не может преодолеть ГЭБ путем простой диффузии. Глюкоза в клетки попадает в основном пассивно через специальные транспортеры (GLUT). Пассивный транспорт означает,
что глюкоза может попадать из области с большей концентрации в меньшую. Гексокиназа очень быстро фосфорилирует глюкозу при попадании клетку. Вследствие этого снаружи глюкозы всегда больше, чем внутри клетки, что необходимо для пассивного транспорта глюкозы в цитозоль.
Для ее переноса необходимы специальные транспортные белки. В
мозге находят 4 типа переносчиков глюкозы: GLUT1, GLUT2, GLUT3 и
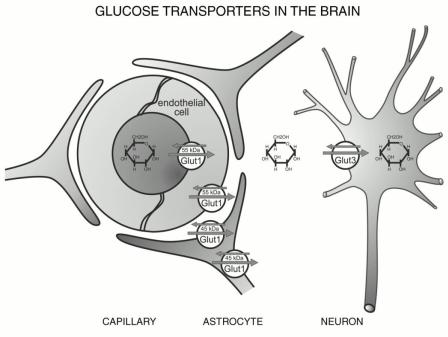
GLUT4 (рис. 3).
Рис. 3 Переносчики глюкозы
(http://usmle.biochemistryformedics.com/glucose-transporter-1glut-1,3).
GLUT1 – основной переносчик, который забирает глюкозу с люминального слоя ГЭБ. В этом процессе инсулин не участвует.
Инсулиннечувствительный GLUT1 характеризуется высокой структурной
18
консервативностью. Так, GLUT1 человека на 97-98% гомологичен GLUT1
крысы, мыши, кролика и свиньи.
GLUT1 и его мРНК обнаруживаются во всех отделах как взрослого, так и развивающегося мозга. Его 45 кДа изоформа обнаружена в кортикальных мембранах, нечувствительных к гипо- и гипергликемии. Изоформа 55 кДа,
уровень которой повышается при гипогликемии и не изменяется при гипергликемии, локализуется в ГЭБ. Концентрация глюкозы, при которой транспорт достигает 50% от максимума (Км), составляет 20 мМ.
Много GLUT1 в эритроцитах, куда глюкоза поступает также без участия инсулина. Возможно, в эритроцитах, поджелудочной железе и в мозге существует один механизм транспорта глюкозы, который не стимулируется инсулином. В ГЭБ в переносе глюкозы от люминальной мембраны к аблюминальной участвуют несколько типов GLUT. Когда глюкозы в крови мало, количество GLUT1 в эпителиальных клетках ГЭБ увеличивается. Это компенсаторная реакция для поддержания работы мозга в условиях дефицита его основного энергетического субстрата. Когда глюкозы в крови много, число GLUT1 остается прежним, и это – причина катастроф,
связанных с острой гипергликемией, и нейродегенеративных процессов,
обусловленных хронической гипергликемией. Хроническая гипергликемия может быть одной из причин развития болезни Альцгеймера и других нейродегенеративных процессов.
GLUT2 — белок-переносчик глюкозы, осуществляющий перенос глюкозы через клеточную мембрану посредством облегченной диффузии.
Это основной переносчик глюкозы между печенью и кровью, также он принимает участие в почечной реабсорбции глюкозы. Также способен переносить фруктозу. GLUT2, в отличие от GLUT4, не регулируется инсулином. GLUT2 присутствует в клеточных мембранах следующих тканей:
печень, поджелудочная железа (бета-клетки), гипоталамус (незначительно),
базолатеральная и апикальная мембраны тонкой кишки, клетки почечных
канальцев. GLUT2 имеет высокую глюкозную ёмкость, но низкую
19
аффинность (сродство) к ней, и поэтому функционирует как часть
«глюкозного сенсора» в β-клетках поджелудочной железы. Является очень эффективным переносчиком глюкозы. GLUT2 также является переносчиком глюкозамина.
GLUT3 работает в нейронах по всему мозгу. Он присутствует в клетках, которым необходимо быстро поглотить большое количество глюкозы. В мозге такие клетки – активно работающие нейроны.
Инсулиннечувствительный GLUT3 — основной глюкозный транспортер нейронов взрослого мозга, обнаружен также в глиальных и эндотелиальных клетках мозга. GLUT3 обладает более высоким сродством к глюкозе (Км ~ 10
мМ), что существенно, поскольку уровень глюкозы в межклеточном мозговом пространстве (интерстиции) ниже, чем в плазме крови.
GLUT3, по-видимому, специфичен для нейронов, так как он был обнаружен в других клетках (сердце, печень) лишь в следовых количествах и совсем не обнаружен в скелетной мышце. Правда, сердце предпочитает использовать в качестве субстрата энергии жирные кислоты, а печень и мышца потребляют глюкозу при стимуляции инсулином. Нейронам такая стимуляция не требуется.
Тем не менее, в мозге есть отделы, которые контролируют потребление энергии в этом органе. В клетках мозга обнаружен чувствительный к инсулину переносчик GLUT4. Инсулинчувствительный GLUT4 имеет преимущественно внутриклеточную локализацию и высокую чувствительность к глюкозе (Км ~ 3 мМ). В ответ на инсулин везикулы,
содержащие GLUT4, подвергаются немедленному экзоцитозу. Высокий уровень этого транспортера отмечен в мозжечке, обонятельных луковицах,
гиппокампе, наименьший — в латеральном гипоталамусе, аркуатных ядрах и больших полушариях. Однако остается неясным, задействован GLUT4 в
нейрональной инсулиновой сигнальной системе или в чувствительных к глюкозе механизмах, лежащих в основе регуляции потребления пищи и веса
тела.
20