Материал: Принципы и основные методы генетической инженерии. (110
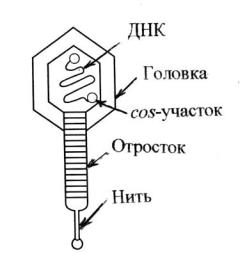
Рис. 4. Схема строения зрелого бактериофага λ.
Линейная двухцепочечная ДНК бактериофага λ состоит примерно из 50 тпн. На концах ДНК имеются cos-участки, отвечающую за упаковку фаговой ДНК в ее протеиновую капсулу
Зачастую полноразмерные гены и мультигенные комплексы (≥ 100 тпн) эукариот слишком велики для встраивания в обычные векторы. Для переноса крупных трансгенов и их клонирования используют искусственные хро-
мосомы дрожжей (YAK – яки от англ. yeast artificial chromosomes), вме-
щающие фрагменты геномной ДНК длиной от 100 тпн до 1 млн пн. Для их создания к плазмиде дрожжей «пришивают» центромерные (CEN) последовательности, теломеры (концевые последовательности), последовательности для автономной репликации (ARS) в дрожжевой клетке, сайты рестрикции и селективные маркеры (TRPI и URA3 – независимость от наличия триптофана и урацила соответственно).
Челночные векторы – это векторы (сконструированные на основе плазмидной ДНК), способные реплицироваться в клетках двух и более организмов. Например, плазмида YEp24 способна размножаться в клетках дрожжей и E. coli. В этом случае векторы имеют специфические нуклеотидные последовательности (специфичные для дрожжей и E. coli), позволяющие реплицироваться или в бактерии, или в дрожжевой клетке. С помощью челночного вектора удалось ввести гены лейкоцитарного интерферона человека в клетки дрожжей. Сконструирован штамм дрожжей, который выделяет в культуральную среду почти чистые α-, β- и γ-интерфероны. Интерферон – ценный лекарственный препарат, широко используемый для борьбы с вирусными инфекциями и другими заболеваниями, включая злокачественные опухоли.
Типичная схема опыта по генетической инженерии представлена на рис. 5 и 6.
11
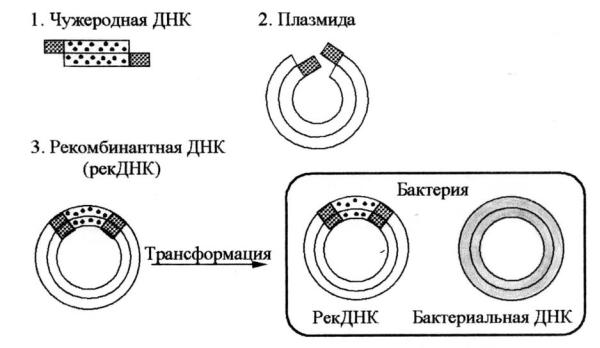
Рис. 5. Схема опыта по генетической инженерии (конструирование рекДНК)
Данный эксперимент включает следующие этапы.
1, 2. Для конструирования рекомбинантной ДНК (рекДНК) векторную ДНК (например, плазмиду) и чужеродную ДНК, содержащую интересующий нас ген (трансген), разрезают одной и той же рестриктазой. Образуются одинаковые «липкие» концы (рис. 5). К генам, синтезированным химическим путем или полученным по матрице их мРНК, такие «липкие» концы можно пришить искусственно.
3.Смешивание различных по происхождению фрагментов ДНК и сшивание их ДНК-лигазой. Липкие концы чужеродной ДНК и плазмиды взаимодействуют друг с другом, образуя комплементарные пары оснований. Происходит гибридизация векторной и чужеродной ДНК. «Липкие» концы замыкаются с помощью водородных связей, а ковалентные сшивают
спомощью фермента ДНК-лигазы.
4.Генетическая трансформация, т.е. перенос и включение рекДНК, содержащей трансген, в клетки реципиента (например, E. coli). Плазмида, встроенная в бактерию, ведет себя как вектор (переносчик) нового гена, который реплицируется в каждом новом поколении.
5.Молекулярная селекция – отбор трансформантов, т.е. клонов, несущих рекДНК. В процессе генетической трансформации E. coli могут образоваться 3 типа клеток: не содержащие пламиду, содержащие плазмиду без встройки (без рекДНК), содержащие плазмиду с рекДНК. Для отбора трансформантов среди нетрансформированных клеток используют различ-
12
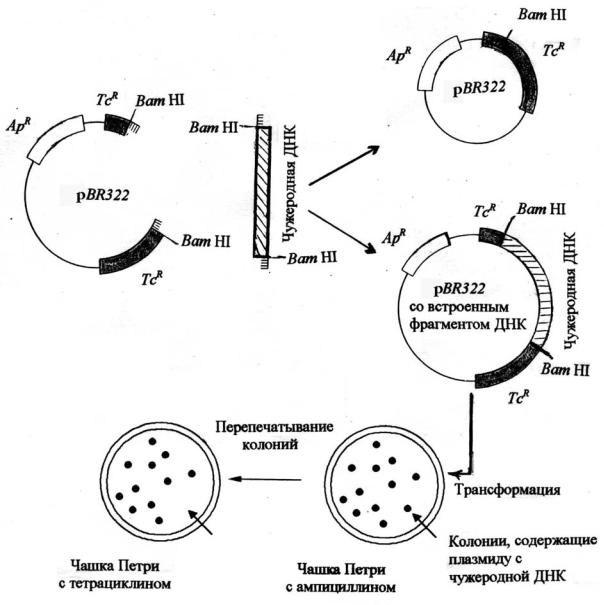
ные маркерные гены, которые находятся в векторной молекуле наряду с трансгеном.
Рис. 6. Схема интеграции чужеродной ДНК в плазмиду pBRR322 и отбор трансформированных клонов E. coli, содержащих
плазмиду с рекДНК
Так, плазмида pBR322 имеет два гена устойчивости к антибиотикам ампициллину (ApR) и тетрациклину (TcR). Один из них служит для идентификации бактерий, несущих плазмиду (вектор) путем отбора клеток, устойчивых к антибиотику, а другой – для отличия гибридной плазмиды (рекДНК) от родительского вектора. В гене TcR имеется уникальный сайт, разрезаемый рестриктазой BamHI (рис. 6). Предположим, мы разрезали вектор в гене TcR рестриктазой BamHI и встроили в него фрагмент чуже-
13
родной ДНК, полученный при помощи той же рестриктазы. Ген TcR инактивируется, следовательно, у бактерий, несущих плазмиду, исчезает устойчивость к тетрациклину, но сохраняется устойчивость к ампициллину. Отбор на среде с ампициллином покажет, содержит E. coli плазмиду или нет. Содержащие плазмиду бактерии будут расти на среде с ампициллином. Для отбора клеток, несущих чужеродную ДНК (интересующий нас ген), бактерии выращивают на среде с тетрациклином. Трансформированные клетки устойчивы к ампициллину, но чувствительны к тетрациклину (такие колонии отсутствуют на среде с тетрациклином), т.к. ген устойчивости к тетрациклину разрушен в результате инсерции фрагмента чужеродной ДНК. Стрелкой на рис. 6 отмечены колонии – трансформанты, которые собирают для опытов с ампициллинового газона.
2.2. Методы переноса генов в клетки различных организмов
Известны многочисленные методы, с помощью которых можно внедрить чужеродную ДНК в геном различных организмов.
В качестве реципиентов, в геном которых встраиваются чужеродные гены, используют клетки культуры, эмбриональные клетки млекопитающих, некоторых растений, дрозофилы, пронуклеусы млекопитающих, у растений – протопласты, изолированные клетки и ткани, микроспоры, незрелые зиготические зародыши, проростки. Трансформация экзогенной ДНК может осуществляться либо в культуре клеток (in vitro = ex vivo), либо непосредственно в организме (in vivo) с использованием следующих методов.
–Микроинъекция. С помощью тонких микроигл и микроманипулятора в клетку или прямо в ядро вводится векторная ДНК с включенным в нее трансгеном. С помощью микроинъекций осуществляется трансформация у дрозофилы, растений.
–Электропорация. Растительные протопласты или животные клетки обрабатывают импульсами электрического поля высокого напряжения, что обратимо увеличивает проницаемость биомембран. Через образующиеся на короткое время поры чужеродная ДНК проникает в клетку.
–Перенос ДНК в составе липосом. Липосомы – это искусственно созданные сферические образования, оболочка которых состоит из фосфолипидов. Липосомы, содержащие внутри трансформирующую ДНК, способны непосредственно сливаться с мембраной клетки или поглощаться клетками
врезультате процесса, подобного эндоцитозу. В клетке происходит разрушение оболочки липосом и высвобождение рекДНК. Это один из методов, который используется для защиты трансформирующего генетического материала от разрушительного действия нуклеаз, присутствующих вне клеток. Метод применяется для введения нуклеиновых кислот в культивируемые животные клетки, растительные протопласты.
14
– Бомбардировка микропулями (баллистическая трансформация). Это один из самых эффективных методов трансформации однодольных и хвойных растений (в которые не удается ввести чужеродную ДНК с помощью агробактерий), а также трансформации животных клеток. Таким путем проводят генотерапию (т.е. исправление наследственных дефектов путем введения в геном полноценных генов) у животных и человека. Для «обстрела» тканей используются частицы из золота или вольфрама размером 0,6–3 мкм, на которые наносится ДНК вектора, содержащий трансген. Этими частицами («микропулями») заряжают «генные» пушки. Микропули разгоняются в установке под действием электрического разряда или под давлением газа гелия. При достаточной скорости эти частицы могут непосредственно проникать в ядро, что сильно повышает эффективность трансформации. Этим же методом можно трансформировать и другие ДНК-содержащие органеллы – хлоропласты и митохондрии.
Для многих двудольных растений эффективна векторная трансформация на основе Ti- и Ri-плазмид с помощью агробактерий. Эффективными переносчиками ДНК в клетки млекопитающих являются «природные шприцы» – вирусы.
2.3. Клонирование генов
Клонирование генов проводят с целью получения того или иного фрагмента ДНК в большом количестве. Этот процесс необходим для получения многочисленных копий желаемых генов. Клонирование ДНК возможно благодаря способности бактериальных плазмид и фагов продолжать нормальное функционирование после встраивания в их геном чужеродной ДНК. Поскольку встроенные в геном чужеродные последовательности ДНК не влияют на свойства химерных штаммов бактерий, практически любая последовательность ДНК может быть клонирована таким образом. Для клонирования плазмиду, содержащую рекДНК, вводят в клетки бактерии (например, E. coli) или дрожжей, где происходит ее многократная репликация. Для клонирования небольших фрагментов ДНК используют плазмиды, фаговые ДНК, а для крупных – космиды и искусственные хромосомы. Клонирование рекомбинантных молекул с генами человека или животных в клетках бактерий дает возможность в условиях микробиологического синтеза получать большое количество нужных белков. Так, искусственно синтезированный человеческий ген инсулина введен в бактерию, что дало возможность получать человеческий инсулин (гормон, широко используемый в медицине при лечении сахарного диабета) в промышленных количествах. Раньше для лечения сахарного диабета использовали инсулин животного происхождения, получаемый из поджелудочной железы крупного рогатого скота. В 1979 г. из 60 млн больных диабетом во всем мире только 4 млн по-
15