Материал: Учу по этому
Билет 1
Классификация ферментов
Глюкагон все о нем
Мутации митохондриальных генов
Классификация ферментов
Ферменты – это специфические белки, которые действуют как катализаторы в биологических системах.
Классификация ферментов.
В принятой классификации ферменты объединены в группы по типу важнейших биохимических процессов, лежащих в основе жизнедеятельности любого организма. По этому принципу все ферменты делят на 6 классов.
Оксидоредуктазы - ускоряют реакции окисления - восстановления.
Трансферазы - ускоряют реакции переноса функциональных групп и молекулярных остатков.
Гидролазы - ускоряют реакции гидролитического распада.
Лиазы - ускоряют негидролитическое отщепление от субстратов определенных групп атомов с образованием двойной связи (или присоединяют группы атомов по двойной связи).
Изомеразы - ускоряют пространственные или структурные перестройки в пределах одной молекулы.
Лигазы - ускоряют реакции синтеза, сопряженные с распадом богатых энергией связей.
Эти классы и положены в основу новой научной классификации ферментов.
2. Глюкагон и все о нем.
Глюкагон – представляет собой пептид, состоящий из 29 аминокислот. Биосинтез глюкагона происходит в α–клетках островков Лангерганса поджелудочной железы, а также в нейроэндокринных клетках кишечника. Аминокислотная последовательность глюкагона большинства видов млекопитающих одинакова. Подобно инсулину, глюкагон образуется в α-клетках поджелудочной железы путем протеолиза из прогормона, который, в свою очередь, входит в состав еще более крупного препрогормона.
Вскоре после синтеза препрогормона в шероховатом эндоплазматическом ретикулуме пре-последовательность отщепляется с образованием прогормона . Далее прогормон вновь подвергается ограниченному протеолизу и образуется активный глюкагон.
Глюкагон накапливается и пакуется в секреторных гранулах, где хранится в виде плотно упакованных кристаллов.
Биосинтез и секреция глюкагона регулируются главным образом концентрацией глюкозы в крови по принципу обратной связи. Повышение концентрации аминокислот в крови (особенно аланина и аргинина) стимулирует секрецию глюкагона в кровь. Поступление глюкагона в кровь возрастает при значительной физической нагрузке (вследствие наступающей аминоацидемии) и нейрогенной стимуляции его секреции. При голодании содержание глюкагона резко увеличивается, в основном за счет замедления его клиренса.
Механизм действия глюкагона – мембранно-внутриклеточный; вторичные посредники - цАМФ.
Основными клетками–мишенями глюкагона являются клетки печени и жировой клетчатки.
Действуя на клетки печени, глюкагон усиливает, главным образом, распад гликогена, что приводит к повышению уровня глюкозы в крови. Гипергликемический эффект глюкагона обусловлен не только распадом гликогена. Глюкагон, действуя на клетки печени, усиливает в них глюконеогенез.
3. Мутации митохондриальных генов.
Мутации митохондриальных генов (МГ) снижают способность клеток производить АТФ, особенно чувствительны нейроны, миоциты, клетки поджелудочной железы.
Известна митохондриальная энцефалопатия. Это наследственное заболевание передается от матери, эмбрион получает МГ, в том числе и мутантные, что приводит к поражению мозга и скелетных мышц.
Редкое заболевание-наследственная нейропатия зрительного нерва Лебера (НЗНЛ) связана с поражением ЦНС, включая зрительные нервы, вызывает потерю зрения уже в раннем возрасте.
Билет 2
Пути транспорта аммиака
Факторы свертывания. Внешний и внутренний пути свёртывания
Клеточные рецепторы
Задача про туристов
Транспорт аммиака
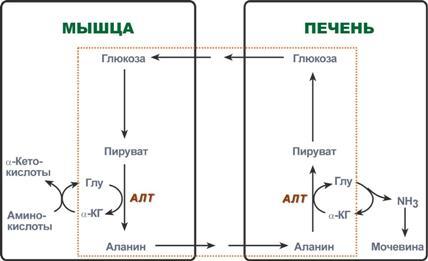
Транспортными формами аммиака из тканей в печень являются глутамин и аланин, в меньшей степени аспарагин и глутамат, некоторое количество аммиака находится в крови в свободном виде. Глутамин и аланин являются наиболее представленными, их доля среди всех аминокислот крови составляет до 50%. Большая часть глутамина поступает от мышц и нервной ткани, аланин переносит аминный азот от мышц и стенки кишечника.
Плазменные факторы свертывания крови.
Фактор I – фибриноген.
Фактор II – протромбин.
Фактор III – тканевый тромбопластин (апопротеин С).
Фактор IV – ионы кальция (Са++).
Фактор V – проакселерин (Ас-глобулин).
Фактор VI –акселерин (сывороточный Ас-глобулин).
Фактор VII – проконвертин (конвертин).
Фактор VIII – антигемофильный глобулин А (плазменный тромбопластический фактор).
Фактор IX – Антигемофильный глобулин В (Кристмас фактор).
Фактор Х – фактор Стюарта – Прауэра.
Фактор XI – плазменный предшественник тромбопластина.
Фактор XII – фактор контакта Хагемана.
Фактор XIII – фибринстабилизирующий фактор (фибриназа, фактор Лаки – Лоранда).
Пути свертывания крови.
Внутренний путь свертывания был так назван потому, что для его запуска достаточно поместить кровь в пробирку без добавления каких-либо компонентов. Каскад реакций в этом случае запускается связыванием ХII фактора (фактор Хагемана) с отрицательно заряженными стеклянными стенками пробирки.
Для запуска внешнего пути необходимо добавление тканевого фактора, который активирует фактор VII. Внутренний и внешний пути свертывания объединяются на этапе активации фактора Х и имеют общую конечную часть. Активированный фактор Х взаимодействует с фактором V, тромбоцитарным фактором III и ионами кальция с образованием протромбинового комплекса.
Клеточные рецепторы
Семейство клеточных рецепторов включает три подсемейства:
Интегрины– трансмембранные белки, связывающие коллаген, фибронектин, ламинин. Функции – участвуют в передаче информации в клетку и в обратном направлении, определяя направление ее дифференцировки, форму, митотическую активность (например: лейкоцитарные белки адгезии).
Кадгерины и селектины – семейство трансмембранных Ca2+ - зависимых гликопротеинов, участвующих в межклеточной адгезии. В отсутствие Са2+ конформация кадгеринов меняется, и они становятся доступными для протеолитических ферментов. Функции– важная роль при адгезии на стадии морфо- и органогенеза. Обеспечивает структурную целостность и померность тканей.
Селектины – 4, Р, Е. Внеклеточная часть селектинов состоит из трех доменов: первый домен представлен 2-9 блоками повторяющихся аминокислотных остатков (комплемент регуляторный белок), второй домен – селектинов – домен эпидермального фактора роста (ЭФР) – именно этот рецептор является мишенью для адресной доставки противоопухолевых лекарственных средств с помощью самого эпидермального фактора роста; третий – N-концевой лектиновый домен, который отвечает за связь с углеводами.
Лектины – это отдельное семейство белков – рецепторов, специфически взаимодействующих с определенными последовательностями углеводных остатков в составе гликопротеинов, протеогликанов и гликолипидов.
Задача.
Туристы, заблудились в тайге и голодали в течение 1 недели. Ни у одного из них не развилась гипогликемическая кома. Они благополучно добрались до населённого пункта, где и были обследованы. Концентрация глюкозы у всех оказалась на нижней границе нормы. Какие процессы поддерживают концентрацию глюкозы при длительном голодании? Какие гормоны обеспечивают стимуляцию этих метаболических путей?
1)Распад гликогена, глюконеогенез.
2)Глюкагон, кортизол, адреналин
Билет 4.
Регуляция ферментов
Особенности метаболизма глю в НТ
Механизм действия наркотиков ДОФА
Задача ответ кетоацидоз из-за сахарного диабета
Регуляция ферментов.
Регуляция каталитической активности отдельных ферментов это высокоэффективный и быстрый способ регуляции метаболизма. Такая регуляция осуществляется с помощью нескольких механизмов. Их можно разделить на физические и химические.
Физические механизмы происходят без образования или разрушения ковалентных связей.
Химические механизмы регуляции активности ферментов осуществляются с образованием или разрушением ковалентных связей.
Физические механизмы: изостерический, аллостерический, регуляция через «белок-белок» взаимодействия.
Изостерический механизм. Регулятор связывается с тем же активным центром, что и субстрат.
Аллостерические (ключевые) ферменты имеют кроме каталитического активного центра, с которым связывается субстрат, аллостерический центр, с которым связываются регуляторы – аллостерические эффекторы.
Регуляция «белок-белок». Возможны два механизма: 1) регуляция через внутримолекулярные взаимодействия олигомерных белков 2) регуляция через межмолекулярные взаимодействия.
Особенности катаболизма глюкозы в нт.
Глюкоза – основной субстрат для получения энергии в клетках нервной системы. Полная зависимость клеток головного мозга от постоянного притока глюкозы из крови, объясняется тем, что собственные запасы данного углевода в мозговой ткани чрезвычайно малы, по сравнению с высокой интенсивностью окисления. Глюкоза попадает в клетки нервной ткани путѐм простой диффузии. 85-90% глюкозы потребляемой мозгом полностью окисляется до СО2 и Н2О. 5% расходуется в реакциях гликолиза с образованием молочной кислоты и лишь 5-7% используется в других реакциях биосинтеза. Головной мозг обладает ограниченной способностью компенсировать уменьшенное поступление глюкозы за счет других метаболитов. Причиной этого является низкая проницаемость ГЭБ в мозге для других субстратов окисления, например, аминокислот.
Основной метаболический путь в головном мозге, дающий энергию – аэробный гликолиз. И если в течение 5 минут в мозг не поступает достаточное количество О2, в нѐм наступают необратимые изменения.
Механизмы действия наркотических веществ. Роль дофаминовой системы.
Ионотропный – это лигандзависимые ионные каналы. Наркотик присоединяется к рецептору, в результате конформационных изменений открывается канал, ионы входят в цитоплазму и активируют белки. Никотин связывается с никотиновыми холинэргическими рецепторами через Na+ канал. Барбитураты, этанол связываются с рецепторами ГАМК (α1, α2, α3), открывая Clканал. Этанол ингибирует глутаматные рецепторы, которые сопряжены с Са++ , Na+ - каналами.
Метаботропный – связан с G-белками. G-белок активирует аденилатциклазу и фосфолипазу С. Образующиеся цАМФ, ИТФ, ДАГ активируют ионные каналы, опиоиды связываются с рецепторами µ, затем активируется G-белок. Если есть генетический дефект µ-рецепторов, то не возникает зависимость. Марихуана, гашиш (каннабиоиды), их рецепторы сопряжены с G-белками в коре мозга. Этанол модифицирует активность рецепторов серотонина, никотиновых, рецепторов ГАМК (α1), глутаматных рецепторов. Кокаин блокирует переносчики дофамина, норадреналина, серотонина. Одним из важнейших эффектов является эффекты дофаминовой системы.