Материал: Hrestomatia_2_2
Заметим, однако, что эта система регуляции должна действовать со значительным опозданием. Представьте, что печень до тех пор не дает сигнала к началу еды, пока уровень глюкозы в крови не опустится. Поскольку пищевой метаболизм — процесс медленный, будет достаточно большой разрыв между моментом подачи сигнала «нужна глюкоза!» и моментом, когда необходимое пополнение поступит. Эта ситуация может быть опасной для организма, и поэтому должна быть исключена. Печень должна предвосхищать будущую потребность организма, следовательно пища должна поступать заранее.
Как же печень определяет нужное время? Это происходит при помощи сигналов, информирующих ее о повышении и понижении уровня глюкозы в крови: когда пища не поступает в организм в течение некоторого времени, этот уровень начинает падать. До того как этот уровень упадет слишком низко, печень начинает извлекать гликоген из запаса и
1 См.: Russek M. Hepatic receptors and the neurophysiological mechanisms controlling feeding behavior // Neurosciences Research. Vol. 4. / S. Ehrenpreis (Ed.). N.Y.: Academic Press, 1971; Friedman M.I., Strieker EM. The physiological psychology of hunger: A physiological perspective // Psychological Review. 1976. Vol. 83. P. 409-431.
Глейтман Г., Фридлунд А, РайсбергА- Мотивация 85
п ерерабатывать его в глюкозу. В результате уровень глюкозы в крови возвращается к норме. Этот процесс имеет ярко выраженные признаки: вслед за постепенным снижением уровня глюкозы, продолжающимся обычно достаточно долго, следует резкий скачок, причиной которого является компенсаторная деятельность печени.
Эта симптоматика медленного спада — быстрого роста не означает, что запас энергии исчерпан; она показывает, что организм использовал свои резервы и что наступило время пополнить их. Когда эти изменения уровня глюкозы происходят у крыс, животные начинают есть1. Когда это происходит с людьми, они также говорят, что голодны и хотели бы что-нибудь съесть.
Внутренние сигналы
Мозговые рецепторы. Печень — лишь один из компонентов в системе, регулирующей прием пищи. Многие исследователи считают, что и сам мозг содержит клетки, чувствительные к уровню глюкозы в крови, и концентрируются эти клетки в структуре, так много значащей для процесса гомеостаза, — в гипоталамусе. Доказательства существования таких рецепторов были получены в эксперименте, в котором гипоталамус подвергли химической обработке, в результате чего его клетки стали невосприимчивыми к глюкозе. Это привело к чрезвычайному обжорству. Возникшее в результате обработки «молчание» рецепторов было расценено мозговыми механизмами как показатель энергетического дефицита, что и привело к необходимости срочно поесть2.
Желудочные рецепторы. Мы выяснили, почему животные начинают есть. Но что заставляет их остановиться? Мозговые рецепторы не могут быть причиной, так как они реагируют на недостаток глюкозы в крови, который не может быть устранен до того, пока пища хотя бы частично не переварится. Однако животные прекращают есть задолго до этого. Почему?
Распространенное мнение, что мы едим, пока не наполним желудок, верно лишь отчасти. Животное перестанет есть, когда его желудок наполнен лишь частично, если пища была калорийной, и оно будет продолжать есть, если желудок наполнен некалорийной массой того же объема. Это означает, что стенки желудка имеют рецепторы, чувствительные к питательным веществам, растворенным в пищевой массе. Эти рецепторы посылают сигнал в мозг о том, что норма питания получена, а следствием является чувство сытости3.
1 См.: Campfield LA., Smith FJ, Transient declines in blood glucose signal meal initiation // International Journal of Obesity. 1990. Vol. 14. P. 15-33.
2 См.: Miselis H.R., Epstein A.N. Feeding induced by 2-deoxy-D-glucose injections into the lateral ventrical of the rat // Physiologist. 1970. Vol. 13. P. 262.
3 См.: Deutsch JA., Puerto A., Wang M.L. The stomach signals satiety // Science. 1978. Vol. 201. P. 165-167.
86
Тема 12. Психология мотивации
Импульсы жировой ткани. Поскольку животное не может быть уверено, что пища будет в наличии в следующий раз, когда понадобится энергия, оно удовлетворяет не только сиюминутную потребность в еде. Оно потребляет пищу в количестве, достаточном как для текущих нужд, так и для создания питательного потенциала на будущее. Для создания запаса животные используют жировые клетки своего организма. Эти клетки усваивают жирные кислоты, выработанные печенью, и за счет этого растут. При необходимости жирные кислоты выделяются из жировой ткани в кровь и перерабатываются в глюкозу.
Хотя жировая ткань рассматривалась обычно как пассивный запас, теперь выяснилось, что жировые клетки также влияют на чувство голода. Они производят вещество, называемое лептином, которое выделяется в кровь и оказывает действие на рецепторы гипоталамуса и областей, прилегающих к кровеносным сосудам мозга1. Некоторые ученые предполагают, что лептин производит сигналы, говорящие о том, что жира в запасе достаточно и нет нужды его пополнять, и это, возможно, уменьшает потребность в пище. Тот факт, что определенные виды мышей, для которых характерно врожденное ожирение, значительно теряют в весе при инъекциях лептина, подтверждает эту гипотезу2. Исследователи предполагают выяснить действие лептина на гипоталамус, а также определить, могут ли лептин и его близкие заменители быть полезными при лечении некоторых видов ожирения у людей.
Сигналы из окружающей среды
Люди и животные питаются, чтобы сохранить гомеостаз; другими словами, они едят, когда организм требует пищи. Но они едят и побуждаемые другими причинами. Например, внешние раздражители, скажем, запах жареного мяса, может быть весьма сильным побудителем к началу еды. Важное значение имеет и время суток: организм более настроен на еду в привычное время. Курица, уже насытившаяся зерном, продолжает клевать его, если кормится рядом с другими курицами, которые еще голодны3.
1 См.: Maffei M., Hallaas J., Ravussin Е. et al. Leptin levels in human and rodent: Measurement of plasma leptin and ob RNA in obese and weight reduced subjects // Nature Medicine. 1995. Vol. 1. P. 1155-1161; McGregor G.P., Desaga J.E., Enlenz K. et al. Radiommunological measurement of leptin in plasma of obese and diabetic human subjects // Endocrinology. 1996. Vol. 137. P. 1501-1504.
2 См.: Pelleymounter MA. Cullen M.J., Baker M.B. et al. Effects of the obese gene product on body weight regulation in ob/ob mice // Science. 1995. Vol. 269. P. 540-543.
3 См.: Bayer E. Beitrage zur Zweitkomponententheorie des Hungers // Zeitschrift der Psychologie. 1929. Bd. 112. S. 1-54.
Глейтман Г., Фридлунд А, РайсбергД. Мотивация 87
Э ффективность внешних стимулов напрямую зависит от внутреннего состояния организма. Если мы только что съели слишком сытный обед или у нас болит живот, даже вкуснейший десерт больше не будет нас волновать. Эти общеизвестные истины могут быть подтверждены и в лаборатории: в серии исследований ученые вживляли обезьянам электроды в гипоталамус и обнаружили группы нейронов, которые возбуждались только тогда, когда обезьяне показывали орех или банан, причем эта реакция наблюдалась только у голодной обезьяны. Если животное сначала кормили досыта, а затем показывали ему пищу, нейроны гипоталамуса оставались невозбужденными. Оказалось, что, по крайней мере для гипоталамуса, глаз значит не больше, чем желудок1.
Тот факт, что привлекательность пищи зависит от степени голода, вновь обращает наше внимание на механизм действия любого мотива — потенцирование определенной реакции. В конце концов, животные никак не могут знать, что конкретно нужно их организму в данный момент; ни они, ни большинство из нас никогда не читали книг по физиологии системы пищеварения. Но, к счастью, природа заложила в их (и в нашу) нервную систему эту информацию таким образом, что конкретные потребности управляют восприятием, делая пищу особенно привлекательной для голодного. То, что самый приятный десерт становится непривлекательным после двух или трех порций, лишний раз демонстрирует движущую силу мотивов, которые влияют на наши чувства не меньше, чем на наши действия.
Центры гипоталамической регуляции
Теперь мы знаем, что существует множество сигналов к принятию пищи; одни из них поступают из печени, другие — из желудка и жировых тканей, и еще одна часть сигналов зависит от уровня питательных веществ в крови. Естественно было бы предположить, что эти разнообразные сигналы интегрируются в некотором центре нервной системы, где принимается окончательное решение — есть или не есть. В течение многих лет главным претендентом на роль такого центра считался гипоталамус, который, как известно, является к тому же регулятором температуры тела и водного баланса. Физиологами была разработана теория двустороннего гипоталамического контроля питания, которая аналогична системе температурного контроля. Она постулирует существование двух центров-антагонистов, один из которых связан с голодом, другой — с насыщением.
1 См,: Mora F., Rolls E.T., Burton M.J. Modulation during learning of the responses of neurons in the lateral hypothalamus to the sight of food // Experimental Neurology. 1976. Vol. 53. P. 508-519.
88
Тема 12. Психология мотивации
Два центра регуляции питания
Согласно теории двустороннего контроля, гипоталамус содержит блоки, «включающие» и «выключающие» процесс приема пищи. Центр «включения» предположительно находится в боковой части гипоталамуса; он действует как центр голода, т.е. его возбуждение приводит к началу приема пищи. Другой центр находится в его вентроме-диальной (центральной) части и включает механизм, прекращающий прием пищи.
Крысы с гиперфагией
400
Э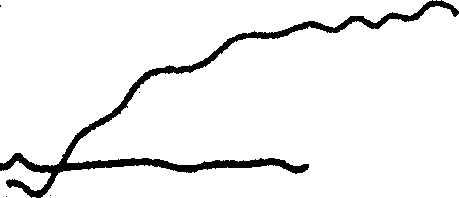 ти
выводы были сделаны на основе данных
о различных нарушениях
головного мозга. Крысы с поврежденной
боковой частью гипоталамуса страдали
от афагии
(от
греч. недоедание). Они отказывались
есть и пить и умерли
бы от голода, если бы их принудительно
не кормили через трубку1.
Примечательно,
что со временем происходило заметное
восстановление функции.
После нескольких недель животные
снова начинали есть, особенно если
им предлагали соблазнительные деликатесы
вроде гоголя-моголя2.
300
Контрольная группа
&
200
20
40
60
0
Дни
Рис. 3. Гиперфагия Кривая показывает набор массы тела у крыс с гиперфагией после операции, нарушающей работу гипоталамуса. Впоследствии масса устанавливается на новом уровне4
Повреждения вентромедиальной части приводили к совершенно противоположному результату. Животные с такими повреждениями страдали гиперфагией (от греч. переедание). Они становились ненасытными и ели бесконечно. Если повреждение было обширным, крысы превращались в настоящие горы жира, достигая массы, в 3 раза превышающей дооперационную. Опухоли в этой части гипоталамуса, хотя и очень редки, приводят к такому же результату у людей3.
Хотя повреждения вентромедиальной части и приводят к быстрому набору массы тела, этот процесс прекращается через месяц или два. После этого масса животного остается постоянной на новом уровне, который намного превышает прежний (рис. 3). Животное ест достаточно для того, чтобы поддерживать эту массу,
1 См.: Teitelbaum P., Stellar Е. Recovery from failure to eat produced by hypothalamic lesions // Science. 1954. Vol. 120. P. 894-895.
2 См.: Teitelbaum P., Epstein A.N. The lateral hypothalamic syndrome: Recovery of feeding and drinking after lateral hypothalamic lesions // Psychological Review. 1962. Vol. 69. P.74-90.
3 См.: Miller N.E., Bailey C.J., Stevenson JA.F. Decreased «hunger» but increased food intake resulting from hypothalamic lesions //Science. 1950. Vol. 112. P. 256-259.
4 См.: Teitelbaum P. Sensory control of hypothalamic hyperphagia // Journal of Comparative and Physiological Psychology. 1955. Vol. 48. P. 156-163.
ГлейтманГ., ФридлундА., РайсбергД. Мотивация 89
н о не больше1. Это означает, что повреждение приводит к сдвигу верхнего уровня в регуляции массы тела — уровня, который служит чем-то вроде ориентира при приеме пищи. Как мы увидим ниже, эта интерпретация может быть применима к некоторым аспектам ожирения у людей.
Новый взгляд на теорию двусторонней регуляции питания
Теория двусторонней регуляции питания поддерживала идею двух управляющих центров на протяжении нескольких десятилетий. Однако последние годы доказали ее несостоятельность, отчасти благодаря нейрохимическим исследованиям, показавшим, что все не так просто, как кажется. К примеру, рассмотрим роль боковой части гипоталамуса в процессе питания. Действительно, некоторые нейрохимические соединения, называемые орексинами, при введении в мозг вызывают желание поесть, и они вырабатываются именно в этой части гипоталамуса2. Однако были открыты еще одни соединения, нейропептиды Y, которые оказались весьма сильными стимуляторами аппетита3, настолько сильными, что инъекция в мозг даже совершенно сытой крысы заставляла ее снова приниматься за еду4. Нейропептиды Y оказывали наибольший эффект в стороне от боковой части гипоталамуса, так что эту часть вряд ли можно назвать «главным центром питания».