Материал: Бактериофаги
21
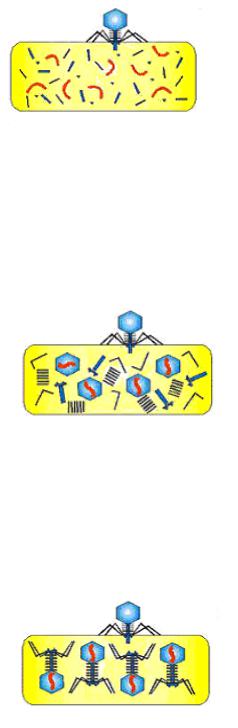
Рисунок 34 - Биосинтез компонентов фага.
Инъецированная нуклеиновая кислота вызывает перестройку метаболизма бактериальной клетки: прекращается синтез бактериальных нуклеиновых кислот и белков. В эту стадию ДНК бактериофага транскрибируется с помощью собственной транскриптазы и образуется иРНК, которая поступает на рибосомы клетки-хозяина, где синтезируются фаговые белки.
4. Сборка структурных компонентов фаговых частиц (рисунок 35).
Рисунок 35 – Сборка структурных компонентов фаговых частиц.
Вновь синтезированные белки в цитоплазме клетки формируют капсиды, отростки и другие структуры дочерних фаговых частиц. После этого синтезированная нуклеиновая кислота фагов заполняет пустотелые капсиды головок.
5. Сборка (морфогенез) зрелых фаговых частиц (рисунок 36).
Рисунок 36 - Сборка зрелых фаговых частиц.
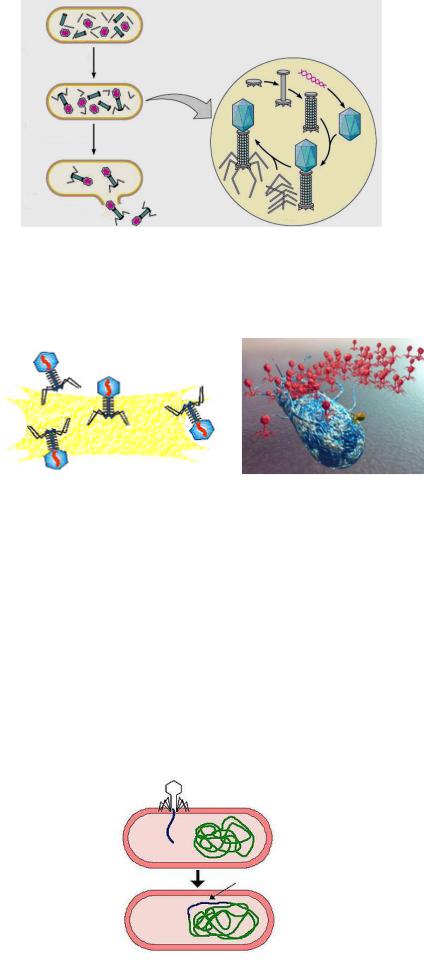
Заполненный нуклеиновой кислотой капсид взаимодействует с хвостовой частью и образует зрелую фаговую частицу. Соединение хвоста с головкой происходит только после полной их сборки. Точно так же ворсинки присоединяются к хвосту только после полного соединения отростка с головкой. Благодаря строгому генетическому контролю со стороны фага обеспечивается последовательность и согласованность всех процессов его внутриклеточного размножения. После сборки в каждой бактериальной клетке накапливается до 200 фаговых частиц (рисунок 37).
22
Рисунок 37 – Сборка фаговых частиц.
6. Выход фаговых частиц из клетки (рисунок 38).
Рисунок 38 - Выход фаговых частиц из клетки.
Вновь образованные фаговые частицы выходят наружу в результате лизиса клеточной оболочки изнутри фаговым лизоцимом. Он синтезируется на последнем этапе размножения фага. Некоторые нитевидные фаги высвобождаются из клетки путем прохождения нуклеиновой кислоты через цитоплазматическую мембрану и клеточную стенку бактерий. Во время такого прохождения фаги приобретают капсиды. Один цикл от момента адсорбции фага на поверхности клетки до выхода потомства из клетки продолжается 30-40 минут. Такие циклы продолжаются до тех пор, пока не будут лизированы все чувствительные к фагу клетки.
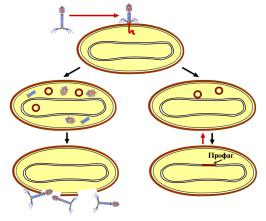
ДНК умеренных фагов после проникновения в цитоплазму встраивается в геном бактериальной клетки. ДНК фага, встроенная в хромосому бактерии, называется профагом, а культура таких бактерий – лизогенной культурой (рисунок 39).
Профаг
Рисунок 39 - Лизогенная культура бактерий.
23
Совместное сосуществование бактерии и умеренного бактериофага называется лизогенией (от греч. lysis - разложение, genea - происхождение). Различают монолизогенность и полилизогенность. Бактериальная культура, образующая после индукции один вид фага, называется монолизогенной, а бактериальная культура, образующая несколько видов фагов, называется полилизогенной.
ДНК умеренного фага встраивается в строго определенную область генома, синхронно с ним реплицируется и передается по наследству. При лизогении фагового потомства не образуется, так как в бактерии синтезируется специфический низкомолекулярный белок репрессор, подавляющий транскрипцию фаговых генов. Биосинтез репрессора детерминируется генами профага. Лизогенные бактерии приобретают иммунитет (невосприимчивость) к последующему проникновению и размножению в них родственного фага.
У некоторых лизогенных культур спонтанно или под действием физических факторов и химических веществ (УФ-лучи, ионизирующее излучение, перекисные соединения, митомицин С и др.) профаг может исключаться из хромосомы и становиться литическим фагом. Этот процесс называется индукцией профага. Он заканчивается продукцией фагов и лизисом бактерий.
Лизогенизация бактерий может приводить к изменению их морфологических, культуральных, ферментативных, антигенных и биологических свойств. При этом профаг может придавать бактерии новые ранее отсутствовавшие у нее свойства. Феномен изменения свойств микробов под влиянием профага называется фаговой конверсии (от лат. conversio - превращение). Например, профаг придает дифтерийной палочке способность продуцировать экзотоксин.
Таким образом, различают следующие типы взаимодействия фагов с бактериями:
-продуктивный тип взаимодействия, при котором в клетке образуется фаговое потомство, обусловливающее лизис бактерий;
-интегративный тип взаимодействия, при котором нуклеиновая кислота фага встраивается в геном бактерии и сосуществует с ним в течение длительного времени.
Схема продуктивного и интегративного типов взаимодействия бактериофага
иклетки представлена на рисунке 40.
Лизис Лизогения
Рисунок 40 - Схема продуктивного и интегративного путей развития фага.
24
Некоторые умеренные фаги могут быть дефектными, то есть неспособными образовывать зрелые фаговые частицы ни в естественных условиях, ни при индукции профага.
Участие бактериофагов в генетическом обмене у бактерий
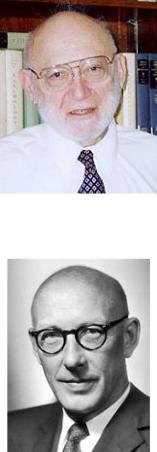
Умеренные фаги, встраиваясь в геном микробной клетки, способны захватывать некоторые бактериальные гены и передавать их новому хозяину. Передача генов от одной бактерии (от бактерии – донора) другой бактерии (бактерии – реципиенту) с помощью умеренного фага называется трансдукцией. Различают три типа трансдукции: неспецифическую (общую, генерализованную), специфическую (локализованную) и абортивную. Впервые неспецифическую трансдукцию описали Д. Ледерберг (рисунок 41) и Э. Тейтем (рисунок 42).
Рисунок 41 - Джошуа Ледерберг (1925-2008 гг.).
Рисунок 42 - Эдвард Тейтем (1909-1975 гг.).
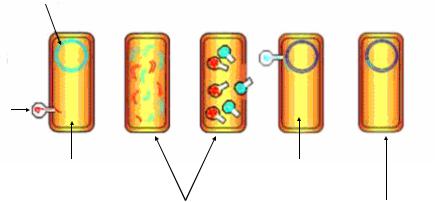
Механизм неспецифической трансдукции заключается в том, что в процессе внутриклеточного размножения фага в его геном случайно включается какой-либо фрагмент бактериальной ДНК. В результате этого возникают фаговые частицы, у которых наряду с собственной фаговой ДНК содержится фрагмент ДНК бактерии. Эти фаги сохраняют инфекционную способность и при адсорбции на бактериальной клетке вводят в нее ДНК клетки донора. В случае встраивания привнесенного
25
фрагмента ДНК в гомологичную область генома клетки-реципиента этот признак будет наследственно закрепляться (рисунок 43).
Бактериальная хромосома
Фаг
Проникновение |
Взаимодействие |
|
фага в клетку-донор |
с клеткой-реципиентом |
|
Образование |
|
Образование |
трансдуцирующего фага |
трансдуктанта |
|
Рисунок 43 – Схема трансдукции.
Введенная ДНК клетки-донора наделяет клетку-реципиент (трансдуктант) новыми признаками.
При специфической трансдукции фаги переносят только определенные гены клетки-донора. Это связано с тем, что при специфической трансдукции образование трансдуцирующего фага происходит в результате соединения его ДНК со строго определенными генами донора. При освобождении такой фаг захватывает только рядом расположенную строго определенную область хромосомы донора и передает ее реципиенту. В последующем наблюдается интеграция умеренного фага в определенный участок генома реципиента. При этом происходит не только лизогенизация, но и появление у реципиента нового признака (лизогенная конверсия). Например, умеренный фаг способен вызывать лизогенную конверсию дифтерийной палочки, превращая нетоксигенную культуру в токсигенную.
В некоторых случаях переносимый фрагмент ДНК не встраивается в геном реципиента, а сохраняется автономно в цитоплазме клетки. Это явление называется абортивной трансдукцией. При делении бактерий фаговая ДНК передается только одной из двух дочерних клеток.
При трансдукции возможен перенос генов, которые детерминируют питательные потребности бактерий, устойчивость клеток к лекарственным препаратам, ферментативную активность, подвижность, факторы патогенности и другие свойства.
Практическое применение бактериофагов
Способность бактериофагов лизировать клетки определенных видов бактерий позволяет использовать их для диагностики, профилактики и лечения инфекционных заболеваний. Бактериофаги применяют для установления источника инфекции, путей передачи возбудителя, для выявления определенных видов бактерий во внешней среде, при проведении генно-инженерных исследований.