Материал: Бактериофаги
16
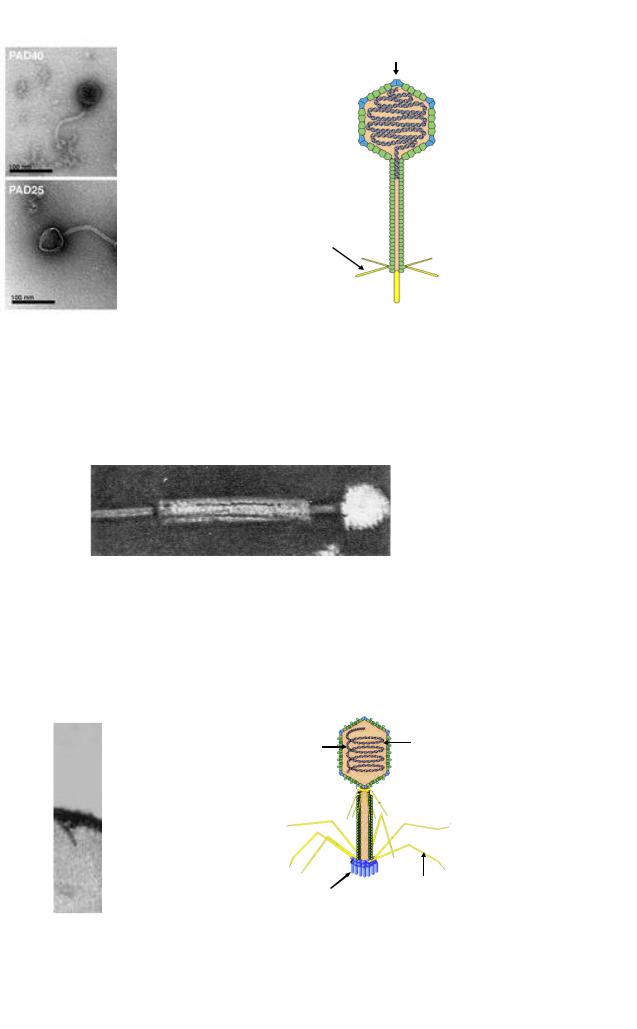
К пятому морфологическому типу относятся бактериофаги семейства
Siphoviridae (рисунок 26).
Головка
ДНК 
 Хвост
Фибриллы
Рисунок 26 – Электронная микрофотография и схема строения фагов семейства Siphoviridae.
Шестой морфологический тип объединяет бактериофаги, состоящие из головки и отростка, окруженного чехлом. Особенностью бактериофагов этого типа является то, что чехол, окружающий отросток, способен сокращаться (рисунок 27).
Рисунок 27 - Бактериофаги шестого морфологического типа. Электронная микроскопия.
Представителями шестого морфологического типа являются бактериофаги, относящиеся к семейству Myoviridae (рисунок 28).
ДНК |
Головка |
|
Хвост 
Фибриллы
Шипы
Рисунок 28 – Электронная микрофотография и схема строения фагов семейства Myoviridae.
17
Типичная фаговая частица состоит из головки и хвостового отростка. Длина хвостового отростка обычно в 2-4 раза больше диаметра головки. Размеры бактериофагов колеблются от 2 до 200 нм. Чем крупнее бактериофаги, тем больше у них генов и сложнее их жизненный цикл. Большинство бактериофагов напоминают сперматозоиды (головастики, барабанные палочки), то есть относятся к шестому морфологическому типу.
Головка фага имеет округлую или овальную форму диаметром 60-95 нм. Внутри головки содержится геном бактериофага, представленный нуклеиновой кислотой. Нуклеиновые кислоты бактериофагов могут быть однонитевыми, двунитевыми, линейными, кольцевыми. У большинства фагов геном образует спирально упакованная двойная нить ДНК. У некоторых фагов в головке находится белок, обеспечивающий суперспирализацию молекулы ДНК. В таком виде ДНК может упаковываться в сравнительно небольшом объёме головки. Нуклеиновая кислота бактериофага окружена белковой оболочкой - капсидом. Капсид состоит из белковых молекул (капсомеров), организованных по принципу кубической симметрии. Нуклеиновая кислота и капсид вместе составляют нуклеокапсид.
Хвостовой отросток бактериофагов организован по принципу спиральной симметрии. Отросток имеет длину до 250 нм и толщину 10-25 нм. Он состоит из
полого стержня и сократительного чехла, который присоединяется к
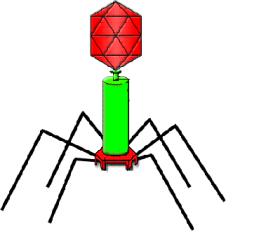
воротничку, окружающему стержень около головки. Белковый стержень является продолжением белковой оболочки головки. Стержень заканчивается шестиугольной базальной пластинкой с шестью шипами (зубцами). От каждого зубца отходит по одной нити (фибриллы) длиной 150 нм. У Т-чётных фагов концы фибрилл опущены вниз, а у нечётных фагов концы нитей загнуты вверх. Базальная пластинка и нити обусловливают адсорбцию бактериофага на бактериальной клетке. У некоторых бактериофагов в дистальной части хвостового отростка содержится лизоцим (эндолизин), облегчающий проникновение нуклеиновой кислоты бактериофага в бактериальную клетку. Строение бактериофага представлено на рисунке 29.
 Головка
 Воротничок
 Стержень
 Сократительный чехол
 Базальная пластинка
 Шипы
 Фибриллы
Рисунок 29 - Строение типичного бактериофага.
Сократительный чехол состоит из спирально свернутого белкового тяжа, обладающего способностью сокращаться. Эта способность к сокращению имеет большое значение при внедрении нуклеиновой кислоты бактериофага в бактериальную клетку. При адсорбции бактериофага на клеточной стенке бактерии
18
чехол сокращается, стержень проникает внутрь клетки и по нему нуклеиновая кислота впрыскивается в клетку.
Фаговая частица содержит 40-50% нуклеиновой кислоты (РНК или ДНК), 5060% белка, до 12-17% углеводов, 2% липидов.
Бактериофаг является строгим внутриклеточным паразитом, так как он размножается только внутри бактериальной клетки. Он не культивируется на искусственных питательных средах и в живых биологических системах (культуры клеток, куриные эмбрионы, лабораторные животные).
Основным признаком бактериофагов является специфичность. Специфичность бактериофагов выражается в том, что каждый бактериофаг способен лизировать только определенный вид бактерий.
Бактериофаги обладают выраженными антигенными свойствами. При парентеральном введении бактериофага в организме образуются антитела, нейтрализующие литическую (растворяющую) активность фага. При этом действие антифаговых сывороток строго специфично. Кроме того фаги по антигенным свойствам отличаются друг от друга. У некоторых родственных фагов обнаруживаются групповые антигены. По антигенным свойствам фаги подразделяют на серологические группы. Для получения антифаговых сывороток используют кроликов, которых иммунизируют подкожно дважды в течение 3 недель. Сыворотку освобождают от форменных элементов центрифугированием.
Резистентность фагов
По сравнению с вирусами человека и животных бактериофаги более устойчивы к действию физических и химических факторов. Бактериофаги хорошо переносят высушивание и замораживание, длительно сохраняются при низких температурах (минус 195°С), сохраняют активность в широком диапазоне рН (2,5- 8,5). Большинство бактериофагов инактивируется при температуре выше 65-70°С. Ультрафиолетовое и ионизирующее излучения снижают адсорбционную способность фага и его патогенность.
Сулема (0,5% раствор), фенол (1-2% раствор), спирт, эфир и хлороформ не оказывают на фаги инактивирующего действия. Губительно действует на бактериофаги 1% раствор формалина. Фаги быстро погибают при кипячении, действии кислот, ультрафиолетовых лучей, химических дезинфицирующих веществ. Некоторые вещества (например, хлороформ) не оказывают влияния на фаги, но вызывают гибель бактерий. Такие вещества используют для сохранения бактериофагов и предотвращения их контаминации микроорганизмами.
Взаимодействие фага с бактериальной клеткой
После проникновения фага в бактериальную клетку возможно два пути их развития: литический и лизогенный. В связи с этим по характеру взаимодействия с бактериальной клеткой различают вирулентные и умеренные фаги. Вирулентные фаги проникают в бактериальную клетку, репродуцируются в ней и вызывают ее
19
лизис (литический цикл). Умеренные фаги, проникнув в бактериальную клетку, встраивают свою ДНК в геном бактерии и в виде профага передаются по наследству от клетки к клетке, не вызывая лизиса бактерий (лизогенный цикл). Жизненный цикл вирулентного фага складывается из следующих стадий.
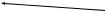
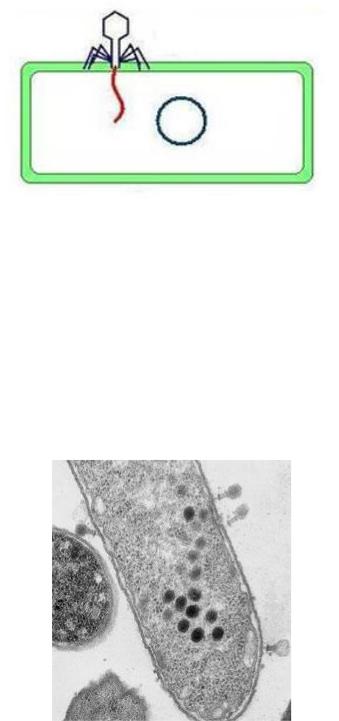
1. Адсорбция бактериофага на клеточной стенке бактерий (рисунок 30).
Рисунок 30 - Адсорбция бактериофага на клеточной стенке бактерии.
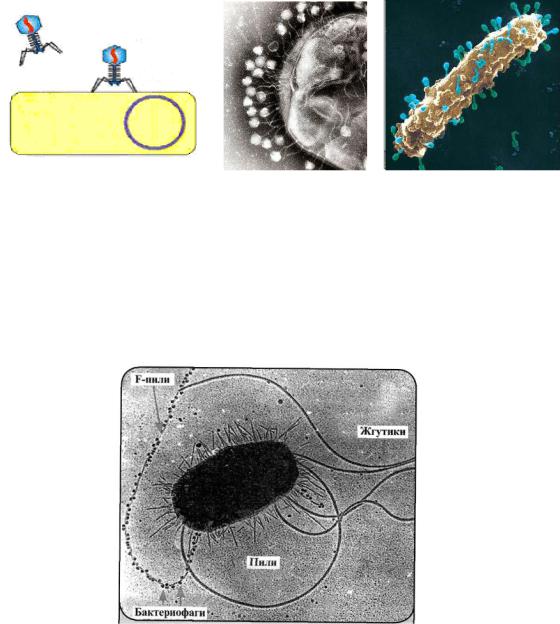
В процессе адсорбции фаги прикрепляются своими жгутиками (фибриллами), шипами или специфическими белками к фагоспецифическим рецепторам на клеточной стенке бактерий. На бактериях без клеточной оболочки (протопластах, L-формах) фаги не адсорбируются. Некоторые мелкие фаги в качестве рецепторов используют F-пили бактерий (рисунок 31).
Рисунок 31 – Электронная фотография кишечной палочки, на F-пилях которой адсорбированы бактериофаги.
Адсорбция фага зависит от рН среды, температуры, наличия в среде катионов. Например, в дистиллированной воде адсорбция фага не происходит; наличие двухвалентных катионов кальция и магния стимулирует процесс адсорбции. На одной бактериальной клетке может адсорбироваться до 200-300 частиц фага.
Различают обратимую и необратимую фазы абсорбции. Обратимая фаза характеризуется тем, что частицы фага после адсорбции возможно отделить от
20
клетки путем энергичного встряхивания. Во время необратимой фазы адсорбции частицы фага не могут быть отделены от бактериальной клетки.
2. Проникновение нуклеиновой кислоты фага (инъекция, пенетрация)
внутрь бактериальной клетки (рисунок 32).
Рисунок 32 - Введение ДНК фага в бактериальную клетку.
После адсорбции происходит ферментативное расщепление клеточной стенки лизоцимом, находящимся в дистальной части фагового отростка. Одновременно в сократительном чехле бактериофага высвобождаются ионы кальция, которые активируют АТФазу. В результате этого происходит сокращение чехла и вталкивание стержня хвостового отростка через цитоплазматическую мембрану внутрь клетки. По каналу стержня ДНК фага впрыскивается в цитоплазму бактериальной клетки. Поскольку диаметр стержневого канала незначительно превышает диаметр молекулы ДНК (около 20 нм), то ДНК попадает в цитоплазму в линейной форме. При этом капсид и отросток остаются вне клетки (рисунок 33).
Рисунок 33 - Пустые фаговые капсиды и отростки на поверхности клетки.
Около 10% фаговой ДНК активно впрыскивается внутрь клетки во время сокращения чехла, а остальная часть ДНК втягивается в цитоплазму бактерии благодаря процессам транскрипции и трансляции.
При адсорбции фагов на половых ворсинках проникновение нуклеиновой кислоты происходит по каналу F-пили.
3. Биосинтез компонентов фага внутри бактериальной клетки (рисунок 34).