Материал: життєві цикли паразитів
Схема 4, де:
En A – ендогенна агломерація (розмноження в господарі);
Х – господар (єдиний або остаточний);
Y – проміжний господар.
Такі життєві цикли зустрічаються серед паразитичних найпростіших, „проміжним” господарем яких можуть бути кровосисні членистоногі, в яких, так само, як і в «остаточних» господарях–хребетних відбувається нестатеве розмноження шляхом поділу, а статевий процес взагалі невідомий (трипаносоми, піроплазми тощо).
Д. Дворазова зміна господарів без ендогенної агломерації
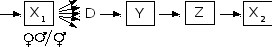
Схема 5, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
Z –другий проміжний господар.
Прикладом такого триксенного життєвого циклу є розвиток цестод-стьожаків, спірометр, у яких послідовно чергуються два проміжні господарі. Тільки в другому проміжному господарі розвивається друга личинкова стадія, здатна заражати остаточного господаря і яка є для нього інвазійною.
Розглянутим вище типам розвитку притаманний розвиток статевозрілих стадій і статеве розмноження в господарі, який визначається як остаточний (дефінітивний). Таким господарем можуть бути як безхребетні, так і хребетні тварини. Дисперсія стадій розселення (пропагативних стадій) у багатьох паразитів може супроводжуватися їх більш або менш значним розвитком у цисті чи яйці, або безпосередньо у зовнішньому середовищі.
Натомість життєві цикли ларвальних паразитів, у яких саме личинкові, нестатевозрілі, стадії розвиваються в господарі (зазвичай одному), якого у цьому разі можна прирівняти до проміжного, мають своєрідний характер. З огляду на те, що у такому господарі не відбувається нестатевого розмноження, цей цикл певною мірою близький до розглянутого вище типу А (без зміни господаря та ендогенної агломерації). Його можна побачити в схемі 6.
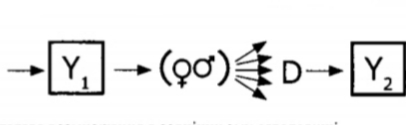
Схема 6, де:
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
(♀♂) – статеве розмноження в зовнішньому середовищі.
Рідше у ларвальних паразитів відбувається розмноження у господарі, наприклад, поліембріонія у їздців та, відповідно, наявна ендогенна агломерація. Це можна розглядати як варіант типу Б і зобразити на схемі 7 [3,4].
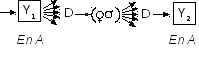
Схема 7, де:
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
(♀♂) – статеве розмноження в зовнішньому середовищі.
En A – ендогенна агломерація (розмноження в господарі);
2.2 Життєві цикли з чергуванням поколінь
В життєвих циклах розглянутих нижче типів чергуються покоління, що суттєво відрізняються одне від одного. Це може бути відмінність за способом розмноження: статеве і нестатеве (вегетативне чи поділ клітин у найпростіших), звичайне статеве та партеногенез тощо. Можуть також чергуватися вільно існуючі та паразитичні покоління. У цій групі, подібно до першої, також розрізняють кілька типів.
А. Без зміни господаря та ендогенної агломерації
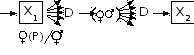
Схема 8, де:
♀ (P) - розмноження партеногенетичних самок;
– статеве розмноження роздільностатевих або гермафродитних особин;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний).
Такий спосіб розмноження властивий, напр. нематодам-рабдиазидам та стронгілоїдам, в яких паразитують партеногенетичні самки або, як у деяких ентомопатогенних нематод, паразитичне покоління складають гермафродитні особини.
Б. Без зміни господарів з ендогенною агломерацією
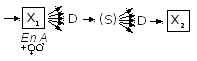
Схема 9, де:
S – спорогонія.
– статеве розмноження роздільностатевих або гермафродитних особин;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
En A – ендогенна агломерація (розмноження в господарі).
Цикл розвитку такого типу характерний, наприклад, для більшості кокцидій, у яких в клітинах певних тканин господаря відбувається багаторазове нестатеве розмноження, зокрема шизогонія (En A), що змінюється статевим розмноженням покоління гамет з утворенням зигот (знаки самця и самки), а наступне покоління проходить спорогонію у зовнішньому середовищі (S).
В. З одноразовою зміною господаря (диксенні цикли) та ендогенною агломерацією
Розрізняють кілька варіантів таких життєвих циклів, найбільш поширеними є наступні:
В1 – чергування двох поколінь, що розмножуються: статевозрілого (статеве розмноження) та личинкового (нестатеве розмноження).(Схема 10)
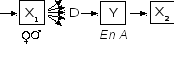
Схема 10, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
En A – ендогенна агломерація (розмноження в господарі).
Прикладом такого типу можуть слугувати цестоди, личинки яких розмножуються у проміжному господарі поділом або брунькуванням (ехінококи та альвеококи, мультіцепси та деякі інші).
В2 – чергування кількох поколінь, що розмножуються, одне з яких статевозріле, особини, що розвиваються і розмножуються у певному господарі та кілька партеногенетичних поколінь, які, послідовно змінюючи одне одного, розвиваються і розмножуються в іншому господарі (одній і тій самій особині). (Схема 11)
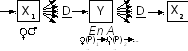
Схема 11, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
♀ (P) - розмноження партеногенетичних самок;
En A – ендогенна агломерація (розмноження в господарі).
Такий тип життєвого циклу притаманний багатьом трематодам, які не мають справжнього („другого”) проміжного господаря.
Г. З дворазовою зміною господарів та ендогенною агломерацією
У паразитів, що мають життєві цикли такого типу також розрізняють два варіанти.
Г1 – чергуються два покоління, одним з яких є статевозрілі особини, які розмножуються статевим шляхом у дефінітивному господарі, і ларвальне покоління, здатне розмножуватися нестатево (поділом чи брунькуванням) у другому проміжному господарі. (Схема 12)
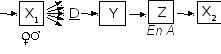
Схема 12, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
Z –другий проміжний господар.
En A – ендогенна агломерація (розмноження в господарі).
Такий життєвий цикл притаманний деяким цестодам (спірометри, мезоцеркоїди).
Г2 – у паразитів з таким циклом розвитку (переважна більшість трематод), статеве покоління розмножується звичайним статевим шляхом у дефінітивному господарі. Наступні пертеногенетичні покоління розмножуються у певних видах молюсків, які умовно вважаються першими проміжними господарямияями, а личинки статевого покоління паразитують у «другому» (справжньому) проміжному господарі.(схема 13) [] .
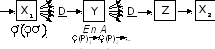
Схема 13, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
Z –другий проміжний господар;
En A – ендогенна агломерація (розмноження в господарі).
Відомо ще два унікальних типи розвитку, коли одна й та сама особина господаря виконує послідовно ролі проміжного та остаточного господаря, після чого паразитам необхідно потрапити до наступного такого господаря. Чергування поколінь у таких циклах також немає, проте може відбуватися зміна батьківського покоління нащадками, наступною генерацією, яка якісно не відрізняється від попередньої [3,4].
2.3 Життєві цикли з послідовною зміною ролі господаря
А. Цикл розвитку цестоди Rodentolepis nana, паразита людини. В кишечнику людини з яєць цієї цестоди виходять личинки – онкосфери, які проникають в кишкові ворсинки. У ворсинках розвиваються наступні личинки – цистцеркоїди (у інших родентолепісів цей етап життєвого циклу відбувається в проміжних господарях – жуках). Під тиском досить великої личинки ворсинка відмирає, відпадає і перетравлюється в порожнині кишки. Цистцеркоїди звільняються, прикріплюються до стінки тонкої кишки і виростають у дорослі стробілярні цестоди, що продукують яйця, які виносяться назовні. Можливе і самозараження (аутореінвазія). (Схема 14)
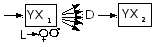
Схема 14, де:
L - личинки;
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
D – дисперсія (розсіювання стадій розселення);
Х – господар (єдиний або остаточний);
Б. У трихінел, яких відомо кілька видів, зокрема, Trichinella spiralis, до кишечника господаря потрапляють личинки, з яких розвиваються статевозрілі самці і самки. Самки після запліднення відкладають живих личинок. Останні проникають в кровоносні судини стінки кишечника, з кров’ю розносяться по всьому організму, в капілярах м’язів виходять з кровоносного русла і проникають у м’язові волокна. Тут вони інцистуються і розвиваються до інвазійної стадії. Якщо такий господар (жертва) буде з’їдений іншою твариною (хижаком), життєвий цикл трихінели повториться. В цьому випадку відбувається ендогенна агломерація. Графічно це зображено на схемі 15 [3,4].
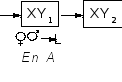
Схема 15, де:
– статеве розмноження роздільностатевих або гермафродитних особин;
Y – проміжний господар;
Х – господар (єдиний або остаточний);
En A – ендогенна агломерація (розмноження в господарі).
2.4. Узгодження життєвих циклів паразита і господаря
Слід коротко зупинитися на узгодженості життєвих циклів паразитів та їхніх господарів, які у багатьох випадках збігаються у часі. Особливо це стосується господарів, які мають річний життєвий цикл, і прикладом цього можуть слугувати деякі паразити жаб.
Звичайні паразити жаб, найпростіші опаліни, тривалий час розмножуються у кишечнику господаря нестатево, поділом на дві дочірні особини. Весною, в період розмноження жаб значна частина особин паразита, після кількох циклів палінтомії, перетворюється на дрібні форми, які інцистуються і разом з неперетравленими рештками їжі господаря потрапляють у воду (жаби в цей час перебувають у водоймах). Ці цисти ковтають молоді пуголовки, у кишечнику яких опаліни вивільнюються і відбувається гаметогенез, копуляція гамет з утворенням зигот. Зиготи знову інцистуються, потрапляють у воду і їх ковтають пуголовки старшого віку, які на цей час вже проходять метаморфоз. У кишечнику молодих жаб, які незабаром виходять на суходіл, опаліни розмножуються поділом аж до наступної весни, коли цикл розвитку повторюється [1,6].
Подібним є життєвий цикл моногеней жаб та інших амфібій з роду Polystoma. У дорослих господарів ці паразити живуть у сечовому міхурі. Їхні статеві залози майже цілий рік є неактивними і лише весною починають швидко розвиватися. Яйця дозрівають саме тоді, коли амфібії збираються у водоймах для відкладання ікри, тож яйця полістом також потрапляють у воду і осідають на дно. Відбувається досить тривалий ембріональний розвиток і личинки виходять з яєць саме тоді, коли пуголовки вже вийшли з ікринок. Личинки полістом оселяються на зябрах пуголовків, дуже швидко розвиваються і продукують яйця, з яких також досить скоро виходять личинки. Личинки другого покоління ще встигають оселитися на зябрах пуголовків, однак невдовзі зябра деградують, молоді полістоми по шкірі молодих амфібій переходять до клоаки і через сечовивідний канал проникають у сечовий міхур. Тут вони повільно ростуть і розвиваються аж до наступної весни. Далі розмноження полістом повторюється кожної весни стільки років, скільки живуть і розмножуються їхні господарі.
У багатьох цестод риб активне продукування яєць також збігається з розмноженням (відкладанням ікри) їхніх господарів. Багато гельмінтів наземних тварин у помірних кліматичних зонах в зимовий період припиняють продукування яєць [4].