Реферат: Метод клонального микроразмножения в декоративном растениеводстве
Соматический эмбриогенез заключается в том, что из соматических клеток растения (из каллусных клеток), на определенной питательной среде могут формироваться зародышеподобные структуры - эмбриоиды. Последовательно проходя определённые стадии развития, соматический эмбриоид может превратиться в проросток, то есть в полностью сформированное растение. Это позволяет исключить этап ускорения, что облегчает и ускоряет процесс клонирования.
Наиболее впечатляющим применением метода соматического эмбриогенеза стало размножение гвинейской масличной пальмы (Elaeis guineensis), масло которой широко используется при производстве маргарина и пищевого масла. Масличная пальма в природе не образует побегов и боковых ростков, что затрудняет ее вегетативное размножение. Культивирование черенков in vitro также невозможно. Было решено получить скопления клеток недифференцированной ткани (каллусы) путем дедифференцировки специфических тканей, а затем культивировать их до регенерации целых проростков. В первой культуральной среде каллусы из фрагментов листьев развивались в течение 90 дней, при переносе во вторую и третью культуральные среды превращались в "эмбриоиды". Эмбриоиды размножались самопроизвольно, в течение месяца число эмбриоидов возрастало втрое, а за год из 10 эмбрионов можно было получить потомство численностью 500000 растений.
Основное отличие образования зародышей in vitro и in vivo (в естественных условиях) заключается в том, что соматические зародыши развиваются асексуально вне зародышевого мешка и по своему внешнему виду напоминают биполярные структуры, у которых одновременно наблюдается развитие апикальных меристем стебля и корня. Согласно Стеварду, соматические зародыши проходят три стадии развития: глобулярную, сердцевидную, торпедо-видную и в конечном счете имеют тенденцию к развитию в проросток. Это явление впервые было отмечено в культуре клеток моркови еще в середине 50-х гг., а в настоящее время используется для размножения большинства растений из семейства Orchidaceae и Rutaceae, а также для некоторых представителей злаковых (пшеница, ячмень), люцерны, редиса, винограда и некоторых видов древесных пород (осина, эвкалипт, дуб, ель обыкновенная) [7].
Формирование эмбриоидов в культуре тканей происходит в два этапа. На первом этапе клетки экспланта дифференцируются за счет добавления в питательную среду ауксинов, как правило, 2,4-дихлорфеноксиуксусной кислоты (2,4-Д) и превращаются в эмбриональные. Для формирования эмбриоидов необходимо уменьшать концентрацию ауксина или полностью его исключать из состава питательной среды.
Соматический эмбриогенез возможно наблюдать непосредственно в тканях первичного экспланта, а также в каллусной культуре. Причем последний способ менее пригоден при клональном микроразмножении, так как посадочный материал, полученный таким методом, будет генетически нестабилен по отношению к растению-донору. Как правило, соматический эмбриогенез происходит при культивировании каллусных клеток в жидкой питательной среде (суспензии) и является наиболее трудоемкой операцией.
Однако этот метод размножения имеет свои преимущества, связанные с сокращением последнего (третьего) этапа клонального микроразмножения, не требующего подбора специальных условий укоренения и адаптации пробирочных растений, потому что соматические зародыши представляют собой полностью сформированные растеньица. При использовании соответствующей техники их капсулирования из этих эмбриоидов возможно получать искусственные семена.
Четвертый метод клонального микроразмножения - дифференциация адвентивных почек в первичной и пересадочной каллусной ткани Каллус - неорганизованная, пролиферирующая масса дифференцированных растительных клеток. Каллусная клетка (из которой получается каллусная ткань или каллус) - один из типов клеток присущих высшему растению. Такая ткань возникает в чрезвычайных обстоятельствах (при травмах) и функционирует непродолжительное время.
По мере размножения каллусных клеток происходит их дифференциация, которая зависит от ростовых веществ, добавляемых в питательные среды. Дедифференциация - переход специализированных, неделящихся клеток к пролиферации.
Практически он мало используется с целью получения посадочного материала in vitro. Это связано с тем, что при периодическом пересаживании каллусной ткани на свежую питательную среду часто наблюдаются явления, нежелательные при микроразмножении: изменение плоидности культивируемых клеток, структурные перестройки хромосом и накопление генных мутаций, потеря морфогенетического потенциала культивируемыми клетками. Наряду с генетическими изменениями отмечаются и морфологические: низкорослость, неправильное жилкование листьев, образование укороченных междоузлий, пониженная устойчивость к болезням и вредителям.
Однако, несмотря на некоторые недостатки, данный метод имеет свои положительные стороны и преимущества.
Во-первых, он является эффективным и экономически выгодным, так как в процессе размножения из каждой индивидуальной каллусной клетки при определенных благоприятных условиях культивирования может сформироваться адвентивная почка, дающая начало новому растению. Во-вторых, в ряде случаев он является единственно возможным способом размножения растений в культуре тканей. В-третьих, представляет большой интерес для селекционеров, так как растения, полученные данным методом, отличаются генетически и морфологически друг от друга. Это дает возможность селекционерам проводить отбор растений по хозяйственно важным признакам и оценивать их поведение в полевых условиях.
Этот метод целесообразно применять лишь к тем растениям, для которых показана генетическая стабильность каллусной ткани, а вариабельность между растениями-регенерантами не превышает уровня естественной изменчивости.
К таким растениям можно отнести амариллис,
эписции, драцены, томаты, спаржу, некоторые древесные породы и другие культуры.
Кроме
того, в некоторых случаях он является единственно возможным способом
размножения растений в культуре тканей. Через каллусную культуру успешно
размножаются сахарная свекла, злаковые, представители рода , кукуруза, рис,
пшеница и другие злаковые, подсолнечник и другие культуры. Разработаны условия,
способствующие регенерации растений из каллуса огурца, картофеля, томатов.
Этапы клонального микроразмножения
Процесс клонального микроразмножения можно разделить на четыре этапа:
. выбор растения-донора, изолирование эксплантов и получение хорошо растущей стерильной культуры;
. собственно микроразмножение, когда достигается получение максимального количества меристематических клонов;
. укоренение размноженных побегов с последующей адаптацией их к почвенным условиям, а при необходимости депонирование растений-регенерантов при пониженной температуре (+ 2°, + 10 °C);
. выращивание растений в условиях теплицы и
подготовка их к реализации или посадке в поле.
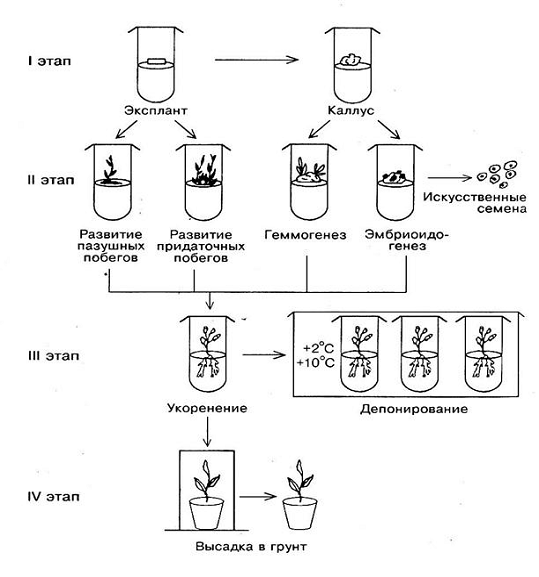
Рисунок 2: Схема клонального микроразмножения
растений: I путь -активация развития существующих меристем; II путь - индукция
возникновения адвентивных почек; 1 - выбор исходного экспланта; 2 - получение
стерильной культуры; 3 - образование адвентивных почек на первичном экспланте;
4 - рост почек и формирование микропобегов; 5 - размножение микропобегов; 6 -
укоренение микропобегов; 7 - депонирование растений-регенерантов; 8 -
акклиматизация растений к грунту; 9 - высадка регенерантов в поле
Для культивирования тканей на каждом из четырех этапов требуется применение определенного состава питательной среды.
На первом этапе необходимо правильно выбрать растение-донор, получить свободную от инфекции культуру, добиться её выживания и быстрого роста на питательной среде. Это достигается путем получения хорошо растущей стерильной культуры, в которой на эксплантах (кусочках листа) формируется большое количество почек.
В тех случаях, когда трудно получить исходную стерильную культуру экспланта, рекомендуется вводить в состав питательной среды антибиотики (тетрациклин, бензилпенициллин и др.) в концентрации 100-200 мг/л. Это в первую очередь относится к древесным растениям, у которых наблюдается тенденция к накоплению внутренней инфекции.
На первом этапе, как правило, используют среду, содержащую минеральные соли по рецепту Мурасига и Скуга, а также различные биологически активные вещества и стимуляторы роста (ауксины, цитокинины) в различных сочетаниях в зависимости от объекта. В тех случаях, когда наблюдается ингибирование роста первичного экспланта, за счет выделения им в питательную среду токсичных веществ (фенолов, терпенов и других вторичных соединений), снять его можно, используя антиоксиданты. Это возможно двумя способами: либо омывкой экспланта слабым его раствором в течение 4-24 ч, либо непосредственным добавлением в питательную среду. В качестве антиоксидантов используют: аскорбиновую кислоту (1 мг/л), глютатион (4-5 мг/л), дитиотриэтол (1-3 мг/л), диэтилдитиокарбомат (2-5 мг/л), поливинилпирролидон (5000-10000 мг/л). В некоторых случаях целесообразно добавлять в питательную среду адсорбент - древесный активированный уголь в концентрации 0,5-1%. Продолжительность первого этапа может колебаться от 1 до 2 месяцев, в результате которого наблюдается рост меристематических тканей и формирование первичных побегов.
этап - собственно микроразмножение. На этом этапе необходимо добиться получения максимального количества мериклонов, учитывая при этом, что с увеличением субкультивирований увеличивается число растений-регенерантов с ненормальной морфологией и возможно наблюдать образование растений-мутантов. При размножении полученной культуры, почки отделяют от экспланта и рассаживают на новую питательную среду, где побег укореняется и растет.
Как и на первом этапе, используют питательную среду по рецепту Мурасига и Скуга, содержащую различные биологически активные вещества, а также регуляторы роста. Основную роль при подборе оптимальных условий культивирования эксплантов играют соотношение и концентрация внесенных в питательную среду цитокининов и ауксинов. Из цитокининов наиболее часто используют БАП в концентрациях от 1 до 10 мг/л, а из ауксинов-ИУК и НУК в концентрациях до 0,5 мг/л.
При долгом культивировании растительных тканей на питательных средах с повышенным содержанием цитокининов (5-10 мг/л) происходит постепенное накопление их в тканях выше необходимого физиологического уровня, что приводит к появлению токсического действия и формированию растений с измененной морфологией. Вместе с тем, возможно наблюдать такие нежелательные для клонального микроразмножения эффекты, как подавление пролиферации пазушных меристем, образование витрифицированных (оводненных) побегов и уменьшение способности растений к укоренению. Отрицательное действие цитокининов возможно преодолеть, по данным Н.В. Катаевой и Р.Г. Бутенко, путем использования питательных сред с минимальной концентрацией цитокининов, обеспечивающих стабильный коэффициент микроразмножения, или путем чередования циклов культивирования на средах с низким и высоким уровнем фитогормонов.
и 4 этапы - укоренение микропобегов, их последующая адаптация к почвенным условиям и высадка в поле являются наиболее трудоемкими этапами, от которых зависит успех клонального микроразмножения. На третьем этапе, как правило, меняют основной состав среды: уменьшают в два, а иногда и в четыре раза концентрацию минеральных солей по рецепту Мурасига и Скуга или заменяют ее средой Уайта, уменьшают количество сахара до 0,5-1% и полностью исключают цитокинины, оставляя один лишь ауксин. В качестве стимулятора корнеобразования используют β-индолил-3-масляную кислоту (ИМК), ИУК или НУК.
Укоренение микропобегов проводят двумя способами:
) выдерживание микропобегов в течение нескольких часов (2-24 ч) в стерильном концентрированном растворе ауксина (20-50 мг/л) и последующее их культивирование на агаризованной среде без гормонов или непосредственно в подходящем почвенном субстрате (импульсная обработка);
) непосредственное культивирование микропобегов
в течение 3-4 недель на питательной среде, содержащей ауксин в невысоких
концентрациях (1-5 мг/л в зависимости от исследуемого объекта). В последнее
время предложен метод укоренения пробирочных растений в условиях гидропоники.
Этот метод позволяет значительно упростить этап укоренения и одновременно
получать растения, адаптированные к естественным условиям. Для картофеля
возможно использовать безсубстратную гидропонику для получения мини-клубней.
Затенение нижней части культуральных сосудов плотной черной материей или
добавление в питательную среду активированного угля способствует укоренению
микропобегов.
. Выбор питательной среды и ее основные
компоненты
Успех в культивировании объектов зависит от правильного выбора питательной среды и тщательности ее приготовления. В состав питательных сред входят макро- и микроэлементы (N, P, K, Ca, S, Mg, Fe, B, Zn, Cu, Co, Mn, J, Mo); витамины В1, В6, В12, РР и другие; углеводы (сахароза, глюкоза, маннит); фитогормоны (чаще всего цитокинины и ауксины в определенном соотношении). Ауксины вызывают клеточную дедифференцировку, цитокинины индуцируют деление дедифференцированных клеток и необходимы для получения каллусных тканей.
На средах без гормонов растут “привыкшие” и опухолевые ткани. Для получения стеблевого морфогенеза снижают содержание ауксинов. Из ауксинов чаще всего применяют 2,4-дихлорфеноксиуксусную кислоту (2,4-Д) - 0.1-10 мг/л, нафтилуксусную кислоту (НУК) - 0.1-2 мг/л, ИУК - 1-30 мг/л. Для индукции каллусогенеза используют более высокие концентрации ауксинов, в дальнейшем ткань может расти при более низком содержании ауксинов. В качестве цитокининов используют кинетин, 6-бензиламинопурин (БАП), зеатин (0.001-10 мг/л); из них кинетин наименее активен. В состав некоторых сред входит аденин. Иногда используют гибберелловую кислоту (ГК). В качестве ростактиваторов применяют также кокосовое молоко, дрожжевой экстракт, гидролизат казеина и др.
Разработано много питательных сред, но
большинство из них представляют модификации основных: Мурасиге-Скуга (МС),
Уайта, Шенка-Хильдебрандта, Гамборга (В5), Линсмайера-Скуга, Хеллера, Чапека и
др. Составы питательных сред, получивших наибольшее распространение приведены в
таблицах 1 и 2 [8].
Таблица 1 - Среда Мурасиге-Скуга
|
Компоненты |
Концентрация солей в 1 литре готового маточного раствора, мг |
Объем маточного р-ра для приготовления 1 литра среды, мл |
||
|
маточный раствор макроэлементов |
||||
|
NH4NO3 |
33000 |
50 |
||
|
KNO3 |
38000 |
|
||
|
CaCl2 * 2H2O |
8800 |
|
||
|
MgSO4 * 7H2O |
7400 |
|
||
|
KH2PO4 |
3400 |
|
||
|
маточный раствор микроэлементов |
||||
|
KJ |
166 |
5 |
||
|
H3BO3 |
1240 |
|
||
|
MnSO4 * H2O |
4460 |
|
||
|
ZnSO4 * 7H2O |
1720 |
|
||
|
Na2MoO4 * 2H2O |
50 |
|
||
|
CuSO4 * 5H2О |
5 |
|
||
|
CoCl2 * 6H2O |
5 |
|
||
|
маточный раствор хелатного железа |
||||
|
FeSO4 * 7H2O |
5560 |
5 |
||
|
Na2ЭДТА * 2H2O |
7460 |
|
||
|
витамины и органические вещества |
||||
|
Мезоинозит |
20000 |
5 |
100 |
|
|
Пиридоксин-HCl |
100 |
|
||
|
Тиамин-HCl |
100 |
|
||
|
Глицин |
400 |
|
||
|
Добавлять в виде порошка в среду перед варкой: Сахароза - 30 г/л; Агар-агар - 7 г/л рН готовой среды - 5.6-5.8 * для получения стерильных проростков на 1 литр среды берут 1/2 часть маточных растворов, т.е. вместо 50 мл раствора макроэлементов берут 25 мл и т.д. |
||||