Материал: учебник-1-часть-2017
уменьшения. Снижение фагоцитарной активности может быть врожденным и приобретенным.
Врожденные нарушения фагоцитоза. Эти дефекты передаются от родителей к детям и касаются разных стадий фагоцитоза — хемотаксиса, поглощения и переваривания. Причем они могут быть как количественными, так и качественными. К количественным врожденным дефектам фагоцитоза относятся снижение лейкоцитов ниже 1000 в 1 мм3 с явлениями нейтропении; сочетание нейтропении и слабой миграции лейкоцитов из костного мозга ("ленивые" лейкоциты), связанное с дефицитом Cs компонента комплемента; повышенное разрушение лейкоцитов в селезенке больных; дефекты передаются по аутосомнорецессивному и доминантному типу. Во всех случаях при таких количественных и качественных изменениях у детей обнаруживается склонность к локальным инфекционным воспалительным процессам (стоматит, отит, блефарит, абсцессы) или даже сепсису.
Известно, что опсонизация - это функция белка крови, который фиксируется на чужеродном объекте и, не изменяя его, обеспечивает лучшую связь с фагоцитом. Как уже говорилось, такой способностью обладают иммуноглобулины, С-реактивный белок, а2 — глобулин, пропердин, а также компоненты комплемента С5а, С3а- Такие нарушения возникают при врожденной патологии В-системы иммунитета (агаммаглобулинемии), а также при циррозе, печеночной недостаточности, системной красной волчанке, ревматоидном артрите, нефротическом синдроме. Снижение фагоцитоза связано с дефицитом компонентов комплемента, особенно стимулирующих процессы опсонизации и лизиса. Такие нарушения обнаруживаются у детей при инфекции дыхательных путей и желудочно-кишечного тракта, при дерматитах.
Очень важна не только поглотительная, но и переваривающая способность фагоцитов. Врожденный дефицит переваривающей способности наблюдается при хронической гранулематозной болезни или болезни парадоксов. Особенно поражаются наряду с кожей легкие, где развивается гнойно-продуктивный процесс с последующим формированием рубцовых изменений. Причем фагоцитоз вирулентных микроорганизмов осуществляется хорошо, а малопатогенные и сапрофитные не перевариваются. Поглощение микробов не нарушено, но в связи с наследственно-обусловленными нарушениями глюкозо-6- фосфатдегидро-геназы не образуются активные соединения кислорода, да и не повреждается мембрана микроорганизмов. Поэтому микробы в клетке размножаются, фагоцитоз является незавершенным и дает развитие воспаления, а как его результат, развиваются рубцы.
Большая устойчивость к патогенным пневмококкам связана с тем, что пневмококки не вырабатывают каталазу, но генерируют Н2О2 и, оказавшись внутри фагосомы, погибают, в связи с тем, что миелопероксидаза нейтрофилов и макрофагов защищает организм от грибков, вирусов, бактерий за счет повреждения их мембран. У больных при врожденном дефиците миелопероксидазы развивается, кроме грануломатоза, склонность к кандидомикозу.
При попадании в ткань биологических факторов в первую очередь реагируют такие макрофаги, как гистиоциты, альвеолярные мак-
76
рофаги, микроглиальные клетки, которые начинают интенсивно фагоцитировать чужеродные структуры с чужеродной генетической информацией. Одновременно с этим, при развитии воспаления, количество нейтрофилов в течение нескольких часов увеличивается, в том числе до 15—20 тыс. в 1 мм3. Эта защитная реакция связана со стимуляцией костного мозга лейкоцитарным фактором, особенно т.н. колонию стимулирующим фактором, представляющим комплекс глюкопротеинов с молекулярным весом 20 000—50 000.
Приобретенное усиление фагоцитоза может наблюдаться при воспалении, лихорадке, небольших интоксикациях, небольших кровопотерях. Наоборот, его недостаточность следует ожидать при приобретенных лейкопениях (ионизирующее излучение, бензол), дефиците энергетического субстрата (голодание, сахарный диабет, гипотириоз), при циррозе печени, гломерулонефрите (активация ингибиторов хемотаксиса и торможение эмиграции лейкоцитов).
К неспецифическим защитным реакциям относится и лихорадка, при которой усиливается фагоцитоз и тормозится размножение ряда микробов и вирусов.
Если инфекционный агент проникает через кожу и слизистые и поступает в лимфу и кровь, большое значение имеют гуморальные факторы, среди которых комплемент, лизоцим, интерлейкин-I, С- реактивный белок, а-интерфероны, β-лизины. Особенно велика роль комплемента. Система комплемента представлена протеолитическими ферментами и регуляторными белками, которые влияют на процессы фагоцитоза, фибринолиза, кининообразования. Как известно, в крови имеются 20 комплементарных факторов, активация которых обычно происходит при взаимодействии антигена с антителом. Это классический путь активации комплемента (рис. 6.1). Возможен и альтернативный или пропердиновый путь с участием микроорганизмов, имеющих большие молекулы полисахаридов в клеточной мембране, вирусов, опухолевых клеток, иммуноглобулинов, паразитов, полисахаридов, эндотоксинов. В любом случае с этим связаны такие процессы, как опсонизация, активация тучных клеток и базофилов, хемотаксис и лизис клеток, т.е. процессы фагоцитоза и образование ряда биологически активных веществ (гистамин, факторы хемотаксиса нейтрофилов и эозинофилов, триптаза — простагландины, тромбоксаны и гепарин). В результате образования гистамина, простагландинов, C5a. происходит расширение сосудов и увеличение их проницаемости.
Таким образом, при проникновении микроорганизма во внутреннюю среду комплемент активируется по альтернативному пути, т.е. с активацией С3, а при иммунологическом конфликте комплекс антигенантитело активирует комплемент по классическому пути с образованием первоначально С3а, С5а, способствующих выделению медиаторов из тучных клеток, расширению сосудов, развитию артериальной гиперемии, активации и усилению фагоцитоза нейтрофилов и эозинофилов, лизису чужеродных и поврежденных клеток. Именно с этих процессов начинается острое воспаление, которое рассматривается как защитная реакция.
Итак, комплемент — это вещества белковой природы, являющиеся, как правило, неактивными ферментами и регуляторными белка-
77
ми. Таким образом, при активации комплемента речь идет об активации ряда ферментов. Понятно, что в ходе эволюции для такой сложной и опасной для организма системы должны были сформироваться тормозные механизмы с помощью ряда регуляторных белков. Такую функцию выполняют ингибитор C1 — эстеразы и инактиватор С3б анафилатоксин. Благодаря чему невозможна неконтролируемая активация комплемента. (рис.6.1).
Таким образом, активация комплемента обеспечивает защиту организма от любых чужеродных антигенов, в том числе и инфекционных. Однако, как мы увидим позже в разделе «Аллергия», с активацией комплемента связаны и повреждающие его эффекты при развитии аллергических и аутоиммунных реакций, особенно при системной красной волчанке, анемиях и лейкопениях, миокардитах, ревматизме.
При врожденном и приобретенном нарушении комплементарных факторов, а также регуляторных белков нарушаются процессы фагоцитоза и освобождение биологически активных веществ, поэтому в этих случаях будет наблюдаться склонность к инфекционным процессам, воспалению и даже сепсису. Рассмотрим это явление детально.
При врожденном дефиците C1 невозможна активация системы комплемента по классическому пути и поэтому, вследствие нарушения фагоцитоза и лизиса микробов, наблюдаются повторные и тяжелые гнойные процессы. Наоборот, при врожденном дефиците ингибитора С1 (эстераза) развивается ангионевротический отек Квинке из-за резкой активации кининообразования.
При врожденном дефиците ингибитора С3б постоянно активируется комплемент С3, в результате чего содержание его в крови уменьшается. Хотя количество предшествующих комплементарных факторов (C1, C4, С2) не изменяется, однако из-за дефицита С3 нарушаются процессы фагоцитоза и лизиса микробов, что проявляется повторными гнойными инфекциями.
При врожденном дефиците C5 склонность к инфекции также связана с нарушением фагоцитоза и лизиса из-за невозможности образования соответствующих компонентов комплемента.
При рождении ребенка комплемент практически не определяется и в целом у детей на 30 % он ниже, чем у взрослых, что делает понятным их склонность к инфекции и сепсису. Изменения системы комплемента приобретенного характера проявляется в увеличении и уменьшении комплементарных факторов. При формировании инфекционных процессов количество комплемента в крови возрастает, что свидетельствует об усилении защитных механизмов организма. Наоборот, при поражениях печени (цирроз, гепатит, хронический холецистит) нарушается синтез C1, С3, С6, С9. С другой стороны, при аллергических, аутоиммунных заболеваниях комплементарные факторы уменьшаются в крови из-за связывания их иммунными комплексами.
78
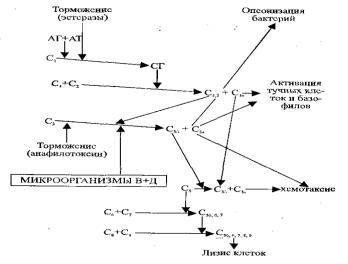
Рис. 6.1. Каскад реакций при активации комплемента (Гайтон)
Пропердин — белок крови, представляет собой нормальное антитело, появляющееся в ответ на иммунизацию веществами полисахаридной природы. Соединяясь с полисахаридами микробной клетки, этот белок активирует комплемент по альтернативному пути. Его защитное действие проявляется в бактерицидном, вирус-нейтрализующем эффекте. При замедленном типе аллергии пропердин является медиатором и поэтому количество его увеличивается. Снижение уровня пропердина в крови, а, следовательно, и его защитных свойств отмечено при тяжелых патологических процессах (шок, лейкозы, хронические инфекции).
Лизоцим (муромидаза) образуется в моноцитах и секретируется во внеклеточную жидкость, вызывая расщепление пептидогликанов мембраны бактерий. Он обнаруживается в таких жидкостях, как кровь, моча, слезная жидкость и обладает бактерицидным действием за счет расщепления полисахаридов микробной оболочки. В условиях патологии снижение количества лизоцима наблюдается обычно при тяжелых токсикоинфекциях, а увеличение его в крови, как правило, — при инфекции и неблагоприятном течении беременности, особенно перед выкидышем.
При инфекции образуется интерлейкин — IL-1, 6, ФНОα, макрофагальный воспалительный белок, эндогенные пирогены, защитная роль которых проявляется в повышении температуры, т.е. формировании лихорадки, а повышение температуры тела задерживает развитие и вызывает гибель многих микробов и вирусов. При воспалении в крови увеличивается количество С-реактивного белка. Он синтезируется в печени и связываясь с мембраной микробов вызывает опсонизацию, усиливает синтез ИЛ-1,6, повышает активность естественных киллеров. Таким образом, за счет стимуляции фагоцитоза, развития лихорадки оказывает защитное действие. Снижение С-реактивного белка в крови отмечено при системной красной волчанке.
79
а-интерфероны (их существует около 14) образуются клетками, инфицированными вирусами. Выходя из инфицированной клетки и соединяясь со специфическими рецепторами соседних клеток, интерфероны обеспечивают защиту не только против вируса, индуцировавшего интерферон, но и других вирусов. Кроме того, интерфероны усиливают активность т.н. нормальных киллеров, которые способны распознавать зараженные вирусом клетки и уничтожать их еще на ранних стадиях вирусного инфицирования.
Таким образом, интерфероны создают своеобразный барьер для распространения вирусного инфицирования.
Бактерицидное действие на аэробные микроорганизмы оказывают и β-лизины сыворотки крови, которые, вероятно, образуются тромбоцитами в ходе свертывания крови.
При недостаточности барьерных клеточных и гуморальных механизмов защиты сформировались специфические механизмы — иммунологические.
Как известно, иммунитет — это способ специфической защиты организма от всех веществ с чужеродной генетической информацией (Петров Р.В.).
При попадании в организм человека или теплокровных животных чужеродного агента могут формироваться три основные специфические реакции:
1.Иммунитет.
2.Аллергия.
3.Иммунологическая толерантность.
Иммунная система
Иммунная система имеет центральные и периферические образования. Центральные образования представлены клетками костного мозга, тимуса и в эмбриональном периоде печенью, а периферические включают клетки селезенки, лимфатических узлов, пейеровы бляшки кишечника, миндалины, лимфоидные клетки слизистых оболочек. Кроме того, достаточно значительная часть иммунной системы (лимфоциты и макрофаги) циркулирует в крови и лимфе. В целом, если рассматривать в клеточном отношении, то иммунная система представлена лимфоцитами, макрофагами, цитокинами, выполняющими гормональную функцию и регулирующие по принципу обратной связи. Клетки иммунной системы способны мигрировать из крови в лимфу и обратно в кровь. После антигеннезависимой дифференцировки Т и В-лимфоциты покидают вилочковую железу и костный мозг и расселяются в Т и В-зонах иммунной системы. Такие клетки находятся в I (0) фазе клеточного цикла и они готовы к иммунному ответу на действие чужеродного антигена.
Иммунитет подразделяется на два основных типа: клеточный и гуморальный. Формирование этих форм представлено на рис. 6.2, где гемопоэтическая полипотентная стволовая клетка дает начало миелоидной стволовой клетке, из которой в костном мозге образуются также грануло-моно и тромбоциты, в зависимости от того, в какие структуры попадает, превращается в две функционально различные клетки — Т- и В-лимфоциты. Их дифференциация происходит вначале без участия ан-
80