Материал: учебник-1-часть-2017
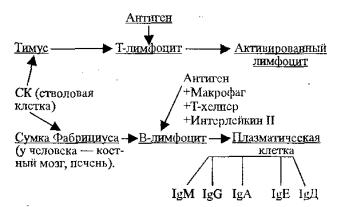
тигена (антегеннезависимая дифференцировка). В последующем на мембране Т и В-лимфоцитов появляются рецепторы, с помощью которых они распознают антиген и на него реагируют. Для В-лимфоцитов это IgM, а для Т-лимфоцитов – α и β-цепи иммуноглобулинов.
Рис. 6.2. Образование сенсибилизированных лимфоцитов и иммуноглобулинов
Вселезенке, пейеровых бляшках кишечника находятся преимущественно В-лимфоциты, а в коже и периферических узлах Т- лимфоциты (регуляторные и цитотоксические). Интересно, что В- лимфоциты, секретирующие IgA находятся в основном в слизистых оболочках, а секретирующие IgM, IgG в органах.
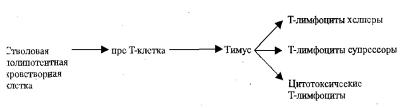
Внастоящее время известно, что в результате созревания Т-
лимфоцитов образуются три группы клеток (рис. 6.3).
Все эти клетки, созревшие в тимусе, поступают в кровь и ткани, составляя т.н. периферическую популяцию, имеющую характерные антигенные рецепторы на своих мембранах. На поверхности всех Т- лимфоцитов имеются антигенраспознающие рецепторы, позволяющие распознавать любой чужеродный антиген, попадающий в организм. Кроме того, в зависимости от наличия гликопротеинов на поверхности Т-лимфоцитов, они подразделяются на СD-4 и CD-8. Это трансмембранные белки. В тимусе имеются обе эти группы Т-лимфоцитов. Зрелые же клетки имеют на своей поверхности либо CD-4, либо CD-8, но не оба. По современным данным CD-4+ Т-лимфоциты-хелперы превращаются в Th-1 или Th-2. Th-1 принимает участие в формировании гиперчувствительности замедленного типа, а Th-2 включает синтез IgE и их фиксацию на тучных клетках, эозинофилах (гиперчувствительность наследственного типа), CD-4 рецептор обнаружен также и на мембранах макрофагов, эозинофилов, а CD-8+ - Т-лимфоциты-киллеры. CD-8+ лимфоциты обеспечивают отторжение трансплантата, аутоиммунные реакции и разрушение опухолевых и вирусинфицированных клеток. В крови первых содержится 55-60%, а вторых 20-30%. Их соотношение определяет силу иммунного ответа. Изменилось представление о Т- лимфоцитах-супрессорах. Супрессия иммунного ответа связана с рядом процессов (элиминация антигена, секрецией, торможением, пролиферацией, апоптоз активировнных лимфоцитов)После распознавания Т- лимфоцит размножается, образуя клон (группу) клеток, обладающих
81
специфичностью и обеспечивающий иммунный ответ. В крови человека содержится 75 % Т-лимфоцитов, 15 % В-лимфоцитов и 10 % нулевых клеток. Последние – это большие гранулярные лимфоциты, вызывающие гибель клеток, несущих чужеродную генетическую информацию. Выделяют две группы таких лимфоцитов: естественные киллеры, которые распознают опухолевые клетки, лимфоциты, активированные на пищевые антигены, аллоантигены плода и разрушают их; и лимфоциты, обладающие антитело-зависимой клеточной токсичностью. На их поверхности имеются Fc-рецепторы. Они взаимодействуют с клетками на поверхности которых фиксированы антитела и разрушают их. Последние лимфоциты циркулируют преимущественно в крови.
В морфологическом отношении Т-цитотоксические лимфоциты также имеют особенности, т.е. на мембране такого сенсибилизированного лимфоцита содержится около 100 000 антиген-связывающих рецепторных молекул, которые никогда не секретируются во внутреннюю среду, но при связывании которых с антигеном выделяются переваривающие лизосомальные энзимы, оказывающие цитотоксический эффект. Полагают, что Т-цитотоксическая клетка сама не лизируется и может участвовать в нескольких циклах лизиса цитокинами. Причем первоначально атакуемая клетка набухает, вероятно, за счет изменения проницаемости мембран и водно-электролитного обмена. Такого рода сенсибилизированные лимфоциты играют огромную роль в разрушении опухолевых клеток, клеток инфицированных вирусами, а также при формировании гиперчувствительности замедленного типа, в том числе и при пересадке органов.
Рис. 6.3. Основные группы Т-лимфоцитов (У. Пол)
Кроме цитотоксических Т-лимфоцитов, наиболее многочисленными являются Т-лимфоциты — хелперы. Основное их назначение заключается в активации В-клеток, Т-клеток и супрессорных Т-клеток в присутствии антигена.
Известно, что в отсутствии Т-лимфоцитов — хелперов, все вышеперечисленные клетки очень плохо активируются антигеном. Это связано с тем, что Т-хелперы образуют вещества, названные лимфокининами, с помощью которых и увеличивается синтез антител, с участием интерлейкина II стимулируются Т-цитотоксические и Т- супрессорные клетки, а также с помощью такого лимфокина, как фактор, ингибирующий миграцию макрофагов, активируется система макрофагов, в том числе в направлении усиления их фагоцитарной активности. Что касается Т-супрессоров, то они подавляют активность и цитотоксических Т-лимфоцитов и Т-хелперных, в результате чего они названы как регулирующие клетки. Функционируют они, вероятно, по
82
принципу обратной связи и обеспечивают наряду с подавлением иммунитета иммунологическую толерантность.
Как показано на рис. 6.2, в формировании гуморальной формы иммунитета принимают участие клетки, образуемые полипотентной стволовой кроветворной клеткой, но они у птиц проходят через сумку Фабрициуса (Bursa Fabricius) — отсюда и название — В-лимфоциты. У человека такую функцию выполняет костный мозг.
В-лимфоциты образуются из стволовой клетки в костном мозге и не требуют, в отличие от Т-лимфоцитов, прохождения через тимус.
Выделяют В1 и В2-лимфоциты (на мембране имеется рецептор CD-5). CD-5 В-лимфоциты продуцируют иммуноглобулины без кооперации с Т-лимфоцитами.
Первая фаза созревания В-лимфоцитов – антигеннезависимая и заключается в образовании зрелого покоящегося В-лимфоцита, на поверхности которого имеется антигенраспознающий рецептор (мономерный IgM), который взаимодействует с одним или группой близкородственных антигенов. В организме каждого человека имеется 107-109 специфических рецепторов.
Считают, что находящиеся на поверхности покоящихся В- лимфоцитов иммуноглобулины секретируются в кровь, образуя так называемые естественные антитела. Они взаимодействуют с любым попадающим в организм антигеном (бактерии, вирусы, растворимые антигены), образуя иммунный комплекс, активирующий систему комплемента и увеличивает интенсивность фагоцитоза. Выделяют тимуснезависимый и тимус-зависимый иммунный ответ. Первый формируется В-лимфоцитами при контакте их с полисахаридами капсулы бактериальной клетки с образованием клона специфически реагирующих В- клеток и при этом происходит быстрое увеличение в крови антител только одно класса (IgM). Клетки иммунологической памяти не накапливаются и через 1-2 недели секретирующие антитела клетки погибают и элиминируются. При втором (тимус-зависимом) иммунном ответе для продукции антител с Т-лимфоцитами-хелперами (CD4+клетки). При этом антиген соединяется с антигенраспознающим рецептором В- лимфоцита, поглощается им и переваривается с последующим появлением компонентов антигена на поверхности мембраны и образованием комплекса с молекулами гистосовместимости класса II. Этот комплекс распознается рецепторами Т-лимфоцитов-хелперов (CD4+), а последний образуя интерлейкины (ИЛ-2, 4, 5) стимулирует образование клона В- лимфоцитов их дифференциацию в плазматические клетки. Для этого кроме образующих интерлейкинов необходима связь белков находящихся на мембране Т- и В-лимфоцитов (костимулирующие факторы). На Т-лимфоцитах – это CD40 L, а на В-лимфоцитах CD40. только в этом случае образуются плазматические клетки, которые секретируют вначале IgM, а затем синтез иммуноглобулинов переключается на IgG, IgA, IgE, через несколько дней они погибают.
При формировании Т-зависимого иммунного ответа обязательно накапливаются клетки иммунологической памяти (В-лимфоциты), имеющие на мембране рецептор к IgG и в меньшей мере IgM. Поэтому при
83
повторном контакте с антигеном происходит быстрое и более сильное накопление антител.
Как уже говорилось, первыми синтезируются IgM, которые представляют 5 иммуноглобулинов G, соединенных в области Fc компонента. Количество IgM увеличивается при вакцинации, воспалении, системных заболеваниях. Они соединяются с мембраной грамотрицательных бактерий. На каждый новый антиген вначале образуется IgM. IgM это естественные антитела и у ребенка они образуются до контакта его с антигеном. Затем синтезируются IgG, которые циркулируют в крови и представлены четырьмя классами. IgG1-IgG4. IgG1 больше всего в сыворотке крови (70 %). Важным их свойством является проникновение через плаценту (IgG1, 3, 4) и обеспечение защиты плода и способность их активировать комплемент по классическому и альтернативному пути (IgG4). IgG – образуется в процессе гипосенсибилизации (блокирующие антитела). Образующиеся IgE антитела фиксируются на мембранах тучных клеток и базофилов и играют важную роль в развитии немедленного типа аллергических реакций, иммунитете против гельминтов. Это важный фактор защиты внутренней среды простив чужеродных антигенов, ибо если IgA на поверхности слизистых не способны инактивировать его, после проникновения он связывается с IgE на поверхности тучных клеток и базофилов с выделением вазоактивных веществ и стимуляции фагоцитоза. IgA антитела обнаружены на поверхности слизистых желудочно-кишечного, дыхательного, урогенитального тракта, а также в молоке, слезной жидкости, слюне. Они выполняют важную защитную функцию, предотвращая проникновение инфекции во внутреннюю среду организма. Особенно это важно при кормлении новорожденных детей материнским молоком, что предупреждает заселение кишечника грам-отрицательной микрофлорой, что и обеспечивает иммунитет у детей первых месяцев жизни к кишечным инфекциям. Функция IgD не совсем ясна. Полагают, что они выполняют функцию рецепторов на мембране В-лимфоцитов. Снижение уровня иммуноглобулинов в сыворотке крови (IgM, IgG, IgA) не сопровождается развитием определенных заболеваний, но закономерно ведет к склонности к инфекционным, воспалительным заболеваниям, хронизации процесса.
Развивающаяся гиперглобулинемия имеет различное патогенетическое значение. При аллергии и аутоиммунных процессах – это важный фактор повреждения. При злокачественных опухолях, их метастазах, воспалении, интоксикациях однозначную трактовку этого феномена дать трудно. Это и компенсаторная реакция организма и, возможность, дополнительного повреждения.
Имеются различия в иммунологическом ответе при первичном и вторичном контакте организма с антигеном. Это также делает понятным, почему при вакцинации требуется неоднократное введение антигена, точно так же и степень выраженности аллергической реакции будет более выражена при повторном контакте с аллергеном (рис. 6.4).
84
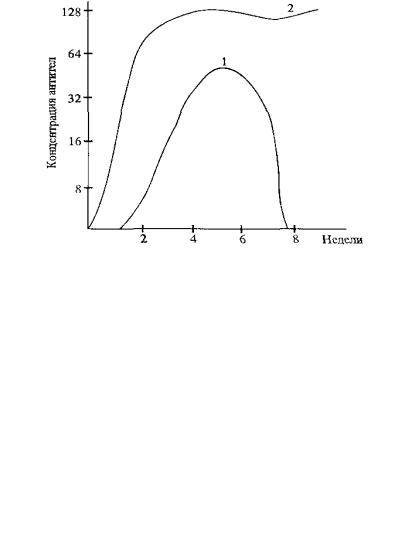
Рис. 6.4. Динамика титра антител при первичном (1) и вторичном (2) контакте с антигеном (Гайтон)
Нарушения иммунитета могут проявляться:
1)в снижении иммунологических реакций (иммунодефицит);
2)активации иммунологических реакций (аллергия);
3)дисфункции (гаммапатия);
4)толерантности.
Нарушения иммунитета:
А) Активация:
1.повышение иммунитета (вакцинация, воспаление, лихорадка).
2.активация иммунитета (аллергия).
Б) Снижение иммунитета (иммунодефицит): 1. врожденный (гумормальный и клеточный): а) агаммаглобулинемия
б) недостаточный синтез IgG, IgA. Последствия – склонность к инфекцмм у детей.
Врожденный клеточный – склонность к опухолям, вирусным, грибковым процессам.
При поражении стволовой клетки – нарушается клеточный и гуморальный иммунитет – плод нежизнеспособный, завершается выкидышем или гибель в раннем постнатальном периоде.
Приобретенный иммунодефицит
По механизму развития:
1.Поражение органов иммунитета (СККД, цитостатики, облучение)
2.Опосредованное подавление иммунитета (стресс, сахарный диабет, опухоли)
3.При недостатке белка (обширные ожоги, голодание, нефротический синдром, гепато-ренальная недостаточность).
85