Материал: GOSy_otvety
СОДЕРЖАНИЕ
4. Болотный почвообразовательный процесс. Пути формирования болотных почв.
5. Генезис, свойства и состав серых лесных почв и их сельскохозяйственное использование
6. Генезис, строение, состав и свойства дерново-подзолистых почв
8. Генетическая и агрономическая характеристика черноземных почв.
9. Генетическая и Агроэкологическая оценка черноземов
10.Гранулометрический состав, полевые и лабораторные методы исследования.
11. Засоленные почвы. Их мелиорация и использование
12. Особенности мелиорации и использования полугидроморфных почв таежно-лесной зоны.
13. Особенности почвообразования и генезис почв таежно-лесной зоны.
14. Подзолистые и дерново-подзолистые почвы, их агроэкологическая оценка и использование.
15. Понятие геохимического ландшафта, классификация. Геохимические барьеры.
16. Понятие о водной и ветровой эрозии. Система мер по ее преодолению
17.Почвенная вода, водные свойства и водный режим почв.
18. Почвенно-географическое районирование. Характеристика основных таксономических единиц
19. Почвенно-ландшафтная картография для проектирования систем земледелия.
20.21. Причины возникновения водной и ветровой эрозии и меры по их устранению.
22. Пути и средства оптимизации органического вещества почвы.
23. Структура почвенного покрова и основные критерии ее агрономической оценки.
24. Структура почвенного покрова, характеристика эпа и почвенных комбинаций.
25. Факторы заболачивания почвы таежно-лесной зоны.
27. Характеристика почвообразовательных процессов в таежно-лесной зоне.
28. Черноземы лесостепной зоны. Строение, состав и свойства.
29.Черноземы степной зоны. Строение, состав и свойства
30. Элювиальные процессы и их изменения при с/х использовании земель.
36. Баланс азота и основные статьи баланса в земледелии различных почвенно-климатических зон.
37. Бесподстилочный навоз бн. Состав, свойства и технология применения.
38. Действие внешних факторов и доступность элементов питания растениям и приемы их регулирования.
42. Комплексные удобрения. Классификация, состав, свойства и условия эффективного применения.
43. Методика закладки полевого опыта с удобрениями.
47. Обоснуйте желаемый ассортимент удобрений для различных почвенно-климатических зон
52. Особенности питания и удобрения долголетних злаковых культурных пастбищ (злаковые травосмеси).
57. Сравнительная эффективность фосфорных удобрений в различных почвенно-климатических зонах.
59.Фосфоритная мука.Состав, свойства и условия эффективного применения.
70. Основные представления об экологии. Базовые экологические понятия и термины. Законы экологии.
72. Основные типы возрастного распределения популяции. Диагностика и прогноз демографического состояния популяции.
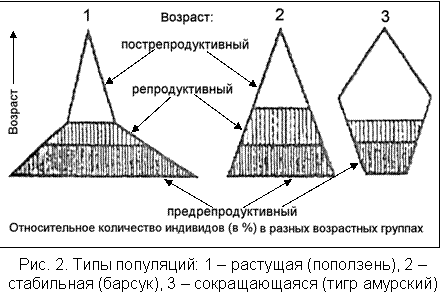
Соотношение возрастных групп в структуре популяции характеризуют ее способность к размножению и выживанию, и согласуется с показателями рождаемости и смертности. В растущих популяциях с высокой рождаемостью преобладают молодые (рис. 2), еще не репродуктивные особи, в стабильных – обычно это разновозрастные, полночленные популяции, у которых регулярно определенное число особей переходит из младших возрастных групп в старшие, рождаемость равна убыванию населения. В сокращающихся популяциях основу составляют старые особи, возобновление в них отсутствует или совсем незначительно.
73. Особенности внутривидовой и межвидовой конкуренции. Условия сосуществования биологически родственных видов.
(межвидовая конкуренция ограничивает спектр ресурсов, потребляемых данным видом. Особи одного вида, используя краевые ресурсы, по-видимому, не могут использовать их так же эффективно, как представители других видов, для которых эти ресурсы почти оптимальны. Область перекрывания между нишами при этом уменьшится, так что по мере специализации ниш они станут уже Размеры популяций одного или обоих конкурирующих видов, вероятно, также будут уменьшаться. Теория оптимального фуражирования дает менее точные предсказания. В тех случаях, когда конкурирующий вид избирательно снижает доступность определенного типа пищи или размеры кормовой территории, следует ожидать возникновения более специализированного кормового спектра. И напротив, когда конкурент одинаково сокращает доступность всех типов пищи и размеры кормовых территорий, предполагается расширение кормового спектра (числа видов-жертв). Пианка в своей гипотезе перекрывания ниш на основании формальных рассуждений постулировал обратную зависимость между интенсивностью конкуренции и степенью перекрывания ниш между парами видов. Когда потребность в ресурсах низка по сравнению с их наличием, потенциальные конкуренты могут выдержать относительно высокую степень перекрывания используемых ресурсов, не доводя конкуренцию до критических уровней. Если же отношение между потребностью в ресурсе и его наличием велико, то устойчивость к перекрыванию ниш должна быть ниже. Таким образом, предполагается большее разделение ниш при возрастании видового разнообразия, при котором предположительно происходит пропорциональное сокращение реализованных ниш взаимодействующих видов в результате межвидовой конкуренции. Внутривидовая конкуренция в тех случаях, к которым применима нормальная функция использования, имеющиеся ресурсы потребляются особями вида не в одинаковой степени. Те особи, которые используют данный ресурс в краевых, но зато менее оспариваемых точках его градиента, часто будут обладать более высокой индивидуальной приспособленностью, чем особи, использующие этот ресурс в зоне его оптимума, где конкуренция особенно велика. Поэтому принцип доминирования равных возможностей предсказывает, что поведение отдельной особи должно вести к стабилизации уровня внутривидовой конкуренции путем уравнивания соотношения между потребностью в ресурсе и его наличием вдоль его градиента.
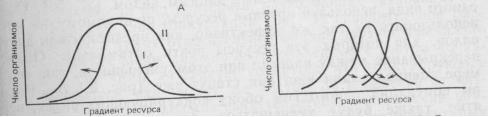
Рис. 3.1. Изменения ширины ниши в условиях конкуренции. А. – Внутривидовая конкуренция — кривые потребления при низкой и высокой плотности популяции. Б. – Межвидовая конкуренция. Стрелки указывают направление изменений. В период роста популяции впервые особи будут использовать оптимальные ресурсы, но с увеличением ее плотности преимущества этих особей снижаются за счет повышения внутривидовой конкуренции. Это может благоприятствовать отклоняющимся особям, использующим не самые оптимальные, но менее оспариваемые ресурсы, что увеличивает разнообразие ресурсов и местообитаний, освоенных данной
видовой популяцией в целом. Понижение доступности самих ресурсов окажет такое же Внимание экологов к пищевым цепям может создать впечатление, что борьба видов за существование - это прежде всего борьба за выживание хищников и жертв. Однако это не так. Пищевые отношения не сводятся к отношениям "хищник - жертва": два вида животных в одном сообществе могут конкурировать из-за пищи, а могут кооперировать свои усилия. Источник пищи для одного вида часто является побочным продуктом деятельности другого. Зависимость животных, питающихся падалью, от хищников - только один из примеров. Менее очевидный случай - зависимость организмов, населяющих небольшие скопления воды в дуплах, от тех животных, которые эти дупла делают. Подобное извлечение одними организмами пользы из деятельности других называют комменсализмом. Если польза обоюдная, говорят о мутуализме или симбиозе. На самом деле отдельные виды в сообществе почти всегда находятся в двусторонних отношениях. Так, плотность популяции жертв зависит от активности хищников; сокращение численности последних может привести к настолько высокой плотности популяции жертв, что они начинают страдать от голода и эпидемий.
74. Особенности случайного, однородного и группового типов пространственного распределения популяций.
Изредка в природе встречается почти равномерное упорядоченное распределение особей на занимаемой территории, например в чистых зарослях некоторых растений. Однако в силу неоднородности занимаемого пространства, а также некоторых особенностей биологии видов чаще всего члены популяции распределяются в пространстве неравномерно. При этом существуют два крайних варианта неравномерного размещения членов популяции: 1) четко выраженная мозаичность с незанятым пространством между отдельными скоплениями особей (например, гнездовья грачей в рощах или парках); 2) распределение случайного, диффузного типа, когда члены популяции более или менее независимы друг от друга и обитают в относительно однородной для них среде (например, размещение мучных хрущаков в муке). Отметим, что между указанными вариантами неравномерного размещения существует множество переходов. В то же время тип распределения в занимаемом пространстве в каждом конкретном случае оказывается приспособительным, поскольку позволяет оптимально использовать имеющиеся ресурсы. Растения чаще всего распределены крайне неравномерно, образуя при этом более или менее изолированные группы, скопления, которые называются субпопуляциями. Они имеют отличия в числе особей, плотности, возрастной структуре и протяженности. Напротив, у животных, благодаря их подвижности, способы упорядочивания территориальных отношений более разнообразны по сравнению с растениями. При этом внутрипопуляционное распределение у высших животных регулируется системой инстинктов. Такие инстинкты, которые способствуют поддержанию размещения по территории отдельных особей или групп в популяциях, характерны для птиц, млекопитающих, пресмыкающихся, ряда рыб. По типу использования пространства все подвижные животные подразделяются на оседлых и кочевых. Оседлые животные отличаются инстинктами привязанности к своему участку, стремлением вернуться на хорошо знакомую территорию (если произошло вынужденное переселение). Такое «чувство дома» получило название «хоминг» (от англ. home — дом). Яркий пример хоминга — занимание одной и той же парой скворцов «своего» скворечника в течение ряда лет. Оседлому образу жизни присущи существенные биологические преимущества. В частности, на знакомой территории облегчается свободная ориентация, животное тратит меньше времени на поиски корма, быстрее находит укрытие от врага, а также может при необходимости создавать запасы пищи (белка, сурок, полевая мышь). В то же время оседлый образ жизни угрожает быстрым истощением пищевых ресурсов, если, например, плотность популяции становится чрезмерно высокой. Даже в случае территориального обособления члены популяции поддерживают друг с другом определенную связь. Это обеспечивается при помощи системы различных сигналов и прямых контактов на границах владений. Различают два типа активности территориального поведения животных: первый направлен на обеспечение собственного существования (поиск пищи, устройство убежищ и т.п.), второй — на установление отношений с соседями (мечение и охрана своих участков). При этом применяются разные способы для закрепления участка: от прямой агрессии по отношению к чужаку, до ритуального поведения, демонстрирующего угрозу, а также специальных сигналов и меток, которые свидетельствуют о занятости территории. Следует подчеркнуть, что прямая агрессия с нанесением конкуренту повреждений встречается весьма редко. На нейтральной территории агрессивный инстинкт угасает. Частичное перекрывание индивидуальных «владений» служит способом поддержания контактов между членами популяции. При этом соседи, как правило, поддерживают устойчивую обоюдовыгодную систему связей, например, совместную защиту от врагов, взаимное предупреждение об опасности (сороки в лесу). Территориальное поведение животных особенно ярко выражено в период размножения. По его окончании у многих видов распределение по индивидуальным участкам сменяется групповым образом жизни с иным типом поведения. Так, после вылета птенцов большинство воробьиных птиц объединяются в стаи, которые совершают кочевки. Для оседлых видов животных все варианты общей пространственной структуры популяций обычно сводятся к четырем основным типам: диффузному, мозаичному (рассмотрены ранее), пульсирующему и циклическому. Для популяций, характеризующихся резкими колебаниями численности, характерен пульсирующий тип пространственной структуры. Известно, что в период резкого падения численности некоторые животные собираются на наиболее благоприятных для жизни участках. Так, например, полевки-экономки в лесостепи в засушливые годы заселяют в первую очередь заболоченные берега озер. Циклический тип пространственной структуры популяций оседлых животных характеризуется закономерным попеременным использованием территории в течение года, например летом и зимой. При таком типе использования пространства сохраняется баланс между потреблением кормов и их ежегодным возобновлением. Кочевой образ жизни имеет перед оседлым определенные преимущества. Прежде всего, кочевые животные не зависят от запасов корма на конкретной территории. Однако постоянные передвижения одиночных особей способствуют учащению гибели от хищников. Именно поэтому кочевой образ жизни, как правило, свойствен стадам и стаям. При этом территории перемещения многих видов могут быть весьма большими. Так, табуны зебр в Серенгети в период сухого сезона кочуют на участке в 400—600 км2. На данной территории имеются определенные места отдыха, пастьбы и водопоев, используемые регулярно в определенные сроки. Многообразие конкретных форм проявления территориальных взаимоотношений животных ученые располагают в постепенно усложняющийся ряд. При этом система неперекрывающихся охраняемых участков оседлых особей — это самая простая пространственная структура популяций; более сложная — система перекрывающихся территорий, при которой усиливаются внутривидовые контакты. Наконец, групповое использование одних и тех же участков, возможное только на основе строго упорядоченных отношений внутри группы.
Два типа развития популяций: S и J.
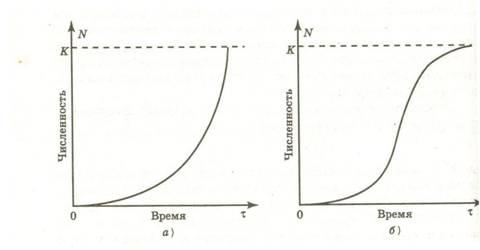
-образная кривая характеризует экспоненциальный рост численности популяции, который продолжается вплоть до внезапного падения плотности популяции в результате исчерпания ресурсов среды (рис.4, а). Такой рост не зависит от плотности, так как его регуляция не связана с плотностью популяции до самого момента катастрофы. Едва ли не каждый организм способен увеличить свою численность до заселения всей Земли при условии достатка пищи, воды, пространства и защиты от врагов. При неограниченных ресурсах такие быстро размножающиеся виды как бактерии, насекомые, мыши и некоторые рыбы, могут сделать это за короткий отрезок времени. Например, при отсутствии ограничений один вид бактерий полностью заселил бы нашу планету за 30 дней. Почему же этого не происходит? Потому что природные условия не столь идеальны, а ресурсы ограничены. Такие факторы, как наличие хищников, внутри- и межвидовая конкуренции, недостаток пищи, болезни, неблагоприятные климатические условия, отсутствие подходящих местообитаний, как правило, останавливают рост популяции ниже уровня максимальной рождаемости. Максимальный размер популяции одного вида, который природная экосистема способна поддерживать в определенных экологических условиях неопределенно долго, называется поддерживающей емкостью экосистемы для данного вида или просто емкостью экосистемы. При ограниченных ресурсах размеры популяции того или иного вида также ограничены и смертность начинает расти, когда численность популяции достигает или временно превышает емкость экосистемы.
 Рисунок
4- Кривые роста численности популяции.
Когда это случается, J-образная кривая
роста популяции начинает плавно
изгибаться и принимает вид S-образной
кривой (рис.4, б). Такой тип роста называют
зависимым от плотности, так как скорость
роста зависит от плотности популяции,
которая влияет на истощение пищевых
ресурсов и накопление токсичных
продуктов, а потому и на рост. С увеличением
плотности скорость роста популяции
постепенно снижается до нуля, а кривая
выходит на плато. При нулевом росте
популяция стабильна, то есть размеры
ее не меняются, при этом отдельные
организмы растут и размножаются. Нулевая
скорость роста популяции означает лишь
то, что скорость размножения уравновешена
смертностью. После этого размеры
популяции обычно колеблются в пределах
емкости среды. Переход от J-образной к
S-образной кривой может быть достаточно
плавным или же может наблюдаться резкое
падение численности популяции, называемое
крахом или коллапсом популяции (