Материал: Voprosy_s_otvetami_na_ekz_po_fize
Одиночное сокращение скелетных мышц, его фазы. Тетаническое сокращение скелетных мышц. Зубчатый и гладкий тетанус мышц.
При нанесении на двигательный нерв или мышцу одиночного порогового или сверхпорогового раздражения, возникает одиночное сокращение. При его графической регистрации, на полученной кривой можно выделить три последовательных периода:
1) Латентный период: это время от момента нанесения раздражения до начала сокращения. Его длительность около 1-2 мс. Во время латентного периода генерируется и распространяется ПД, происходит высвобождение кальция из СР, взаимодействие актина с миозином и т.д.
2) Период укорочения: в зависимости от типа мышцы (быстрая или медленная) его продолжительность от 10 до 100 мсек.,
3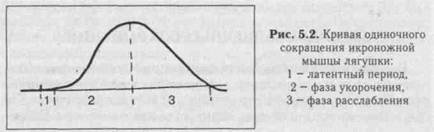 )
Период
расслаблени:
его длительность несколько больше, чем
укорочения (0,05-0.06 сек.)
В режиме одиночного сокращения мышца способна работать длительное время без утомления, но его сила незначительна. Поэтому в организме такие сокращения встречаются редко, например, так могут сокращаться быстрые глазодвигательные мышцы, мышцы сгибателей пальцев. Чаще одиночные сокращения суммируются.
Суммация – это сложение двух последовательных сокращений при нанесении на нее двух пороговых или сверхпороговых раздражений, интервал между которыми меньше длительности одиночного сокращения, но больше продолжительности рефракторного периода.
Виды:
- неполная суммация: возникает в том случае, если повторное раздражение наносится на мышцу, когда она уже начала расслабляться
- полная возникает тогда, когда повторное раздражение действует на мышцу до начала периода расслабления, т.е. в конце периода укорочения.
Амплитуда сокращения при полной суммации выше, чем неполной. Если интервал между двумя раздражениями еще больше уменьшить, например, нанести второе в середине периода укорочения, то суммации не будет, потому что мышца находится в состоянии рефрактерности.
Тетаническое сокращение
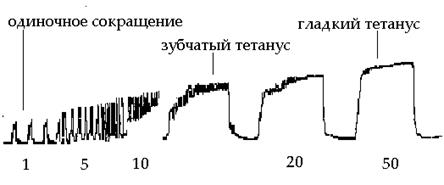
Тетанус – это длительное сокращение мышцы, возникающее в результате суммации нескольких одиночных сокращений, развивающихся при нанесении на нее ряда последовательных раздражений.
Формы
- зубчатый тетанус: наблюдается в том случае, если каждое последующее раздражение действует на мышцу, когда она уже начала расслабляться. Т.е. наблюдается неполная суммация.
- гладкий тетанус: возникает тогда, когда каждое последующее раздражение наносится в конце периода укорочения. Т.е. имеет место полная суммация отдельных сокращений. Амплитуда гладкого тетануса больше, чем зубчатого. В норме мышцы человека сокращаются в режиме гладкого тетануса. Зубчатый возникает при патологии, например, тремор рук при алкогольной интоксикации и болезни Паркинсона.
Физиологические свойства и функции гладкомышечных клеток. Виды хеморецепторов мембраны гладкомышечных клеток.
Функции:
1.поддержание давления в полых органах
2.регуляция давления в кровеносных сосудах
3.опорожнение полых органов и продвижение их содержимого
Физиологические особенности гладких мышц
Гладкие мышцы имеют те же физиологические свойства,что и скелетные мышцы ,но имеют и свои особенности :
1.нестабильный мембранный потенциал , который поддерживает мышцы в состоянии постоянного частичного сокращения – тонуса
2.самопроизвольную автоматическую активность
3.сокращение в ответ на растяжение
4.пластичность
5.высокую чувствительность к химическим веществам
Виды хеморецепторов
1. Экстероцептивные. Воспринимают информацию определенных сигналов организма.
Данный вид делится на: • вкусовые; • обонятельные.
Первые расположены на луковицах языка и реагируют на вещества, растворенные в жидкости. Вторые находятся на эпителии носовой полости, вступают во взаимодействие с веществами, растворенными в газах.
По строению: • Первичные, элементом является терминали афферентных нервных волокон. • Вторичные, элементом является специальная структура, которая не относится к нервной ткани.
2. Интероцептивные. Воспринимают сигналы жидких сред организма. Они концентрируются на рефлексогенных участках и диффузно распределяются по органам и тканям.
Общий план строения синапсов. Классификация синапсов.
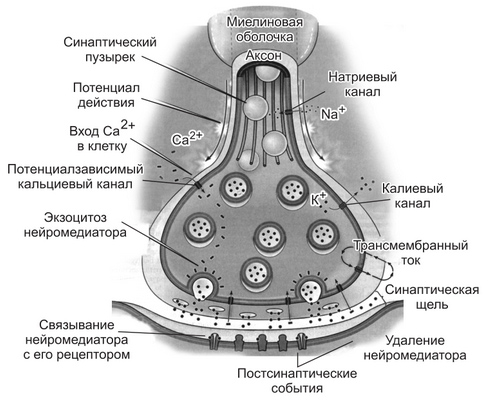
Синапсы состоят из трех основных элементов: пресинаптической мембраны, постсинаптической мембраны и синаптической щели (рис. 1).
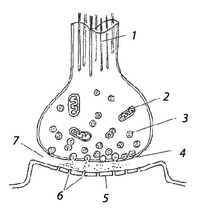
Рис. 1. Строение синапса: 1 — микротрубочки; 2 — митохондрии; 3 — синаптические пузырьки с медиатором; 4 — пресинаптическая мембрана; 5 — постсинаптическая мембрана; 6 — рецепторы; 7 -синаптическая щель
Некоторые элементы синапсов могут иметь и другие названия. Например, синаптическая бляшка — это синапс между нейронами, концевая пластинка — постсинаптическая мембрана нервно-мышечного синапса, моторная бляшка — пресинаптическое окончание аксона на мышечном волокне.
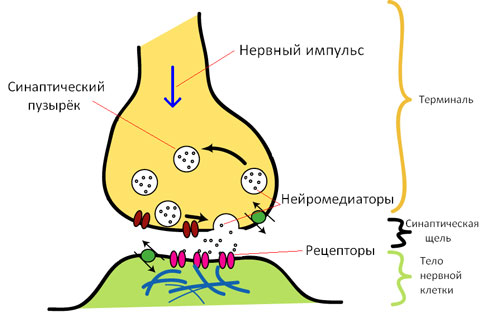
Пресинаптическая мембрана покрывает расширенное нервное окончание, которое представляет собой нейросекреторный аппарат. В пресинаптической части находятся пузырьки и митохондрии, обеспечивающие синтез медиатора. Медиаторы депонируются в гранулах (пузырьках).
Постсинаптическая мембрана - утолщенная часть мембраны клетки, с которой контактирует пресинаптическая мембрана. Она имеет ионные каналы и способна к генерации потенциала действия. Кроме того, на ней расположены специальные белковые структуры — рецепторы, воспринимающие действие медиаторов.
Синаптическая щель представляет собой пространство между пресинаптической и постсинаптической мембранами, заполненное жидкостью, близкой по составу к плазме крови.
27.Классификация синапсов
1. По местоположению и принадлежности соответствующим структурам:
периферические(нервно-мышечные, нейросекреторные, рецепторнонейрональные);
центральные(аксо-соматические, аксо-дендритные, аксо-аксональные, сомато-дендритные. сомато-соматические);
2. По эффекту действия:
возбуждающие
тормозные
3. По способу передачи сигналов:
Электрические,
химические,
смешанные.
4. По медиатору:
холинергические,
адренергические,
серотонинергические,
глицинергически. и т.д.
Механизм проведения возбуждения в электрических и химических синапсах нервной системы. Постсинаптические потенциалы в нервных синапсах, их природа.
Проведение возбуждения в электрических синапсах
Электрический ток, возникающий между пресинаптической и постсинаптической мембраной, раздражает постсинаптическую мембрану и вызывает генерацию в ней ПД. Процесс начинается с открывания Nа+-канала. Ионы Na+устремляются в клетку (по градиенту концентрации), что вызывает локальное обращение знака мембранного потенциала. При этом Na+-каналы тотчас закрываются, т. е. поток ионов Na+ в клетку длится очень короткое время. В связи с изменением мембранного потенциала открываются (на несколько мс) потенциал-управляемые К+-каналы и ионы К+ устремляются в обратном направлении, из клетки. В результате развития ПД происходит реверсия заряда пресинаптической мембраны.
Проведение возбуждения в химических синапсах
Передача возбуждения в химическом синапсе – сложный физиологический процесс, протекающий в несколько этапов. На пресинаптической мембране осуществляется трансформация электрического сигнала в химический, который на постсинаптической мембране снова трансформируется в электрический сигнал.
Синтез медиатора
Медиатором (посредником) называют химическое вещество, которое обеспечивает одностороннюю передачу возбуждения в химическом синапсе. Некоторые медиаторы (например, ацетилхолин) синтезируются в цитоплазме синаптического окончания, и там же молекулы медиатора депонируются в синаптических пузырьках. Ферменты, необходимые для синтеза медиатора, образуются в теле нейрона и доставляются в синаптическое окончание путем медленного (1–3 мм/сут) аксонного транспорта. Другие медиаторы (пептиды и др.) синтезируются и упаковываются в везикулы в теле нейрона, готовые синаптические пузырьки доставляются в синаптичекую бляшку за счет быстрого (400 мм/сут) аксонного транспорта. Синтез медиатора и образование синаптических пузырьков осуществляется непрерывно.
Секреция медиатора
Содержимое синаптических пузырьков может выбрасываться в синаптическую щель путем экзоцитоза. При опорожнении одного синаптического пузырька в синаптичекую щель выбрасывается порция (квант) медиатора, которая включает около 10000 молекул.
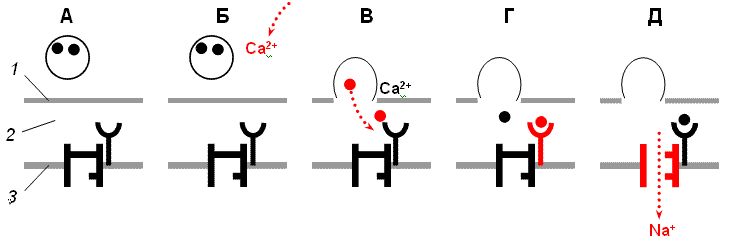
Для активации экзоцитоза необходимы ионы Са++ . В состоянии покоя уровень Са++ в синаптическом окончании низок и выделения медиатора практически не происходит. Приход в синаптическое окончание возбуждения приводит к деполяризации пресинаптической мембраны и открытию потенциалчувствительных Са++ -каналов. Ионы Са++ поступают в цитоплазму синаптического окончания (рис. 3, А,Б) и активируют опорожнение синаптических пузырьков в синаптическую щель (рис. 3, В).
|
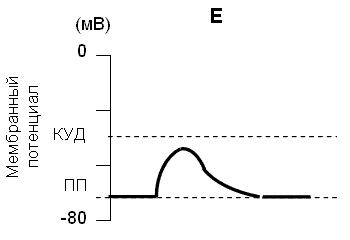
Рис. 3. Передача сигнала в возбуждающем химическом синапсе. А - Д – последовательность процессов при срабатывании химического синапса; Е – деполяризация постсинаптической мембраны (ВПСП). 1 – пресинаптическая мембрана, 2 – синаптическая щель, 3 – постсинаптическая мембрана |
Взаимодействие медиатора с рецепторами постсинаптической мембраны
Молекулы медиатора диффундируют через синаптическую щель и достигают постсинаптической мембраны, где связываются с рецепторами хемочувствительных Na+ -каналов (рис. 3,Г). Присоединение медиатора к рецептору приводит к открытию Na+ -каналов, через которые в клетку входят ионы Na+ (рис. 3,Д). В результате входа в клетку положительно заряженных ионов происходит локальная деполяризация постсинаптической мембраны, которую называют возбуждающий постсинаптический потенциал (ВПСП) (рис. 3,Е).
Инактивация медиатора
Ферменты, находящиеся в синаптической щели, разрушают молекулы медиатора. В результате происходит закрытие Na+ -каналов и восстановление МП постсинаптической клетки. Некоторые медиаторы (например, адреналин) не разрушаются ферментами, а удаляются из синаптической щели путем быстрого обратного всасывания (пиноцитоза) в синаптическое окончание.
Генерация ПД
В нейро-нейрональном синапсе амплитуда ВПСП значительно меньше и недостаточна для того, чтобы деполяризовать мембрану нейрона. Поэтому для генерации ПД в нервной клетке требуется возникновение нескольких ВПСП. ВПСП, образовавшиеся в результате срабатывания разных синапсов, электротонически распространяются по мембране клетки, суммируются и генерируют образование ПД в области аксонного холмика. Мембрана нейрона в области аксонного холмика обладает низким электрическим сопротивлением и имеет большое количество потенциалчувствительных Na+ -каналов
Постсинаптические потенциалы в нервных синапсах, их природа
В возбуждающих синапсах нервной системы медиатором может являться ацетилхолин, норадреналин, дофамин, серотонин, глугаминовая кислота, вещество Р, а также большая группа других веществ, являющихся, если не медиаторами в прямом значении, то во всяком случае модуляторами (меняющими эффектиьность) синаптической передачи. Возбуждающие медиаторы вызывают появление на постсинаптической мембране возбуждающего постсинаптического потенциала (ВПСП). Его формирование обусловлено тем, что медиатор-рецепторный комплекс активирует Na- каналы мембраны (а также вероятно и Са-каналы) и вызывает за счет поступления натрия внутрь клетки деполяризацию мембраны. Одновременно происходит и уменьшение выхода из клетки ионов К+Амплитуда одиночного ВПСП однако довольно мала, и для уменьшения заряда мембраны до критического уровня деполяризации необходима одновременная активация нескольких возбуждающих синапсов.
ВПСП, образуемые на постсинаптической мембране этих синапсов, способны суммироваться, т.е. усиливать друг друга, приводя к росту амплитуды ВПСП (пространственная суммация).
Растет амплитуда ВПСП и при увеличении частоты поступающих к синапсу нервных импульсов (временная суммация), что повышает число выводимых в синаптическую щель квантов медиатора.
Процесс спонтанной регенеративной деполяризации возникает в нейроне обычно в месте отхождения от тела клетки аксона, в так называемом аксонном холмике, где аксон еше не покрыт миелином и порог возбуждения наиболее низкий. Таким образом, ВПСП, возникающие в разных участках мембраны нейрона и на его дендритах, распространяются к аксонному холмику, где суммируются, деполяризуя мембрану до критического уровня и приводя к появлению потенциала действия.
Тормозной постсинаптический потенциал (ТПСП)В тормозных синапсах обычно действуют другие, тормозные, медиаторы. Среди них хорошо изученными являются аминокислота глицин (тормозные синапсы спинного мозга), гамма-аминомасляная кислота (ГАМК) — тормозной медиатор в нейронах головного мозга. Вместе с тем, тормозной синапс может иметь тот же медиатор, что и возбуждающий, но иную природу рецепторов постсинаптической мембраны. Так, для ацетилхолина, биогенных аминов и аминокислот на постсинаптической мембране разных синапсов могут существовать как минимум два типа рецепторов, и, следовательно, разные медиатор-рецепторные комплексы способны вызывать различную реакцию хемочувствительных рецепторуправляемых каналов. Для тормозного эффекта такой реакцией может являться активация калиевых каналов, что вызывает увеличение выхода ионов калия наружу и гиперполяризацию мембраны. Аналогичный эффект во многих тормозных синапсах имеет активация каналов для хлора, увеличивающая его транспорт внутрь клетки. Возникающий при гиперполяризации сдвиг мембранного потенциала получил название тормозного постсинаптического потенциала (ТПСП). На рис.3.5 показаны отличительные черты ВПСП и ТПСП. Увеличение частоты нервных импульсов, приходящих к тормозному синапсу, также как и в возбуждающих синапсах, вызывает нарастание числа квантов тормозного медиатора, выделяющихся в синаптическую щель, что, соответственно, повышает амплитуду гиперполяризационного ТПСП. Вместе с тем, ТПСП не способен распространяться по мембране и существует только локально.
В результате ТПСП уровень мембранного потенциала удаляется от критического уровня деполяризации и возбуждение становится либо вообще невозможным, либо для возбуждения требуется суммация значительно больших по амплитуде ВПСП, т.е. наличие значительно больших возбуждающих токов. При одновременной активации возбуждаюших и тормозных синапсов резко падает амплитуда ВПСП, так как деполяризующий поток ионов Na+ компенсируется одновременным выходом ионов К+ в одних видах тормозных синапсов или входом ионов СГ в других, что называют шунтированием ВПСП.
|
МПП — мембранный потенциал покоя. Стрелки у синапсов показывают направление тока. |
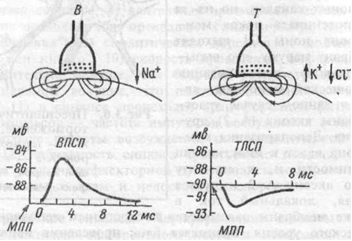 Рис.3.5.
Возбуждающий (В) и тормозный (Т) синапсы
и их потенциалы.