Материал: Voprosy_s_otvetami_na_ekz_po_fize
Под влиянием некоторых ядов может происходить блокада тормозных синапсов в нервной системе, что вызывает безудержное возбуждение многочисленных рефлекторных аппаратов и проявляется в виде судорог. Так действует стрихнин, конкурентно связывающий рецепторы постсинаптической мембраны и не позволяющий им взаимодействовать с тормозным медиатором. Столбнячный токсин, нарушающий процесс освобождения тормозного медиатора, также угнетает тормозные синапсы.
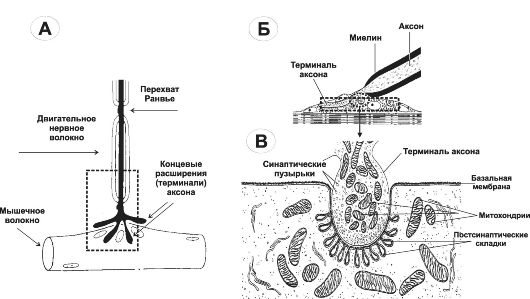
Механизм проведения возбуждения в нервно-мышечных синапсах. Роль Ca2+ в механизме синаптического процесса.
Проведение возбуждения в нервно-мышечных синапсах
ПД достигая нервного окончания (пресинаптической мембраны) вызывает его деполяризацию. При деполяризации пресинаптической мембраны кальций входит в пресинаптическую терминаль через специфические потенциалозависимые кальциевые каналы в этой мембране. Увеличение концентрации кальция в нервном окончании способствует освобождению ацетилхолина, который выходит в синаптическую щель. Медиатор достигает постсинаптической мембраны и связывается там с рецепторами. В результате внутрь постсинаптической мембраны поступают ионы натрия и эта мембрана частично деполяризуется, т.е. возбуждение пока еще не распространяется дальше, а находится в синапсе. Частичная деполяризация постсинаптической мембраны называется возбуждающим постсинаптическим потенциалом (ВПСП).
Под влиянием ВПСП в соседнем чувствительном участке мембраны мышечного волокна возникает распространяющийся ПД, который и вызывает сокращение мышцы.
Для восстановления возбудимости постсинаптической мембраны после очередного импульса необходима инактивация медиатора (инактивационная система). В противном случае, при длительном действии медиатора происходит снижение чувствительности рецепторов к этому медиатору.
Для заблокирования передачи возбуждения через синапс применяют яд кураре, который связывается с рецепторами постсинаптической мембраны и препятствует их взаимодействию с ацетилхолином. Заблокировать проведение возбуждения через синапс может яд бутулин и другие вещества.
Роль кальция в синаптических процессах
Слияние синаптических пузырьков с пресинаптической мембраной происходит, когда увеличивается концентрации Са2+ в цитозоле нервной терминали. Белок синаптического пузырька синаптотагмин связывается с Са2+ и тем самым принимает участие в регуляции экзоцитоза (в том числе реорганизуя примембранный цитоскелет).
Торможение в нервной системе. Виды торможения. Природа пре-, постсинаптического, возвратного и пессимального торможения.
Торможение - местный нервный процесс, приводящий к угнетению или предупреждению
возбуждения. Торможение является активным нервным процессом, результатом которого
служит ограничение или задержка возбуждения. Одна из характерных черт тормозного
процесса- отсутствие способности к активному распространению по нервным структурам.
Постсинаптическое торможение —основной вид торможения, заключается в том, что в нервных окончаниях тормозящих нейронов под влиянием приходящего по аксону импульса выделяется медиатор, который гиперполяризует постсинаптическую мембрану другого возбуждающего нейрона. В мембране последнего деполяризация не может достигнуть критического уровня, и поэтому возбуждение по нейрону не распространяется.
Пресинаптическое торможение локализуется в пресинаптических окончаниях, т.е. в разветвлениях (терминалях) возбуждающего нейрона. На этих терминалях располагаются окончания аксона тормозящего нейрона. При его возбуждении тормозной медиатор частично или полностью блокирует проведение возбуждения возбуждающего нейрона, и его влияние не передается на другой нейрон.
Возвратное торможение осуществляется вставочными тормозными клетками (клетками Реншоу). Аксоны мотонейронов часто дают коллатерали (ответвления), оканчивающиеся на клетках Реншоу. Аксоны клеток Реншоу оканчиваются на теле или дендритах этого мотонейрона, образуя тормозные синапсы. Возбуждение, возникающее в мотонейроне, распространяется по прямому пути к скелетной мускулатуре, а также по коллатералям к тормозящему нейрону, который посылает импульсы к мотонейронам и тормозит их. Чем сильнее возбуждение мотонейрона, тем сильнее возбуждаются клетки Реншоу и тем более интенсивно они оказывают свое тормозящее действие, что предохраняет нервные клетки от перевозбуждения.
Рис.9.
Механизмы и виды торможения 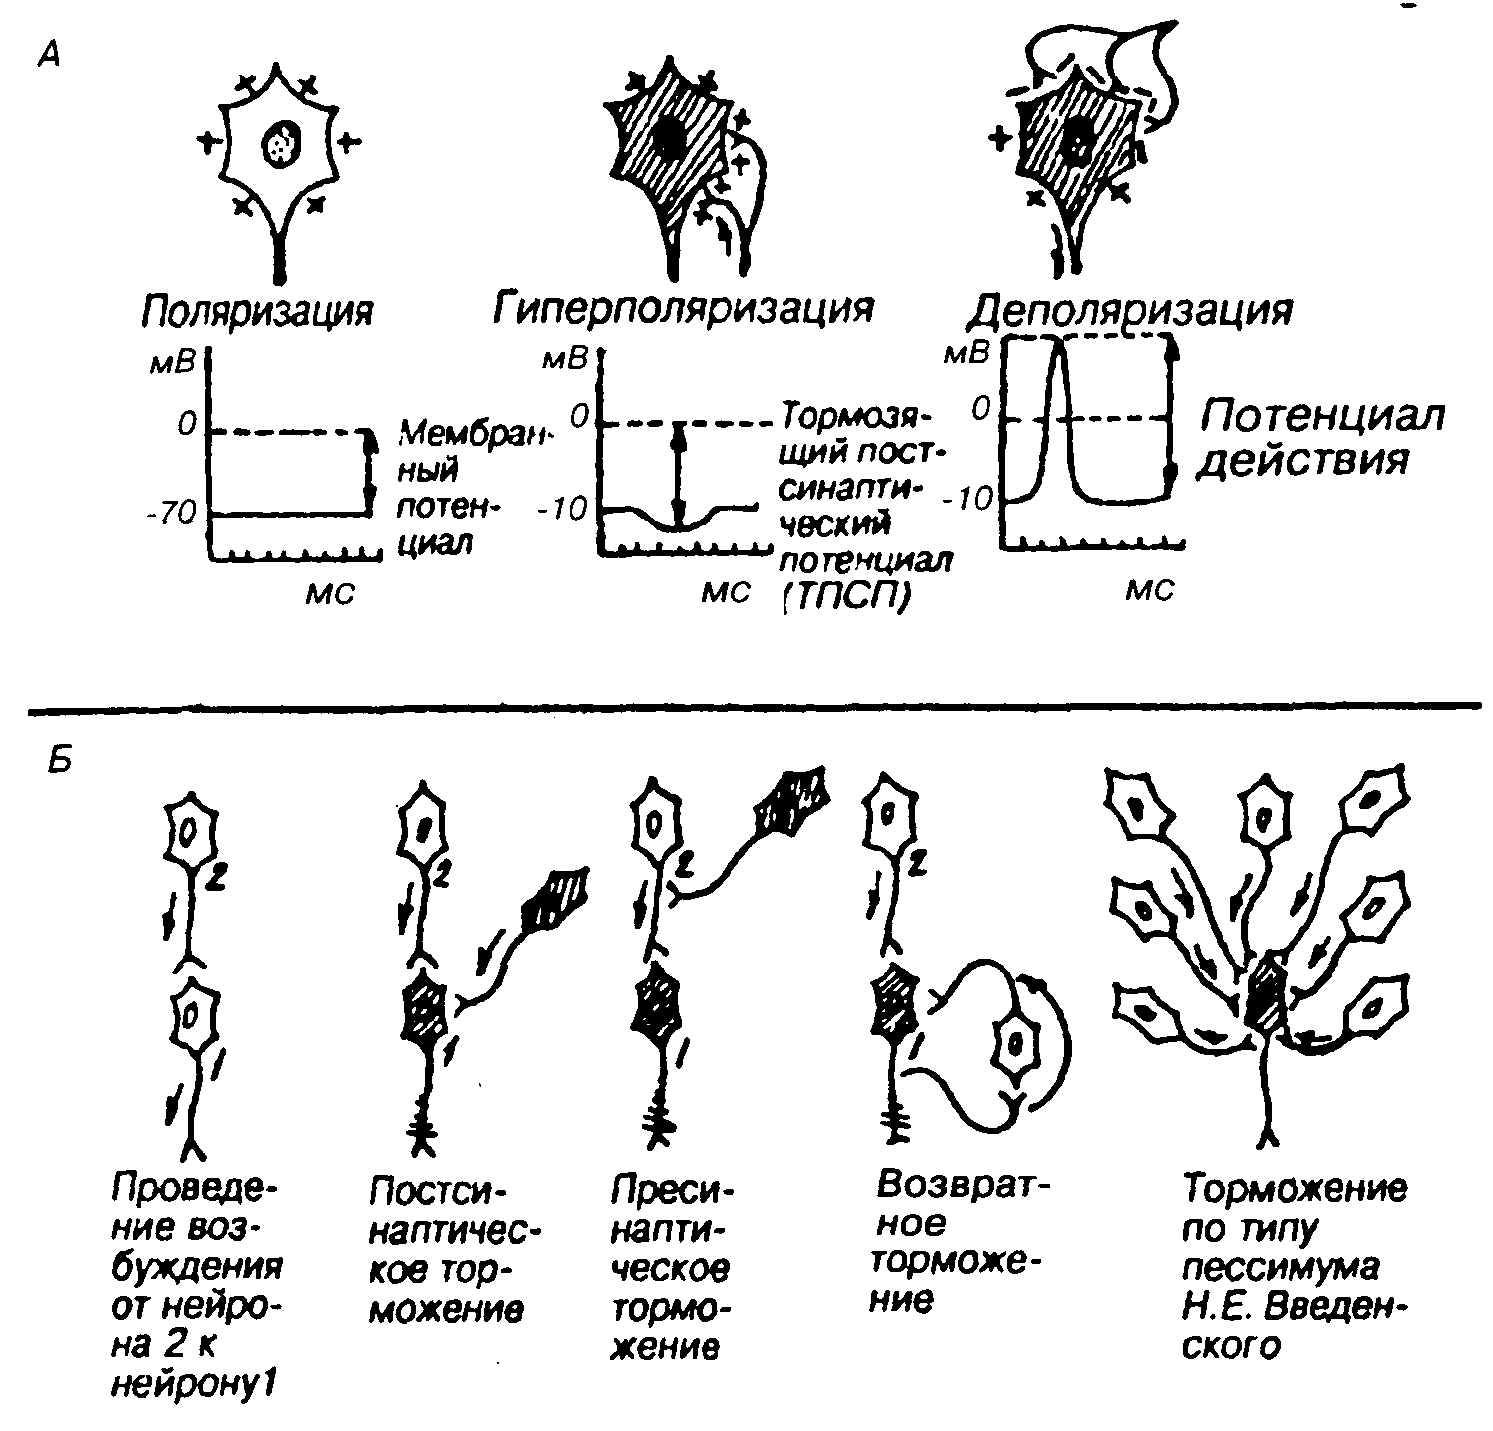 Возможные
состояния нейрона(А) и виды
внутрицентрального торможения (Б)
Пессимальное торможение — торможение, которое развивается в возбуждающих синапсах в результате сильной деполяризации постсинаптической мембраны под действием множественной импульсации.
Классификация рецепторов. Общие механизмы возбуждения рецепторов, биоэлектрические явления в них (рецепторный и генераторный потенциалы).
По характеру ощущений, возникающих при их раздражении: зрительные, слуховые, обонятельные, вкусовые, осязательные рецепторы, термо-, проприо- и вестибулорецепторы и рецепторы боли. По расположению: экстерорецепторы и интерорецепторы. К экстерорецепторам относятся слуховые, зрительные, обонятельные, вкусовые, осязательные. К интерорецепторам относятся вестибуло- и проприорецепторы, а также висцерорецепторы. По характеру контакта со средой: дистантные, получающие информацию на расстоянии от источника раздражения (зрительные, слуховые и обонятельные), и контактные - возбуждающиеся при непосредственном соприкосновении с раздражителем (вкусовые, тактильные). По природе раздражителя: 1- фоторецепторы, механорецепторы; 2 - хеморецепторы; 3 - терморецепторы; 4 - болевые (ноцицептивные) рецепторы. По механизму активации: первично-чувствующие (обоняния, тактильные и проприорецепторы) и вторично- чувствующие (вкуса, зрения, слуха, вестибулярного аппарата). Механизм возбуждения рецепторов. 1) взаимодействие стимула с рецепторной белковой молекулой, которая находится в составе клеточной мембраны рецепторной клетки; 2) внутриклеточные процессы усиления и передачи сенсорного стимула в пределах рецепторной клетки; 3) открывание находящихся в мембране рецептора ионных каналов, через которые начинает течь ионный ток: Na+ - деполяризация, К+-гиперполяризация клеточной мембраны рецепторной клетки (возникновение рецепторного потенциала). В первично-чувствующих рецепторах этот потенциал действует на наиболее чувствительные участки мембраны, способные генерировать ПД — электрические нервные импульсы. Во вторично-чувствующих рецепторах рецепторный потенциал вызывает выделение квантов медиатора из пресинаптического окончания рецепторной клетки. Медиатор (например, АХ), воздействуя на постсинаптическую мембрану первого нейрона, изменяет ее поляризацию (генерируется постсинаптический потенциал). Постсинаптический потенциал первого нейрона сенсорной системы называют генераторным потенциалом, так как он вызывает генерацию импульсного ответа. В первично- чувствующих рецепторах рецепторный и генераторный потенциалы — одно и то же.
Биоэлектрические явления в рецепторах (рецепторный и генераторный потенциалы). Рецепторный потенциал — изменение напряжения, возникающее в рецепторе при действии адекватного стимула вследствие изменения ионной проницаемости рецепторной мембраны, градуально зависящее от интенсивности стимула.
Генераторный потенциал — изменение напряжения в рецепторе, возникающее вследствие распространения рецепторного потенциала к центральным и проксимальным отделам рецепторной клетки и порождающее потенциалы действия (нервные импульсы).
В первичночувствующих рецепторах рецепторный потенциал возникает в дистальных отделах (терминальных ветвлениях) дендрита, генераторный потенциал — в области аксонного холмика (зрительные, обонятельные рецепторы) или в первом перехвате Ранвье афферентного волокна (соматические рецепторы).
Во вторичночувствующих рецепторах рецепторный потенциал возникает в рецепторной клетке, а генераторный потенциал — в окончании афферентного волокна. Некоторые авторы в этом случае считают, что генераторный потенциал является совокупностью процессов, протекающих в базальной части рецепторной клетки и приводящих к выбросу медиатора, воздействующего на мембрану афферентного волокна.
Несмотря на то, что рецепторный и генераторный потенциал в ряде случаев совпадают по принадлежности (первичные рецепторы), они различаются по локализации и природе возникновения: причиной появления рецепторного потенциала является непосредственно сенсорное воздействие, генераторный потенциал возникает вследствие распространения рецепторного потенциала, не зависит от других факторов и развивается в области, где возможна генерация распространяющихся потенциалов .
Свойства рецепторных потенциалов:
1. Образуются в месте действия стимула.
2. Градуальность: стимулами разной интенсивности большинство рецепторов деполяризуется (или гиперполяризуется, как в случае палочек и колбочек) неодинаково. Хотя амплитуда потенциала определенным образом отражает силу стимуляции, последняя не служит источником энергии для такого изменения клетки. Единственная функция стимула - управление ионными токами через мембрану.
3. Локальность: распространяется по клетке электротонически, а не проводится активно по мембране.
4. Рецепторные потенциалы могут подвергаться пространственной и временной суммации. Таким образом, у рецепторных потенциалов много общих свойств с локальными синаптическими токами центральных нейронов.
Свойства генераторных потенциалов:
1. Образуются в месте генерации потенциала действия (аксонный холмик, первый перехват Ранвье).
2. Является результатом пространственной и временной суммации рецепторных потенциалов.
3. Градуален: рецепторным потенциалам (стимулам) разной интенсивности соответствует большее или меньшее значение. Большей величине генераторного потенциала соответствует большая частота формирования потенциала действия (следования импульсов).
4. Локальный, но является источником потенциала действия распространяющегося по мембране активно.
Различение сигналов. Закон Вебера-Фехнера. Адаптация сенсорной системы.
Закон Вебера — Фехнера — эмпирический психофизиологический закон, заключающийся в том, что интенсивность ощущения пропорциональна логарифму интенсивности стимула. В ряде экспериментов, начиная с 1834 года, Э. Вебер показал, что новый раздражитель, чтобы отличаться по ощущениям от предыдущего, должен отличаться от исходного на величину, пропорциональную исходному раздражителю. На основе наблюдений Г. Фехнер в 1860 году сформулировал «основной психофизический закон», по которому сила ощущения p пропорциональна логарифму интенсивности раздражителя S: где S — значение интенсивности раздражителя. S0 — нижнее граничное значение интенсивности раздражителя: если S < S0, раздражитель совсем не ощущается. k - константа, зависящая от субъекта ощущения. Так, люстра, в которой 8 лампочек, кажется нам настолько же ярче люстры из 4-х лампочек, насколько люстра из 4-х лампочек ярче люстры из 2-х лампочек. То есть количество лампочек должно увеличиваться в одинаковое число раз, чтобы нам казалось, что прирост яркости постоянен. И наоборот, если абсолютный прирост яркости (разница в яркости «после» и «до») постоянен, то нам будет казаться, что абсолютный прирост уменьшается по мере роста самого значения яркости. Например, если добавить одну лампочку к люстре из двух лампочек, то кажущийся прирост в яркости будет значительным. Если же добавить одну лампочку к люстре из 12 лампочек, то мы практически не заметим прироста яркости. Можно сказать и так: отношение минимального приращения силы раздражителя, впервые вызывающего новые ощущения, к исходной величине раздражителя есть величина постоянная. Закон Вебера — Фехнера можно объяснить тем, что константы скорости химических реакций, проходящих при рецептировании, нелинейно зависят от концентрации химических посредников физических раздражителей или собственно химических раздражителей.
Адаптация сенсорной системы
Сенсорная система обладает способностью приспосабливать свои свойства к условиям среды и потребностям организма. Сенсорная адаптация – это общее свойство сенсорных систем, заключающееся в приспособлении к длительно действующему (фоновому) раздражителю. Существует общая, или глобальная, и локальная, или селективная адаптация. Общая, или глобальная, адаптация проявляется в снижении абсолютной и повышении дифференциальной чувствительности всей сенсорной системы. Субъективно адаптация проявляется в привыкании к действию постоянного раздражителя (например, мы не замечаем непрерывного давления на кожу привычной одежды). Локальная, или селективная, адаптация сводится к снижению чувствительности не всей сенсорной системы, а какой-либо её части, подвергнутой длительному действию стимула.
Адаптационные процессы начинаются на уровне рецепторов, охватывая и все нейронные уровни сенсорной системы. Адаптация слаба только в вестибуло- и проприорецепторах. По скорости данного процесса все рецепторы делятся на быстро- и медленно адаптирующиеся. Первые после развития адаптации практически не посылают в мозг информации о длящемся раздражении. Вторые эту информацию передают в значительно ослабленном виде. Когда действие постоянного раздражителя прекращается, абсолютная чувствительность сенсорной системы восстанавливается. Так, в темноте абсолютная чувствительность зрения резко повышается.
В сенсорной адаптации важную роль играет эфферентная регуляция свойств сенсорной системы. Она осуществляется за счёт нисходящих влияний со стороны более высоких на более низкие её отделы. Происходит как бы перенастройка свойств нейронов на оптимальное восприятие внешних сигналов в изменившихся условиях. Кроме того, состояние разных уровней сенсорной системы контролируется также ретикулярной формацией, включающей их в единую систему, интегрированную с другими отделами мозга и организма в целом. Эфферентные влияния в сенсорных системах чаще всего имеют тормозный характер, т.е. приводят к уменьшению их чувствительности и ограничивают поток афферентных сигналов.
Общее количество эфферентных нервных волокон, приходящих к элементам какого-либо нервного слоя, как правило, во много раз меньше количества его собственных нейронов. Это определяет важную особенность эфферентного контроля в сенсорных системах: его широкий и диффузный характер. Речь идёт об общем снижении чувствительности значительной части нейронного слоя.
Периферический (рецепторный) отдел обонятельной сенсорной системы. Механизм возбуждения обонятельных рецепторов.
Периферический отдел обонятельного анализатора.
Периферическая часть обонятельного анализатора расположена в слизистой оболочке верхнего носового хода и противолежащей части носовой перегородки. Она представлена обонятельными и опорными клетками. Вокруг каждой опорной клетки расположено 9—10 обонятельных. Обонятельные клетки покрыты волосками, которые представляют собой нити длиной 20—30 мкм. Они сгибаются и разгибаются со скоростью 20—50 раз в 1 мин. Внутри волосков расположены фибриллы, которые обычно заходят в утолщение — пуговку, имеющуюся на конце волоска. В теле обонятельной клетки и в ее периферическом отростке расположено большое количество микротрубочек диаметром 0,002 мкм, предполагают, что они осуществляют связь между различными органеллами клетки. Тело обонятельной клетки богато РНК, которая образует возле ядра плотные скопления. После воздействия паров пахучих веществ происходит их разрыхление и частичное исчезновение, что говорит о том, что функция обонятельных клеток сопровождается изменениями в распределении РНК и в ее количестве.
Обонятельная клетка имеет два отростка. Один из них через отверстия продырявленной пластинки решетчатой кости направляется в полость черепа к обонятельным луковицам, в которых возбуждение передается на расположенные там нейроны. Их волокна образуют обонятельные пути, которые подходят к различным отделам ствола мозга. Корковый отдел обонятельного анализатора находится в гиппокамповой извилине и в аммоновом роге.
Второй отросток обонятельной клетки имеет форму палочки шириной 1 мкм, длиной 20—30 мкм и заканчивается обонятельным пузырьком — булавой, диаметр которой 2 мкм. На обонятельном пузырьке расположено 9—16 ресничек.
Механизм возбуждения обонятельных рецепторов.
Обонятельные рецепторы располагаются в слизистой оболочке верхнего отдела полости носа (рис. 331). Они представляют собой особые нервные обонятельные клетки, периферические отростки которых (дендриты) короткие, палочковидные и снабжены чувствительными волосками. Центральные отростки (нейриты) более тонкие, направляются через решетчатую пластинку и продолжаются далее в виде волокон обонятельного нерва. В полости черепа обонятельные нервы входят в обонятельную луковицу, лежащую на основании черепа и составляющую особую долю мозга.
Обонятельные раздражения по волокнам обонятельного тракта передаются в центр обоняния, лежащий рядом с центром вкуса в коре височной доли головного мозга (часть крючковидной извилины морского коня, отчасти аммонов рог).
Проводниковый и корковый отделы обонятельной сенсорной системы.
Проводниковый отдел обонятельного анализатора.
Проводниковый отдел представлен проводящими нервными путями в виде обонятельного нерва, ведущие к обонятельной луковице (образование овальной формы). Проводниковый отдел. Первым нейроном обонятельного анализатора следует считать нейросенсорную или нейрорецепторную клетку. Аксон этой клетки образует синапсы, называемые гломерулами, с главным дендритом митральных клеток обонятельной луковицы, которые представляют второй нейрон. Аксоны митральных клеток обонятельных луковиц образуют обонятельный тракт, который имеет треугольное расширение (обонятельный треугольник) и состоит из нескольких пучков. Волокна обонятельного тракта отдельными пучками идут в передние ядра зрительного бугра.
Корковый отдел обонятельного анализатора.
Ядро обонятельного анализатора у человека расположено в образованиях старой коры, а именно в глубине борозды аммонова рога. Ядра анализатора обоих полушарий связаны друг с другом проводящими путями. К обонятельному анализатору следует отнести и некоторые соседние образования межуточной коры. Прилегающие участки островковой области, лежащие в глубине сильвиевой борозды, по-видимому, имеют то же значение для обоняния, каким обладают проекционно-ассоциативные поля 18 и 19 для зрительной функции.
Есть основания полагать, что к обонятельному анализатору относится и небольшой участок краевой области, расположенной на внутренней поверхности полушария в виде узкой полоски вдоль мозолистого тела. От коркового отдела обонятельного анализатора идут эфферентные пути к нижележащим отделам мозга, в частности к сосковым телам подбугровой области и к уздечке надбугорья. Через эти пути осуществляются корковые рефлексы на обонятельные раздражения.
Периферический (рецепторный) отдел вкусовой сенсорной системы. Механизм возбуждения вкусовых рецепторов.
Периферический отдел вкусового анализатора.
Периферический отдел вкусового анализатора представлен вкусовыми луковицами круглой или овальной формы, которые расположены главным образом в сосочках языка. Различают сосочки желобоватые, листовидные и грибовидные. В меньшем количестве вкусовые луковицы встречаются на мягком небе и задней стенке глотки.Вкусовая луковица имеет овальную форму и состоит из опорных и рецепторных вкусовых клеток. Рецепторные вкусовые клетки усеяны на своем конце микроворсинками, которые называют еще вкусовыми волосками Длина ворсинок – около 2 мкм, диаметр – около 0,2 мкм. Они выходят на поверхность языка через вкусовые поры.
На вкусовой клетке имеется большое число синапсов, которые образуют волокна барабанной струны и языкоглоточного нерва. Волокна барабанной струны (ветвь лицевого нерва) подходят ко всем грибовидным сосочкам, а волокна языкоглоточного нерва – к желобоватым и листовидным. Корковый конец вкусового анализатора находится в гиппокампе, парагиппокамповой извилине и в нижней части заднецентральной извилины.
Вкусовые клетки непрерывно делятся и непрерывно гибнут. Особенно быстро происходит замещение клеток, расположенных в передней части языка, где они лежат более поверхностно. Замена клеток вкусовой почки сопровождается образованием новых синаптических структур.
Механизм возбуждения вкусовых рецепторов.
Как известно, все пищевые вещества в зависимости от вида вкусового ощущения, вызываемого у человека, делятся на четыре основные группы — сладкие, соленые, кислые и горькие. Это объясняется наличием соответственно четырех видов вкусовых рецепторных клеток. Благодаря использованию микроэлектродной техники показано, что одни вкусовые почки реагируют только на горькие вещества, другие — на соленые, третьи — на кислые, четвертые — на сладкие. Рецепторы, чувствительные к разным веществам, неравномерно распределены на поверхности языка. Так, «сладкочувствительные» рецепторы расположены на кончике языка, который особенно чувствителен к сладким веществам, где в основном представлены грибовидные сосочки. Рецепторы, воспринимающие соленый вкус (это, как правило, некоторые соли, в том числе хлористый натрий), разбросаны по всей поверхности языка, т.е. они не имеют «своей» области. Рецепторы, возбуждение которых дает ощущение кислого (главным образом, за счет воздействия свободных водородных ионов), в основном находятся в средней части краев языка (листовидные сосочки). Рецепторы, возбуждение которых дает ощущение горького (при воздействии, например, хинина), находятся, в основном, близ корня языка (желобоватые сосочки).
В основе вкусовой рецепции лежит процесс взаимодействия молекул вкусового вещества с белками-рецепторами, которые представляют собой стереоспецифические участки поверхностной мембраны микроворсинок вкусовых рецепторных клеток. Этапы первичного преобразования химической энергии вкусовых веществ в энергию нервного возбуждения вкусовых рецепторов еще не известны. Можно лишь предположить, что (как и при обонятельной рецепции) активация белка-рецептора должна приводить (за счет каскада промежуточных реакций) к деполяризации рецепторной клетки. Это приведет к выделению медиатора, возбуждающего дендриты вкусовых афферентных нейронов, тела которых расположенных в соответствующих ганглиях головы.