Материал: Баскин Л.М., Чикурова Е.А. Поведение крупного рогатого скота
связано с полудиким образом жизни бетизу, которые пасутся в лесах и избегают человека.
Высота в холке у быков до 130 см и до 120 см у коров. Средний вес быков от 400–500 кг и коров 350 кг (Gómez Fernandez, Amezaga, 2003).
Передняя часть туловища более развита, чем задняя, такое сложение заметнее у самцов. Общее сложение грацильное, характерен высокий постав головы и хвоста, имеется небольшой подгрудок. Масть светло-ры- жая, соловая, кожа слабо пигментированная, копыта и нос – розовые. При рождении масть телят – пятнистая (Gómez Fernandez et al., 1997). К двухмесячному возрасту телята приобретают масть как у взрослых. Морда и лоб относительно узкие. Рога лировидные, серповидные, скобовидные, длина рогов изредка превышает длину головы. Вымя небольшое, покры-
тое шерстью (Seiliez, 1999).
В полувольных популяциях отелы у самок происходят раз в два года, большинство отелов приходится на март (Gómez Fernandez et al., 1997), следовательно, гон происходит в начале лета.
Средний возраст первого отела – 3 года, хотя отмечены первые отелы и в 5–6 лет (Gómez Fernandez et al., 1997). Перед родами корова покидает стадо и прячется в зарослях кустарника; присоединяется к стаду только через несколько дней после отела. Теленок следует за матерью до 15 месяцев, что связано с высокими рисками в горах. Если теленок отобьется от матери до годовалого возраста, то, скорее всего, погибнет. Ослабление контакта мать-теленок происходит постепенно, но его резкое прерывание происходит во время гона в июне, когда корову начинают преследовать быки. Однако связь коровы со своими дочерьми оказывается достаточно крепкой для того, чтобы после того, как гон прошел, они вновь воссоеди-
нились (Seiliez, 1999).
Средняя продолжительность жизни 14–15 лет, за это время корова те-
лится не более 5–6 раз (Gómez Fernandez et al., 1997).
Участокобитаниябетизусоставляетнесколькоквадратныхкилометров, дажеприбеспокойствеживотныенеуходятдалекоотпривычныхместобитания.ЗимойКРСпридерживаетсясолнечныхсклонов,летомуходятвлеса. Весной, перед таяньем снега бетизу спускаются к подножию гор; чем жарче становится, тем выше они поднимаются в горы. При переходах члены стада идут гуськом, годами придерживаются старых троп (Seiliez, 1999).
Бетизу издают два типа мычания – отрывистое и долгое, что, вероятно, помогает поддерживать членам одной группы контакт при ограниченной видимости в горах и лесах (Seiliez, 1999).
Этапримитивнаяпородапредставляетисторическуюитрадиционную ценность в горах басков, так как обладает способностью жить на бедных пастбищах и в горах (Gómez Fernandez, Amezaga, 2003).
196
На одичавших животных традиционно охотятся с собаками. Также представители породы участвуют в боях быков с собаками (Gómez Fernandez et al., 1997). Для добычи мяса полувольных животных также применяется отстрел (agraria.org).
Порода находится под защитой испанского министерства сельского хозяйства.Породурекомендуютдляразведениянатруднодоступныхучасках в горах, и для содержания в национальных парках из-за неприхотливости и медленной скорости размножения (Gómez Fernandez et al., 1997).
Порода мостренца (Mostrenca) в одичавшем состоянии обитает в заповедние Доньяна на заболоченных и заросших кустарником участках, вдоль реки Гуадимар (Guadiamar). Порода также называется марисмена
(Marismeňa).
Скот живет полностью на подножном корме и не получает никакой дополнительной подкормки.Один раз в год животных из заповедника отлавливают для проведения санитарных и зоотехнических мероприятий (Fundаtion BBVA...). По другим данным, КРС обходится вовсе без вмешательства человека (Lazo, 1994, 1995). Большую часть информации о популяции мостренцы нам удалось почерпнуть из работ Лазо (Lazo, 1992, 1994, 1995; Lazo et al., 1995).
История возникновения. В местности Доньяна скот породы мостренца существует, по крайней мере, с XIII в. При этом традиционно контроль за стадами был минимальным (Lazo, 1995), т.е. сводился в основном к добыче молодых особей на мясо, как это и было в 1980-е гг. (Lazo, 1994).
Это примитивная местная порода, долгое время разводимая «в себе», без влияния других европейских пород (Martinez et al., 2005). Обнаружено влияние, вероятно, давнее, африканских зебу B. indicus (Martin-Burriel etal.,2011).Самоназвание«мостренца»–обозначает«дикий,безхозный»
(Lazo, 1994).
Животные очень разные по размеру: вес от 240–510 кг у самок и у самцов 450–750. И самцы и самки имеют большие серповидные и лировидные рога, которые могут быть опущены вниз до горизонтального положения. Длина рога больше длины головы животного или равна ей.
Типичная масть – красная, темно-рыжая, но также распространена черная, каштановая, белая, встречаются животные с белыми и темными пятнами различного размера (Fundation BBVA...).
Заповедник Доньяна (северо-запад Испании 37°N, 6°E) площадью 67 км2 имеет трапециевидную форму и окружен со всех сторон забором с колючей проволокой (Lazo, 1992). Климат типично средиземноморский с жарким сухим летом и мягкой, влажной зимой.
197
Взаповеднике встречаются четыре основных типа биотопов: сосновыелеса,песчаныедюны,кустарниковыезарослииболота,сразнообразной травянистой растительностью (Lazo, 1994). Стада мостренцы занимают не весь заповедник; площадь самого большого участка, на котором живут стада, составляет только 36% доступной территории, а всего ими используется около 73% площади заповедника. Участки, где мостренца практическиневстречается,восновномпокрытыксерофитнойрастительностью, которая не привлекательна для КРС. Площади участков обитания мостренцы меньше, чем у диких бычьих (гаура, зубра, бизона, африканского буйвола), но больтиносимы (Lazo, 1995).
Заливные и сухие луга (между зарослями кустарника и песчаными дюнами) – излюбленные пастбища КРС, где в среднем в году наблюдается наибольшаяплотностьживотных(26,2и20,2особи/км2 соответственно).В сухой сезон мостренцу привлекают болота. Плотность животных на береговых болотах ла Вера в Доньяна в среднем составляет 8,3 особи/км2, но этот показатель меняется в зависимости от сезона: в ноябре – январе он составляет2,8,вфеврале–марте8,9,вмае–октябре10,7(Lazoetal.,1995).
Впериод с 1987 по 1989 гг. в популяции было около 140 животных старше одного года. В популяции немного преобладают взрослые самки (56%).Взрослыесамцысоставляют9%популяции,молодыесамцы(старше 4 лет) 20% и молодые самки (старше 2 лет) 15% (Lazo, 1994).
Вся популяция представлена четырьмя основными стадами (в работах Лазо они обозначены LNG, MTZ, PLS, QMD), которые представляют собой семейные группы самок с телятами и подростками. Самцы по достижении трехлетнего возраста уходят из стада и живут отдельно или в холостяковых группах (3–5 животных) (Fundation BBVA…).
Состав каждого стада постоянен, члены одного стада как правило остаются в нем же, не переходят в другие стада (табл. 12). В 2,9% случаев встречаются стада, сформированные при совместной пастьбе двух групп. При образовании смешанных групп из двух стад агонистические взаимодействия между коровами, принадлежащими к разным стадам, резко возрастали. В основном агрессия выражалась в боданиях. После битвы одна их самок покидала место происшествия. Больше половины случаев смешения наблюдали между двумя стадами LNG и QMD (55,6%, N=52). Не отмеченосмешениетрехстадодновременно.Влияниясезонанаэтотпроцесс не отмечено.
Взрослые самцы обычно находятся отдельно от стада и присоединяются к ним временно, на период гона, или когда какая-нибудь из самок приходит в охоту вне этого периода (Lazo, 1994). Из пяти доминантных самцовтроеприсоединялисьнапериодгонактремразнымстадам, адвое
198
Таблица 12. Половозрастная структура четырех стад скота породы мостренца в заповеднике Доньяна осенью 1989 г. (по: Lazo, 1994)
Стада |
LNG |
MTZ |
PLS |
QMD |
|
|
|
|
|
Молодые самки |
4 |
8 |
5 |
4 |
|
|
|
|
|
Половозрелые самки |
14 |
32 |
20 |
13 |
|
|
|
|
|
Молодые самцы |
6 |
17 |
1 |
2 |
|
|
|
|
|
Половозрелые самцы |
3 |
5 |
2 |
3 |
|
|
|
|
|
Телята-сеголетки |
13 |
19 |
15 |
5 |
|
|
|
|
|
предпочитали присоединяться к стадам, которые оказывались ближе к их участкам обитания. Чем выше статус самца, тем меньше его участок перекрывается с участками других высокоранговых самцов.
Молодые, низкоранговыесамцы, еще не участвующиев размножении, ноуже ушедшиеизматеринского стада, имеют сильноперекрывающиеся участки обитания (рис. 29). Наибольшая скорость перемещения взрослых самцов отмечена весной, перед гоном, после гона активность их падает. У молодых, еще не участвующих в размножении самцов такого не отмечено (Lazo, 1995).
Площадиучастковобитанияразличаются:1243га(PLS),1299га(LNG), 2034га(QMD)и2635га(MTZ).Ихиспользованиезависитотсезона(рис. 30). В среднем, участки обитания стад перекрывались с участками соседей на треть (31%), при этом участки PLS-QMD перекрывались на 15%, а участки LNG-QMD на 55%. Степень перекрывания меняется от сезона к сезону, а место перекрывания разные стада обычно использовали в разные сезоны года. Пастьба на одном участке у двух стад отсутствовала зимой и весной. Расстояние между стадами летом и осенью было достоверно меньше, чем зимой и весной.
Для этой популяции характерна удивительная стабильность стад, которая обычно не отмечается в стадах одичавшего скота, да и у диких бычьих тоже. Профессор Лазо сравнивает такую стабильность стад мостренцы со стадами африканского буйвола (Lazo, 1994).
Гон приходится на время между июнем и августом, хотя спаривания могутпроисходитьивтечениевсегогода(Lazo,1995).Беременностьдлится девять месяцев, пик рождаемости приходится на весну (март-май). Коровы могут приносить телят как ежегодно, так и с перерывами в год и болеемеждуродами.Около75%отеловприходятсяна4–6месяцеввгоду. При этом внутри стад большинство отелов приходятся на более краткие периоды от двух до четырех месяцев, возможно, что такие относительно близкиеповремениотелыиспособствуютустойчивостистада(Lazo,1994).
199
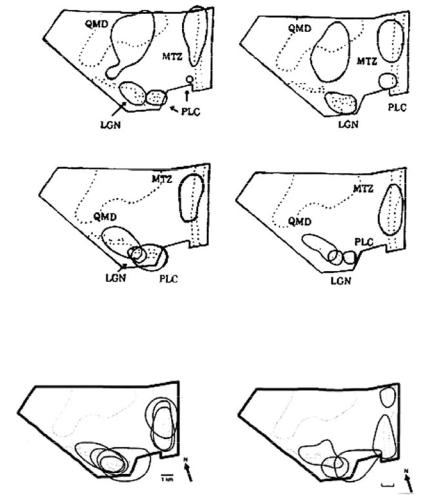
зима |
весна |
|
|
лето |
осень |
Рис. 29. Участки обитания четырех стад скота породы мостренца в заповеднике Доньяна, Испания (по: Lazo, 1994)
Рис. 30. Участкиобитанияа) семимолодыхсамцов, b) пятивзрослыхсамцов
(по: Lazo, 1995).
Однако мы предполагаем, что не синхронизация гона и отела способствует объединению стада, а наоборот, тесные социальные связи в стаде способствуют синхронизации гона и отела под воздействием феромонов, как это было показано для многих видов животных (Зинкевич, 2003).
200