Материал: Меженська Л.О., Меженський В.М. Рід Глід (Crataegus L.) в Україні інтродукція, селекція, еколого-біологічні особливості
ція Malus залишається проблематичною навіть на рівні ДНК, про що свідчать різні трактування роду одними й тими ж авторами в одночасно опублікованих працях (Phipps et al., 1991; Robertson et al., 1991). Установлено, що роди Photinia
і Pyracantha є поліфілітичними.
Таким чином, проблема родового розмежування яблуневих остаточно не вирішена. Існують численні природні та штучні міжродові гібриди: ×Amelasorbus (= Amelanchier × Sorbus), ×Aroniaria Mezhenskyj (= Aria × Aroniа), ×Ariosorbus Koidz. =( Aria × Sorbus), ×Chamaearia Mezhenskyj (= Aria × Chamaemespilus), ×Chamariosorbus Mezhenskyj (= Aria × Chamaemespilus × Sorbus), ×Cydolus Rudenko ex Mezhenskyj (= Cydonia × Malus), ×Cydosorbus Mezhenskyj (= Cydonia × Sorbus), ×Crataemespilus (= Crataegus × Mespilus), ×Pyracomeles (= Osteomeles × Pyracantha), ×Pyralus Mezhenskyj (= Malus × Pyrus), ×Pyraria A.Chev. (= Aria × Pyrus), ×Pyromeles Mezhenskyj (= Chaenomeles
×Pyrus), ×Pyronia (= Cydonia × Pyrus), ×Pyrosorbaronia Mezhenskyj (= Aronia
×Pyrus × Sorbus), ×Pyrosorbus Mezhenskyj (= Sorbus × Pyrus), ×Rhaphiobotrya Coombes (= Eriobotrya × Rhaphiolepis), ×Sorbaronia (= Aronia ×Sorbus), ×Sorbocotoneaster Pojark. (= Cotoneaster × Sorbus), ×Tormaria (Májovský & Bernátová) Mezhenskyj (= Aria × Torminalis), ×Tormariosorbus Mezhenskyj (= Aria × Sorbus
×Torminalis), Cydonia × Pseudocydonia (Rehder, 1940; Пояркова, 1953; Weber, 1964; Krüssmann, 1978; Курьянов, 1983; Robertson et al., 1991; Меженский, 2005; Coombes, Robertson, 2008; Меженський та ін., 2012 ). Повідомлялося про наяв-
ність гібридів Cotoneaster × Pyracantha (Silva, 1968; Egolf, Anne, 1995), ×Pera-
vаesia (= |
Pyracantha × Stranvesia) або, внаслідок таксономічних змін, |
Pyracantha |
× Photinia(Tomas, 1992). Гібриди можуть мати триродове похо- |
дження: ×Chamariosorbus, ×Pyrosorbaronia, ×Tormariosorbus (Меженський та ін., 2012) та Aria × Pyrus × Amelanchier (Krüssmann, 1976) або, вірогідніше, Aria × Sorbus × Amelanchier (Sax, Sax, 1947; Rehder, 1949).
1.2. Філогенія роду Crataegus
Наприкінці крейдяного періоду і, особливо, в палеогені відбувалася відносно швидка модернізація родового складу квіткових рослин. В еоценових флорах більшість видів належить до сучасних родів. Багато з них мають визначені зв'язки з сучасними видами, що підтверджується дослідженням викопних відбитків листків та даними діаспорового аналізу. Флори олігоцену складалися вже майже виключно із сучасних родів, а неогенові флори наближені до сучасних навіть за видовим складом. У міоцені і, особливо, пліоцені флори покритонасінних настільки модернізувалися, що стали практично подібними до сучас-
10
них. Рослинність третинного періоду, особливо неогену, є найбільш наближеною до сучасної, що свідчить про екологічну близькість видів, які їх складають. До кінця міоцену – початку пліоцену велика верхньокрейдяна Бореальна бота- ніко-географічна область перетворилася у третинну Бореальну область, до складу якою поряд з іншими входив рід Crataegus (Тахтаджян, 1970).
Рід Crataegus сформувався у високих широтах Євразії за сприятливих кліматичних умов (Palmer, 1932б). Звідси ще до початку третинного періоду види глоду поширилися далі на південь північної півкулі. Про давнє виокремлення роду Crataegus свідчить його циркумполярне поширення, тоді як споріднені роди Cotoneaster, Mespilus, Osteomeles та Pyracantha трапляються тільки в Ста-
рому Світі. У Північній Америці, починаючи з крейдяного періоду, розвивалася флора подібна до флори Східної Азії, які були одноріднішими, ніж тепер. Тільки з аридізацією внутрішньої частини Північної Америки там розпочалося підсилене видоутворення Crataegus (Криштофович, 1957). Найдавніші відбитки листків та викопні рештки плодів Crataegus належать кінцю олігоцену
(MacGinitie, 1933; Oliver, 1934; Hickey, 1984; Wolfe, Wehr, 1988; DeVore, Pigg, 2007). Олігоценовий північноамериканський C. newberty близький до сучасного азійського C. pinnatifida (Lakhanpal, 1958).
Африкан Криштофович (1957) вважає, що викопні рештки представників Rosaceae мало дають для філогенії родини, за виключенням Crataegus, який достовірно відомий з крейдяного періоду. Відбитки листків C. praemonogyna знайдено в сарматській флорі, що пов'язана з епохою раннього міоцену. Вони подібні до листків сучасних видів секції Crataegus. До цієї ж епохи належать відбитки C. melanocarpa-maeotica, C. oxyacanthoides, С. sarmatica. Ці види гл о-
ду були колись поширені на території сучасної України (Криштофович, 1957; Баранов, 1959).
Вірогідно, у третинний період у широколистяних дубових лісах передльодовикової смуги сформувалися попередники сучасних європейських видів
С. nigra, С. pentagyna, С. rhipidophylla тощо (Русанов, 1965). Вони були спорід-
нені з субтропічними видами глоду та північноамериканським С. marshallii, С. spathulata та С. uniflora. Розсічені листки, більша кількість тичинок і маточок притаманна примітивнішим видам (Schneider, 1906).
У четвертинному періоді клімат коливався від холодного до м'якого, льодовики багато разів наступали і відступали. Услід за льодовиками мігрувала рослинність. У цей час з третинних розрізанолистих глодів сформувалися цілолисті північноамериканські види. Появі і розвиткові різноманітних груп північноамериканських глодів сприяли численні міграції з півночі на південь, у зворотному та інших напрямках. Аналогічні міграції, пов'язані з переміщенням льодовиків, відбувалися й в Євразії, але, вірогідно, відносно одноманітні
11
ксерофільні умови менше сприяли видоутворювальним процесам у глодів. Європейські глоди в льодовикові епохи відходили до давнього Середземномо- р'я, де в горах на них сильно вплинули ксерофітні умови півдня (Русанов, 1965). Про походження цілолистих північноамериканських видів від розсіченолистих свідчить наявність у перших розсічених листків на поростевих пагонах. У подальшому з них виокремилися цілолисті види з довгими колючками, що не мають розсічених листків на поростевих пагонах (Циновскис, 1971).
Федір Русанов (1965) зазначає що викопні решки глодів у Європі, Азії і Північній Америці свідчать про глибоко розрізані листки у видів третинного періоду. З філогенетичної точки зору цікавість становлять види секції Sanguinea, яка містить низку видів з майже цільними листками і доволі великими безлистими колючками. Усі види секції мають на поростевих пагонах глибокорозрізні листки. У більшості видів плоди помаранчеві або темні, чорні, серед них C. chlorocarpa подібний до північноамериканського темноплодого C. douglasii. Останньому притаманне повторне осіннє цвітіння, яке характерне для видів серії Sanguinea, але не відоме в інших американських видів. Листки С. altaica var. incisa настільки глибокорозсічені, що їх важко відрізнити від листків С. pinnatifida або деяких європейських видів. За морфологією колючок C. kansuensis займає проміжне положення між європейськими та американськими видами, маючи як доволі великі безлисті колючки так й короткі гілочки з листками та гострою верхівкою. Таким чином, види сходу Євразії є нащадками давніх типів, які з одного боку мають родинні зв'язки з північноамериканськими видами, а з іншого – побічно споріднені з давніми і сучасними видами з розрізаними листками, що поширені в Європі, на Кавказі і Центральній Азії (табл. 1).
Якщо вважати найдавнішими види з найбільшим ареалом, який частково або повністю розташований на південних територіях, що ніколи не покривалися льодовиками, то з американських видів такими є C. brunetiana, C. calpodendron, C. chrysocarpa, C. douglasii, C. collina, C. pruinosa. До найдавніших належать усі субтропічні американські види – C. aestivalis, C. aprica, C. brachyacantha, C. collina, C. elliptica, C. intricata, C. fecunda, C. flava, C. marshallii, C. opaca, C. pubescens, C. spathulata, C. uniflora тощо. Виникнення північноамериканських видів глоду напряму пов'язано з екологічними умовами в яких вони формувалися.
Огляд філогенетичних схем роду Crataegus зробив Раймонд Циновскіс (Циновскис, 1971). Він вважає філогенетичні схеми запропоновані на початку ХХ сторіччя Сарджентом (Sargent, 1901в, 1902, 1903а, 1905а), Бідлом (Beadle, 1903) і Цабелем (Beissner et al., 1903) доволі штучними, натомість, високо оцінює схему Шнайдера (Schneider, 1906, 1912). Проаналізувавши відповідні праці Редера (Rehder, 1917, 1940, 1949), Палмера (Palmer, 1950, 1952), Полетико
(1954б), Крушке (Krushke, 1965), Русанова (1965) він запропонував свою
12
Таблиця 1. Походження і взаємовідносини між різними серіями роду Crataegus (за Русановим, 1965)
Предки глодів крейдяного періоду
Викопні мезофітні розрізанолисті глоди третинного періоду
Групи глодів, |
що розвину- |
Проміжні групи, що утво- |
Цілолисті |
північноамерикан- |
|||||
лися в м'якому вологому |
рилися в мінливих умовах |
ські глоди з великими колюч- |
|||||||
кліматі третинного періоду |
третинного |
і післятретин- |
ками, що виникли в аридних |
||||||
|
|
|
ного часу в Євразії та Пів- |
умовах третинного періоду |
|||||
|
|
|
нічній Америці |
|
|
|
|
||
|
|
|
|
|
|
|
|||
євразійські |
види амери- |
червоно- |
|
чорноплоді |
Mexicanae, Crus-galli, Puncta- |
||||
види з |
роз- |
канських |
плоді види |
|
види |
tae, Macracanthae |
|
||
різними лис- |
субтропіч- |
|
|
|
|
|
|||
|
|
|
у післяльодовиковий час про- |
||||||
тками і дріб- |
них серій |
|
|
|
довжували |
розвиватися види |
|||
ними колюч- |
|
|
|
|
усіх серій |
окрім Mexicanae. |
|||
ками |
|
|
|
|
|
Мезофітні умови до і після- |
|||
Pinnаtifidae, |
Microcarpae, |
Sanguineae, |
|
Nigrae, |
льодовикового часу |
створили |
|||
Oxyacanthae, |
Parvifoliae, |
Calpoden- |
|
Douglasinae |
серії лісових видів |
|
|||
Henrianae |
Brachyacan- |
dron |
|
|
|
|
|
|
|
|
thae, Corda- |
|
|
|
|
|
|
||
види, що ви- |
|
|
|
Sylvicolae, Pruinosae, |
Dilitatae, |
||||
никли в піс- |
tae |
|
|
|
Virides |
|
|
|
|
ляльодови- |
|
|
|
|
|
|
|||
|
|
|
|
у післяльодовикову епоху ви- |
|||||
ковий час в |
|
|
|
|
никли в |
|
|
|
|
аридних |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
мезофітних |
|
мезо-ксерофіт- |
||
умовах |
дав- |
|
|
|
|
умовах |
|
них умовах |
|
нього серед- |
|
|
|
|
|
|
|
|
|
|
|
|
|
Molles, |
|
Intricatae, |
|||
зем'я Євразії |
|
|
|
|
|
||||
|
|
|
|
Coccinea, |
|
Rotundifoliae, |
|||
|
|
|
|
|
|
|
|||
Azaroli |
|
|
|
|
|
Tenuefiliae |
|
Brainerdianae |
|
|
|
|
|
|
|
|
|
|
|
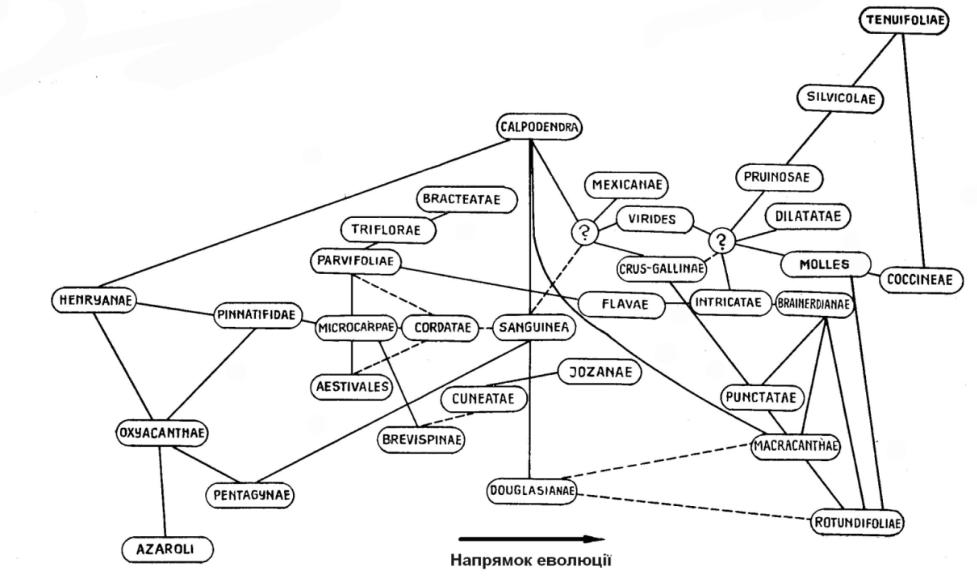
схему філогенетичних відносин, розмістивши 32 секції в еволюційному порядку починаючи з найдавнішої:1. Henryanae Sarg.; 2. Pinnatifidae С.К. Schneid.; 3. Oxyacanthae Loudon; 4. Pentagynae С.К. Schneid.; 5. Azaroli Loudon; 6. Microcarpae Loudon; 7. Cordatae Beadle; 8. Parvifotiae Loudon; 9. Triflorae Beadle;
10. |
Bracteatae Sarg.; |
11. Aestivales Sarg.; 12. Brevispinae Beadle; 13. Cuneatae |
||||||
(Rehder) С.К. Schneid.; |
14. |
Jozanae Cinovskis; |
15. Sanguineae |
С.К. Schneid.; |
||||
16. |
Douglasianae Eggl.; |
17. Calpodendra (Kruschke) Cinovskis; |
18. Mexicanae |
|||||
Loudon; 19. Virides |
Sarg.; |
20. Crus-gallianae Rehder; |
21. Punctatae |
Loudon; |
||||
22. |
Macracanthae |
Loudon; |
23. Rotundifoliae |
Eggl.; |
24. Flavae |
Loudon; |
||
25. |
Intricatae Sarg.; 26. Brainerdianae Eggl.; 27. Dilatatae Sarg.; 28. Molles Sarg.; |
|||||||
29. |
Coccineae Loudon; 30. Pruinosae Sarg.; 31. Silvicolae Beadle; |
32. Tenuifoliae |
||||||
Sarg. |
|
|
|
|
|
|
|
|
|
Графічно філогенетичні відносини в роді Crataegus відображено на мал. 2. |
|||||||
13
14
Мал. 2. Філогенетична схема роду Crataegus (Циновскис, 1971)