Материал: Меженська Л.О., Меженський В.М. Рід Глід (Crataegus L.) в Україні інтродукція, селекція, еколого-біологічні особливості
Шнайдер (Schneider, 1906), Пояркова (1939в) і Русанов (1965) у початок філогенетичних схем ставили секцію Pinnatifidae. Натомість Циновскис, як і Полетіко (Полетико, 1954б), найдавнішою вважає монотипову секцію Henryanae (C. scabrifolia). Серед американських видів глоду найпримітивнішою він визнає секцію Mexicanae. Китайсько-японська секція Cuneatae, що вичленувалася з Pinnatifidae, може мати спільне з американською субтропічною секцією Brevispinae. Циновскіс погоджується з виділенням Русановим проміжних сек-
цій Sanguinea, Calpodendra (червоноплоді) і Nigrae, Douglasianae (чорноплоді),
що могли виникнути в умовах переходу від третинного до четвертинного періоду в Євразії та Північній Америці, зазначаючи, що чорноплодий вид є в Sanguinea (С. chlorosarca), до якої слід віднести й С. nigra. Натомість систематична самостійність секції Douglasianae є дуже сумнівно. З іншого боку Douglasianae
має деякі зв’язки з Macracanthae і Rotundifoliae.
Важким для розв'язання є питання походження і взаємозв'язків між секціями глоду, поширеними на сході північної Америки. Можливо, що морфологічне різноманіття таксонів викликано зміною екологічних умов в області попереднього зледеніння і південніше. Види були вимушені неодноразово мігрувати, пристосовуючись до різних умов. Однак, це не пояснює походження не менш різноманітних видів, сучасні ареали яких не мають відношення до території, колись покритою льодовиком. Припускається можливість існування давньої гіпотетичної групи видів, з якої, а також з секцій Virides, Intricatae (навіть з Crus-gallinae) могли вичленувати філогенетичні гілки 1) Dilatatae; 2) Molles, Coccineae; 3) Pruinosae, Silvicolae, Tenuifoliae.
Різні автори, починаючи з Лаудона (Loudon, 1938) до Крушке (Krushke, 1965) і Русанова (1965), по різному групували види глоду, охоплюючи види якогось великого регіону або всього світу. Вони розподіляли відомі їм або ті, що визнавалися ними, види глоду по секціям, серіям, природним групам або групам. Ці класифікації можна назвати "пласкими", бо вони не пропонували будь-якого ієрархічного групування або встановлення зв'язків між групами. Схема філогенетичних відношень між секціями Crataegus Циновскіса, яка начебто втілює мрії ботаніків-глодознавців, на думку відомого систематика Джеймса Фіппса (Phipps, 1983a), є плутаною і не дуже реалістичною з наукової точки зору. Для фенетичного вивчення Crataegus він використав 49 морфологічних ознак габітусу, пагонів, колючок, листків, суцвіть, квіток і плодів 75 видів глоду різних секцій та піддав біогеографічному аналізу 62 мапи ареалів видів глоду.
Мапа поширення роду Crataegus (мал. 3) за Фіппсом відрізняється від аналогічної, наведеної Полетіко (Полетико, 1954б), точніше окреслюючи межі ареалу.
15

Мал. 3. Сучасний ареал роду Crataegus (за Phipps, 1983a)
Примітка. Межі ареалу позначено пунктирною лінією.
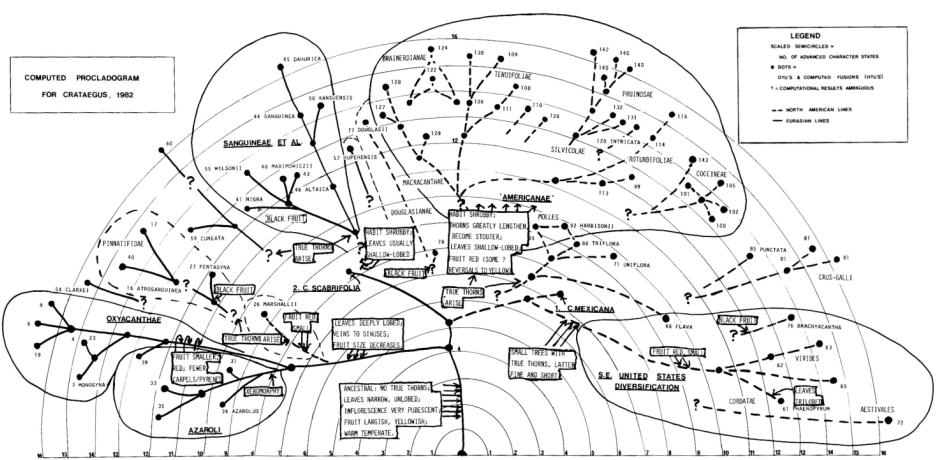
Фіппс докладно опрацював відносини між різними групами глодів, користуючись кладистичними методами. На його думку південнокитайський C. scabrifolia та мексиканський C. mexicana, ареали яких розташовані на протилежних континентах, розділених Тихим океаном, є найпримитівнішими і спорідненими між собою.
Рід Crataegus має давнє походження, можливо з початку третинного періоду, поширюючись одного разу або двічі до Америки з двома вірогідно великими дивергенціями (мал. 4).
Предки C. scabrifolia і C. mexicana на початку третинного періоду або в міоцені під час кліматичних оптимумів перетнули Берингію і мігрували далі на південь. Тому існуючі нині види, скоріше за все, походять з Китаю з поширенням на захід Євразії (головний напрямок); на схід Азії з перетинанням Берингії до Північної Америки (другорядний напрямок); також мало місце незначне поширення в Північній Америці нащадків мексиканського глоду.
Кладистичним аналізом фенетичних ознак встановлено, що такі великі групи як китайські і сибірські види, включаючи секцію Sanguinea, також як й
16

Мал. 4. Гіпотетичні шляхи міграцій великих груп роду Crataegus (Phipps, 1983a)
Примітка. Числа в дужках позначають кількість видів у великих групах роду Сrataegus. Числа не в дужках вказують послідовність міграцій.
інші американські таксони, разом з видами південного сходу США не прив'язані до центрального ядра роду, на відміну від C. scabrifolia і C. mexicana (мал. 5).
Проте видається, що види серій Azaroli і Oxyacantha, відносно достовірно пов'язані з ядром роду. Від C. scabrifolia, як анцестрального виду, походять європейські (серії Azaroli, Oxyacanthae) й азійські види (серія Pinnatifidae). Остання серія є предковою для серії Sanguinea. Під час першого великого переходу через Берингів міст в Америку потрапив С. mexicanae, похідний від C. scabrifolia, під час другого – види серії Sanguinea, які потім дивергували в численні північноамериканські таксони. За альтернативною гіпотезою предковими формами останніх є реліктові таксони з південного сходу США, що походять від С. mexicanae. Відособлені види – американський С. marchallii та азійські – C. hupehensis і C. cuneata, мають зв'язки з таксонами на інших континентах, що припускає додаткові міграції між Азією та Північною Америкою.
17
18
Мал. 5. Про-клдаграма 75 видів Crataegus, що базується на 18 ознаках (Phipps, 1983a)
Фіппс (Phipps et al., 2003b) поділив рід Crataegus на 40 секцій, розмістивши на початку переліку серії європейських видів – Tanacetifoliae, Orientales, Pentagynae, Crataegus; за ними серії китайських і примітивних американських видів – Cuneatae, Apiifoliae, Pinnatifidae, Cordatae, Microcarpae; потім євразій-
ські серії Nigrae і Sanguineae. Завершується перелік серіями з півдня Північної Америки – Mexicanae, Madrenses та серіями Hupebenses, Henryanae з Китаю.
Між цими групами розміщено всі інші секції північноамериканських видів. Певний філогенетичний інтерес становить схема, яка збудована на підставі
граф-аналізу морфологічної будови 38 видів глоду (Сидора, 2007). Ієрархічний ряд роду Crataegus побудовано на основі аналізу 11590 позитивних та негативних станів ознак і розрахованих коефіцієнтів парної та групової спорідненості. Дендрограму на основі загальних морфологічних ознак представлено на мал. 6. Таксони з найбільшою інформаційною вагою, які найбільш споріднені до решти досліджених видів, знаходяться в основі дендрограми роду і вважаються найбільш стародавніми: C. ambigua, C. volgensis, C. transcaspica, C. songarica та
C. kyrtostyla. Ці види характеризують основні морфологічні ознаки роду.
На дендрограмі представлено чітке розділення роду Crataegus на декілька великих гілок – східноєвропейську, західноєвропейську, середньоазійську та північноамериканську, які відповідають географічним ареалам видів. Східноєв-
ропейську групу утворюють C. uсrainica, C. taurica і C. sphaenophylla, що тісно пов’язані з таксонами Кавказу C. eriantha, C. meyeri та півдня Росії C. ambigua і C. volgensis. Положення посередника між азійською та східноєвропейською групами займає пандемік C. kyrtostyla. На досить високому рівні показують зв’язки C. orientalis, C. pontica, C. aronia, C. azarolus з кримським ендемом C. sphaenophylla. Західноєвропейську гілку складають C. azarella, C. monogyna, C. nigra. Північноамериканські таксони розділились на декілька гілок, в основі яких знаходиться C. аrnoldiana.
Розвиток молекулярної генетики наприкінці ХХ сторіччя привів до кращого пізнання філогенії різних таксонів родини Rosaceae (Morgan et al., 1994; Campbell et al., 1995; Evans, 1999; Dickinson et al., 2000; Evans et al., 2000).
Для побудови філогенетичного дерева 19 родин родини Maloideae було застосовано внутрішні транскрибуючі ділянки та ген 5.8S рибосомальної ДНК (Campbell et al., 1995). Досліджуваними представниками родів Crataegus і Mespilus були, відповідно, C. mollis і M. germanica, між якими був виявлений тісний зв'язок з високим значенням бутстрепу. Найнаближенішими до них за комбінованими даними, що включають молекулярні, морфологічні й анатомічні ознаки, є роди Amelanchier, Malacomeles і Peraphyllum.
19