Материал: Основы физической химии
|
§ 23. Катализ |
275 |
|
Таблица 23.3. Константы Михаэлиса для некоторых ферментов |
|||
|
|
|
|
Фермент |
Субстрат |
Константа Михаэлиса |
|
KM, мкмоль · л−1 |
|||
|
|
||
Карбоангидраза |
CO2 |
8 000 |
|
|
|
|
|
Химотрипсин |
Ацетил-L-триптофанамид |
5 000 |
|
|
|
|
|
β-Галактозидаза |
Лактоза |
4 000 |
|
|
|
|
|
|
HCO3− |
1 000 |
|
Пируваткарбоксилаза |
Пируват |
400 |
|
|
|||
|
|
|
|
|
АТФ |
60 |
|
|
|
|
|
Пенициллиназа |
Бензилпенициллин |
50 |
|
|
|
|
|
Лизоцим |
Гекса-N-ацетилглюкозамин |
6 |
|
|
|
|
|
|
АТФ |
300 |
|
Аргинин-тРНК-синтетаза |
|
|
|
Аргинин |
3 |
||
|
|
|
|
|
тРНК |
0,4 |
|
|
|
|
|
Уравнение (23.18) можно записать в других координатах, более удобных для обработки экспериментальных данных:
1 |
1 |
|
KМ |
1 |
(23.20.а) |
|||||
|
|
= |
|
+ |
|
· |
|
|
||
|
r |
rmax |
rmax |
[S] |
||||||
(координаты Лайнуивера–Берка или двойные обратные координаты) или |
||||||||||
|
r = rmax − KМ · |
r |
|
(23.20.б) |
||||||
|
[S] |
|||||||||
(координаты Иди–Хофсти, см. пример 23-2, ч. 2).
Для определения параметров KM и rmax по уравнениям (23.20.а) и (23.20.б) проводят серию измерений начальной скорости реакции при разных начальных
Таблица 23.4. Частота оборотов для некоторых ферментов
Фермент |
Частота оборотов k2, с−1 |
Карбоангидраза |
600 000 |
|
|
3-Кетостероидизомераза |
280 000 |
|
|
Ацетилхолинэстераза |
25 000 |
|
|
β-Амилаза |
18 000 |
|
|
Пенициллиназа |
2 000 |
|
|
Лактатдегидрогеназа |
1 000 |
|
|
Химотрипсин |
100 |
|
|
ДНК-полимераза I |
15 |
|
|
Триптофансинтетаза |
2 |
|
|
Лизоцим |
0,5 |
|
|
276 |
Гл. V. Химическая кинетика |
концентрациях субстрата и представляют экспериментальные данные в коорди-
натах 1/r0 – 1/[S]0 (рис. 23.3.б) или r0 – r0/[S]0.
Иногда течение ферментативной реакции осложняется присутствием ингибиторов — веществ, способных образовывать комплексы с ферментом или фермент-субстратным комплексом. Различают конкурентное, бесконкурентное, неконкурентное и смешанное ингибирование.
При конкурентном механизме ингибитор (I) конкурирует с субстратом за активные участки фермента (рис. 23.4). Как только ингибитор занимает активный центр фермента, субстрат уже не может связаться с последним. Простейшая кинетическая схема данного процесса имеет вид
k1 |
|
k2 |
|
|
E + S k−1 |
ES −→ E + P, |
|||
|
|
|
|
|
|
|
|
(23.21) |
|
E + I EI, |
KI = |
[E][I] |
. |
|
|
||||
|
|
|
[EI] |
|
Фермент |
Ингибиторы |
Субстрат |
Конкурентное
ингибирование
Фермент |
|
|
E + S |
E + l |
Неконкурентное
ингибирование
Фермент |
E + S |
E + l |
E + S + l |
Рис. 23.4. Схемы конкурентного и неконкурентного ингибирования
§ 23. Катализ |
277 |
Применение квазистационарного приближения к комплексу ES и квазиравновесного приближения к комплексу EI с учетом уравнений материального баланса [E] + [ES] + [EI] = [E]0 и [I] ≈ [I]0 дает для скорости реакции уравнение типа (23.18):
r = |
rmax[S] |
, |
(23.22) |
|
KМ,eff + [S] |
||||
|
|
|
где эффективная константа Михаэлиса связана с исходной концентрацией
ингибитора: |
|
|
|
KMeff = KM 1 + |
[I]0 |
. |
(23.23) |
KI |
Величину KI = [E] · [I]/[EI], которая представляет собой константу диссоциации комплекса фермента с ингибитором, называют константой ингибирования. Таким образом, при конкурентном ингибировании увеличивается константа Михаэлиса, а максимальная скорость ферментативной реакции остается неизменной.Это объясняется тем, что при высоких концентрациях субстрата последний вытесняет ингибитор из активных центров фермента.
При бесконкурентном ингибировании механизм реакции имеет вид:
k1 |
k2 |
(23.24.а) |
E + S k−1 |
ES −→ E + P, |
|
|
|
|
ES + I ESI.
В этом случае образуется неактивный комплекс ESI за счет присоединения ингибитора к промежуточному комплексу ES с константой ингибирования:
KI = |
[ES][I] |
(23.24.б) |
[ESI] |
Применение квазистационарного приближения к комплексу ES и квазиравновесного приближения к комплексу ESI с учетом уравнений материального баланса [E] + [ES] + [ESI] = [E]0 и [I] ≈ [I]0 дает для скорости реакции уравнение типа (23.18):
|
|
|
r = |
|
rmaxeff [S] |
, |
|
|
|
(23.25.а) |
||
|
|
|
|
KMeff + [S] |
|
|
|
|||||
где |
|
KM |
|
|
|
|
rmax |
|
|
|||
|
|
|
, rmaxeff |
|
|
(23.25.б) |
||||||
KMeff |
= |
1 + |
|
KI |
= |
1 + KI |
||||||
|
|
|
|
[I]0 |
|
|
|
|
|
[I]0 |
|
|
В этом случае и константа Михаэлиса, и максимальная скорость уменьшаются
водинаковое число раз.
Вобщем случае (чаще всего) имеет место смешанное ингибирование, когда ингибитор образует комплексы и с ферментом, и с комплексом ферментсубстрат:
k1 |
k2 |
E + S k−1 |
ES −→ E + P, |
|
|
|
(23.26) |
KК |
KБ |
E + I EI, |
ES + I ESI, |
278 Гл. V. Химическая кинетика
где KК и KБ — константы конкурентного и бесконкурентного ингибирования соответственно. Решая задачу аналогично предыдущей, получаем выражение для начальной скорости в следующем виде:
r = |
|
|
rmax[S] |
|
|
. |
(23.27) |
||
KM |
1 + KK |
+ [S] 1 + |
KБ |
||||||
|
|
|
[I]0 |
|
|
[I]0 |
|
|
|
При смешанном ингибировании изменяются и константа Михаэлиса, и максимальная скорость ферментативной реакции.
В частном случае, когда KК = KБ = KI, имеет место неконкурентное ингибирование. Решение кинетической схемы в этом случае имеет вид:
|
|
rmax |
|
[S] |
||
|
|
1 + |
[I]0 |
|
||
|
|
|
|
|||
r = |
|
KI |
|
(23.28) |
||
|
|
|
|
|
||
При неконкурентном ингибировании максимальная скорость реакции уменьшается, а константа Михаэлиса остается неизменной.
При субстратном ингибировании в роли ингибитора выступает вторая молекула субстрата, которая связывается с фермент-субстратным комплексом и препятствует его превращению в продукты:
|
|
|
k1 |
k2 |
|
|
|
|
|
|
E + S k−1 |
ES −→ E + P, |
|
||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
(23.29) |
|
|
|
|
|
KS |
, |
|
|
|
|
|
ES + S ES2 |
|
|
||||
где KS = |
[ES ][S ] |
В квазистационарном приближении с учетом материального |
||||||
[ES2] |
||||||||
|
|
|
|
|
|
|
||
баланса [E]0 = [E] + [ES] + [ES2] получаем |
|
|
|
|||||
|
|
r = |
|
rmax[S] |
|
|
(23.30) |
|
|
|
|
[S]2 |
|||||
|
|
|
|
|
||||
KM + [S] + KS
При малых концентрациях субстрата слагаемым [S]2/KS в знаменателе можно пренебречь, и уравнение (23.30) превращается в обычное уравнение Михаэлиса–Ментен (23.18). При больших концентрациях субстрата слагаемое [S]2/ KS вносит существенный вклад, и скорость реакции уменьшается.
При высоких концентрациях субстрата ([S] KM) уравнение (23.30) при-
нимает вид: |
rmax[S] |
|
rmax |
|
|
|||||
r = |
= |
. |
(23.31) |
|||||||
|
[S]2 |
|
|
|
|
|||||
|
[S] + |
1 + |
[S] |
|
|
|||||
|
KS |
KS |
|
|||||||
|
|
|
|
|
||||||
Линеаризацией этого уравнения в координатах 1/r — [S] можно определить значения rmax и KS (рис. 23.5):
1 |
= |
1 |
+ |
[S] |
. |
(23.32) |
|
|
|
||||
r |
|
rmax |
rmaxKS |
|
||
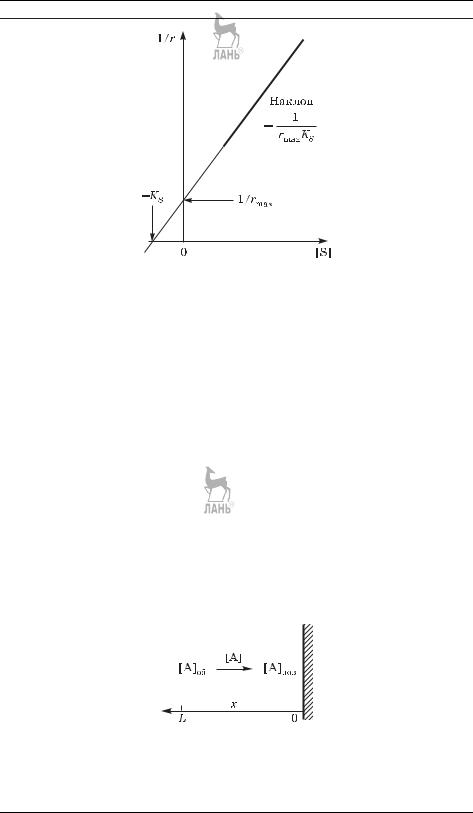
§ 23. Катализ |
279 |
Рис. 23.5. Графическое определение rmax и KS по уравнению (23.32) |
|
Гетерогенный катализ
Гетерогенные реакции с твердыми катализаторами могут протекать как на поверхности, так и в порах катализатора. В общем случае выделяют семь основных стадий: 1) диффузия вещества к поверхности катализатора (внешняя диффузия); 2) диффузия вещества в порах (внутренняя диффузия); 3) адсорбция вещества на поверхности или в порах; 4) химическая реакция в адсорбционном слое на поверхности или в порах; 5) десорбция продуктов; 6) диффузия продуктов из пор; 7) диффузия продуктов от поверхности в объем. В зависимости от параметров катализатора (удельной поверхности, диаметра и формы пор) и свойств субстрата (коэффициентов внешней и внутренней диффузии) любая из этих стадий может оказаться лимитирующей.
Рассмотрим в качестве примера простую модель — одномерную внешнюю диффузию к плоской поверхности катализатора, на которой происходит химическая реакция первого порядка A → P с константой скорости kr. Обозначим [A]об концентрацию реагента в объеме жидкой или газовой фазы, [A]пов — его концентрацию в поверхностном слое, D — коэффициент диффузии вещества A, L — толщину диффузионного слоя (рис. 23.6), в котором концентрация вещества A меняется от [A]об до [A]пов, x — расстояние до поверхности.
Рис. 23.6. Модель «одномерная диффузия — реакция на поверхности»