Материал: Учу по этому
Активные формы кислорода представляют собой совокупность короткоживущих, взаимопревращающихся и относительно реакционноспособных форм кислорода, которые возникают в результате его электронного возбуждения или окислительно-восстановительных превращений.
Различают неферментативное и ферментативное механизмы образования АФК. Заряженные свободные радикалы, называемые катион- или анион-радикалы, образуются в процессе одноэлектронного окисления или восстановления.
При неферментативном механизме образования, одним из основных источников образования АФК является митохондриальная цепь переноса электронов (ЦПЭ). Ферментативные пути образования активных форм кислорода
Кроме неферментативного пути образования АФК в организме человека и животных возможно и ферментативное образование супероксидного анион-радикала и перекиси водорода при окислении органических субстратов различными оксидазами.
Сущность молекулярной адаптации к хроническому действию наркотических веществ.
Алкоголизм и наркоманию относят к болезням адаптации. Что значит адаптация на языке биохимии – это увеличение количества свободных опиатных рецепторов.
Центральным механизмом молекулярной адаптации к хроническому воздействию наркотика является активация образования цАМФ. При формировании синдрома отмены увеличение уровня цАМФ ответственно за развитие угнетенного состояния за счет усиления активности ГАМК нейронов. Они оказывают тормозное влияние на дофаминовые и серотониновые нейроны.
Наркоман должен увеличить дозу, промежутки сокращаются между приемами – функциональные изменения переходят в органические, формируя сначала психическую, а затем физиологическую зависимость, усиливая абстинентный синдром.
При состоянии опиоидного дефицита часть опиоидных рецепторов остается свободными, что способствует усилению воздействия. Синтез энкефалинов снижается, а усиленный метаболизм этанола сопровождается образованием ТГИХ, вызывая чувство ложного комфорта, так как этот продукт имеет структурное сходство с морфином
Этапы катаболизма жирных кислот: реакции, ферменты. Энергетический эффект полного окисления с16:0. Регуляция процесса β-окисления вжк.
Окисление жирных кислот в митохондриях до СО2 и Н2О – является одним из главных способов получения энергии.
Окислению предшествует:
• активация ВЖК (для ослабления стабильности С-С связей),
• транспорт ацил-КоА через мембрану из цитозоля в матрикс митохондрий, где локализованы ферменты окисления.
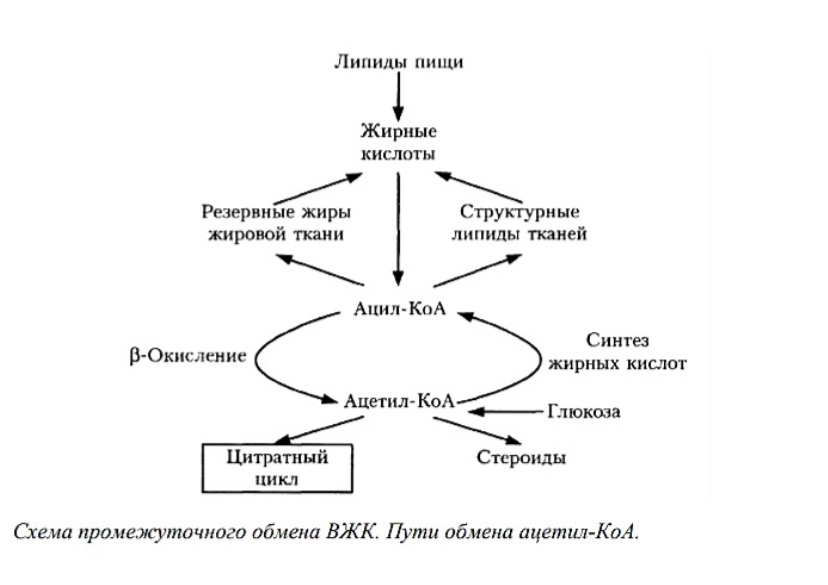
β-окисление - это аэробный процесс катаболизма жирных кислот путём последовательного отщепления двууглеродных фрагментов в виде ацетил-СоА. Ацетил-СоА может вступать в цитратный цикл и окисляться до СО2 и Н2О, а образовавшийся укороченный ацильный остаток вновь вовлекается в следующий цикл β-окисления. В результате β-окисления ВЖК полностью расщепляются до ацетил-СоА.
Окисление происходит по β-атому углерода и включает четыре последовательные реакции:
• дегидрирование (окисление)
• гидратация
• дегидрирование (окисление)
• тиолазная реакция
Задача. Результат анализа мочи: суточный объём – 1,3 л, цвет – «тёмного пива», прозрачность – неполная, плотность – 1058 кг/м3 , реакция – слабо кислая, осадок – нет, белок – следы, глюкоза – нет, кетоновые тела – нет, эритроциты – нет, лейко- циты – 3-6×', уробилин – следы, билирубин – большое количе- ство, жёлчные кислоты – (+). Имеются ли отклонения от нормы у данного пациента?
Да, характерные для подпечёночной (обтурационной) желтухи.
Билет 24
Теломеры. Строение теломеразного комплекса.. Танкираза: роль в образовании активной танкиразы
Биологическое значение и структуры кетоновых тел. Синтез кетоновых тел в печени; регуляция синтеза. Представление о кетонемии, кетонурии и кетоацидозе.
Биохимические механизмы адаптации к голоданию, типы голодания. Фазы полного голодания. Изменение гормонального статуса и метаболизма при голодании.
Теломеры. Строение теломеразного комплекса.. Танкираза: роль в образовании активной танкиразы
Теломе́ры — концевые участки хромосом. Теломерные участки хромосом характеризуются отсутствием способности к соединению с другими хромосомами или их фрагментами и выполняют защитную функцию.
В клетках человека теломеры обычно представлены одноцепочной. В теломерных участках хромосом ДНК вместе с белками, специфически связывающимися с теломерными повторами, образует нуклеопротеидный комплекс - конститутивный (структурный) теломерный гетерохроматин. На концах хромосом могут образовываться и другие структуры: основания могут быть расположены в одной цепочке или в разных параллельных цепочках. Также теломеры формируют большие петлеобразные структуры, называемые Т-петли или теломерные петли. В них одноцепочечная ДНК располагается в виде широкого кольца, стабилизированного теломерными белками. В конце Т-петли одноцепочечная теломерная ДНК присоединяется к двухцепочечной ДНК. Это трёхцепочечное образование называется Д-петля.
Танкираза – фермент, связанный с белком теломерного комплекса. Белки теломерного комплекса защищают от доступа теломеразы, однако эта защита может нарушаться при помощи танкиразы. Активность танкиразы характерна для раковых клеток. Действие танкиразы аналогично действию дифтерийного токсина, т.е. нарушение функции белков путем их АТФ-рибозилирования.
Биологическое значение и структуры кетоновых тел. Синтез кетоновых тел в печени; регуляция синтеза. Представление о кетонемии, кетонурии и кетоацидозе.
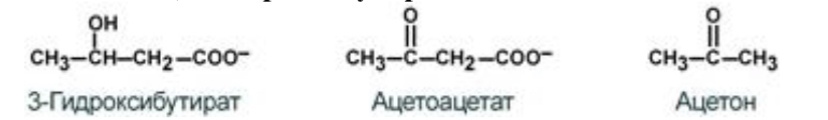
К кетоновым телам относят три соединения близкой структуры – ацетоацетат, 3-гидроксибутират и ацетон.
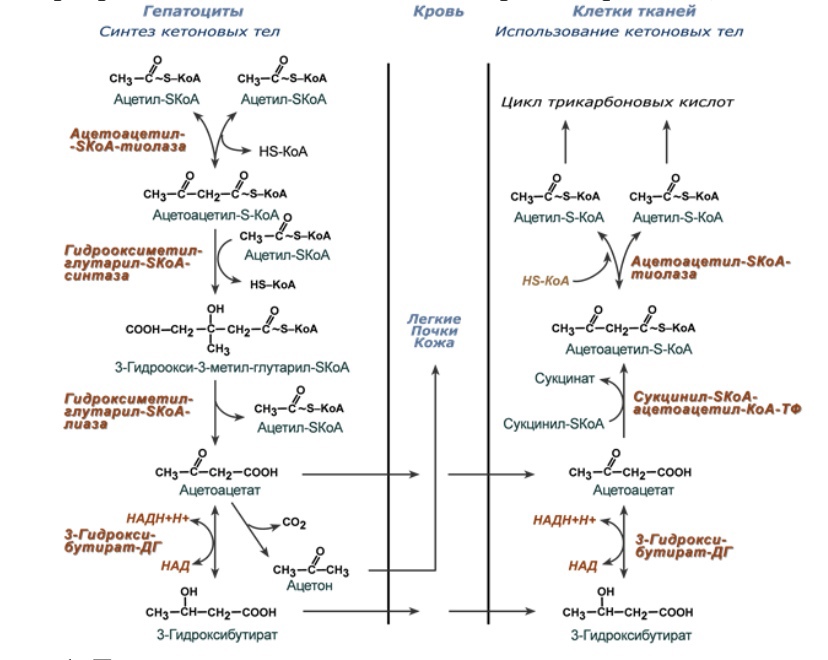
Синтез кетоновых тел (кетогенез)
Синтез ацетоацетата происходит только в митохондриях печени, далее он либо восстанавливается до 3-гидроксибутирата, либо декарбоксилируется до ацетона. После синтеза все три соединения поступают в кровь и разносятся по тканям. Ацетон, как летучее вещество, легко удаляется с выдыхаемым воздухом и потом. Все кетоновые тела могут выделяться с мочой.
Используются кетоновые тела клетками всех тканей, кроме печени и эритроцитов. Особенно активно, даже в норме, они потребляются миокардом и корковым слоем надпочечников.
В тканях реакции утилизации кетоновых тел в целом совпадают с обратным направлением реакций синтеза. В цитозоле клеток 3-гидроксибутират окисляется, образующийся ацетоацетат проникает в митохондрии, активируется за счет сукцинил-SКоА и превращается в ацетил-SКоА, который сгорает в ЦТК
Биохимические механизмы адаптации к голоданию, типы голодания. Фазы полного голодания. Изменение гормонального статуса и метаболизма при голодании.
Виды голодания.
1. Абсолютное голодание – при отсутствии пищи и воды.
2. Полное голодание – прекращение получение пищи, но с приёмом воды.
3. Неполное голодание (количественное недоедание) – питание, недостаточное по отношению к энергетическим тратам и пластическим нуждам человека. Более или менее равномерный дефицит в рационе питательных веществ – белков, жиров и углеводов ведёт к энергетической недостаточности.
4. Частичное голодание (качественное недоедание) – недостаточное потребление одного или нескольких необходимых пищевых веществ на фоне нормальной, сниженной или даже повышенной энергетической ценности питания. Это проявление одной из неспецифических форм алиментарной недостаточности (например, белковой, витаминной, минеральной).
Голодание может быть кратковременным, в течение суток (I фаза), продолжаться в течение недели (II фаза) или нескольких недель (III фаза).
В отсутствие пищи в крови снижается уровень глюкозы, аминокислот и триацилглицеролов.
В течение нескольких первых дней голодания быстро распадаются мышечные белки - основной источник субстратов для глюконеогенеза. При голодании более 3 нед скорость катаболизма белков стабилизируется и составляет примерно 20 г в сутки. В этот период увеличивается потребление мозгом кетоновых тел, а скорость глюконеогенеза снижается.
1. Схема синтеза глицерофосфолипидов. Представление о роли лецитина в функционировании сурфактанта легкого.
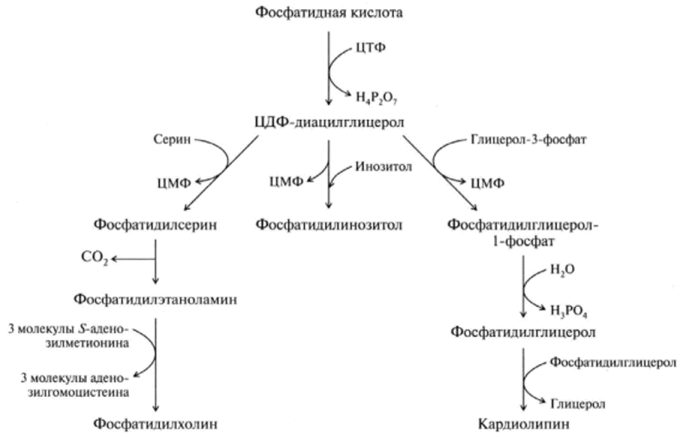
Роль лецитина в формировании сурфактанта.
Дыхание. Фосфолипиды лецитина являются «строительным материалом» для лёгочного сурфактанта — смеси веществ, выстилающих изнутри лёгочные альвеолы. Сурфактант обеспечивает нормальный газообмен в лёгких: кислород попадает в кровь, а углекислый газ удаляется из крови. Нарушение этого процесса ведёт к гипоксии организма, и лецитин способен предотвратить её развитие.
Функции сурфактанта:
· снижает поверхностное натяжение альвеол и обеспечивает их стабилизацию
· предупреждает спадение альвеол, обеспечивает несмачиваемость при вдохе
· улучшает диффузию газов, увеличивает растяжимость легких
· препятствует пенообразованию
2. Кальцитриол: химическая природа, этапы синтеза, механизм действия, органы-мишени, биологические эффекты. Представление о заболевании «рахит».
Природа: стероидная
Механизм действия: внутриклеточный (цитозольный)
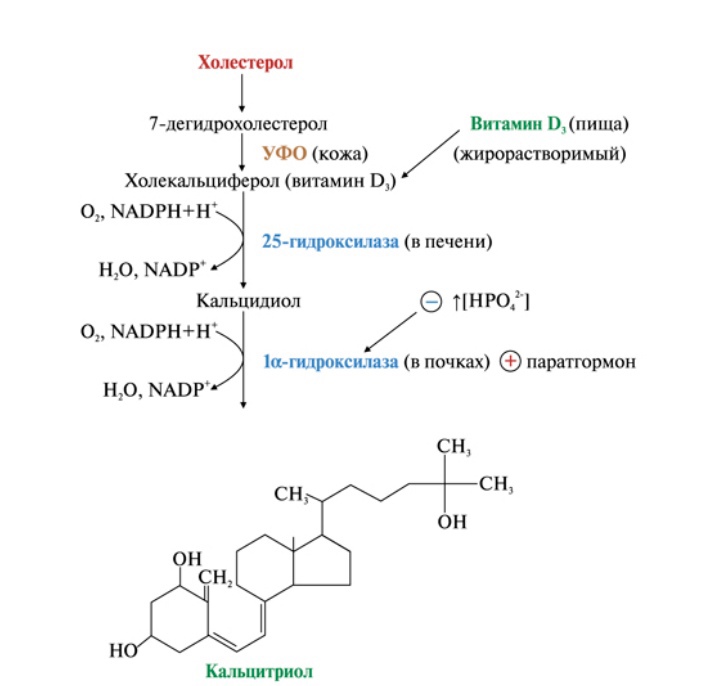
Регуляция секреции:
метаболическая;
гормональная.
Ткани мишени: клетки кишечника, кости (остеобласты).
Влияние на обмен: усиливает всасыване Ca2+, PO3- через
слизистую кишки.
Физиологический ответ:
Повышает уровень Ca2+ в крови
Повышает уровень PO3- в крови
Повышает уровень Ca2+ в кости
Повышает уровень PO3- в кости
Патологический аспект:
Рахит – заболевание детского возраста, которое характеризуется низким уровнем Ca2+ и в PO3- (фосфата) в плазме крови, нарушением минерализации костей, ведущим к деформациям скелета. Чаще всего рахит вызывается недостатком витамина Д.
Различают 2 типа наследственного витамин Д – зависимого рахита:
I тип обусловлен генетически детерменированным превращением 25 – гидроксихолекальциферола в кальцийтриол.
II тип - генетический дефект, обусловленный отсутствием рецепто-ров к кальцийтриолу.
3.Синтез пуриновых нуклеотидов.
Первая реакция синтеза пуринов заключается в активации углерода в положении С1 рибозо-5-фосфата, это достигается синтезом 5-фосфорибозил-1-дифосфата.
Вторая
реакция
–
это
перенос
NH2-группы
глутамина
на
активированный
атом
С1
с
образованием
5'-фосфорибозиламина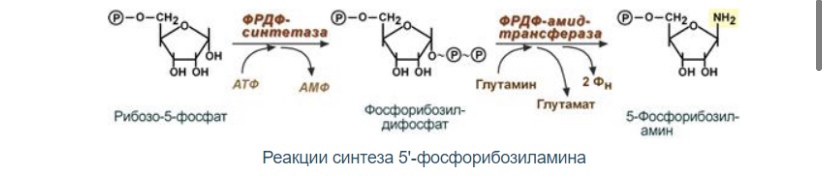
Гуанозинмонофосфат (ГМФ) образуется в двух реакциях – сначала ИМФ окисляется ИМФ-дегидрогеназой до ксантозилмонофосфата, источником кислорода является вода, акцептором водорода – НАД. После этого работает ГМФ-синтетаза, она использует универсальный клеточный донор NH2-групп – глутамин, источником энергии для реакции служит АТФ.
Аденозинмонофосфат (АМФ) также образуется в двух реакциях, но в качестве донора NH2-группы выступает аспарагиновая кислота. В первой, аденилосукцинат-синтетазной, реакции на присоединение аспартата используется энергия распада ГТФ, во второй реакции аденилосукцинат-лиаза производит удаление части аспарагиновой кислоты в виде фумарата.
4.Задача
При обследовании пациента, поступившего в стационар с 21 подозрением на вирусный гепатит, обнаружено, что активность фермента АЛТ в сыворотке крови превышает нормальный уровень в 10 раз (норма – 0,1-0,45 мммоль/л×час). О чём свидетельствует полученный результат?
При продолжительности голодания более 4 недель развиваются атрофические процессы, в результате которых происходит потеря значительного количества белков. В теле человека массой 70 кг масса белков составляет 15 кг. При потере 1/3-1/2 белков наступает смерть.
Билет 25
1. Схема синтеза глицерофосфолипидов. Представление о роли лецитина в функционировании сурфактанта легкого.
2. Кальцитриол: химическая природа, этапы синтеза, механизм действия, органы-мишени, биологические эффекты. Представление о заболевании «рахит».
3. Синтез пуриновых нуклеотидов