Материал: Voprosy_s_otvetami_na_ekz_po_fize
Корригирующее действие — изменение деятельности органов или процессов, которые происходят и в отсутствие гормона. Примером корригирующего действия гормонов является влияние адреналина на частоту сердечных сокращений, активация окислительных процессов тироксином, уменьшение обратного всасывания ионов калия в почках под влиянием альдостерона. Разновидностью корригирующего действия является нормализующий эффект гормонов, когда их влияние направлено на восстановление измененного или даже нарушенного процесса. Например, при исходном превалировании анаболических процессов белкового обмена глюкокортикоиды вызывают катаболический эффект, но если исходно преобладает распад белков, глюкокортикоиды стимулируют их синтез.
В более широком плане зависимость величины и направленности эффекта гормона от имеющихся перед его действием особенностей метаболизма или функции определяется правилом исходного состояния, описанном в начале главы. Правило исходного состояния показывает, что гормональный эффект зависит не только от количества и свойств молекул гормона, но и от реактивности эффектора, определяемой числом и свойствами мембранных рецепторов к гормону. Реактивностью в рассматриваемом контексте называют способность эффектора реагировать определенной величиной и направленностью ответа на действие конкретного химического регулятора.
Реактогенное действие гормонов — способность гормона менять реактивность ткани к действию того же гормона, других гормонов или медиаторов нервных импульсов. Так, например, кальцийрегули-рующие гормоны снижают чувствительность дистальных отделов нефрона к действию вазопрессина, фолликулин усиливает действие прогестерона на слизистую оболочку матки, тиреоидные гормоны усиливают эффекты катехоламинов. Разновидностью реактогенного действия гормонов являетсяпермиссивное действие, означающее способность одного гормона давать возможность реализоваться эффекту другого гормона. Так, например, глюкокортикоиды обладают пермиссивным действием по отношению к катехоламинам, т.е. для реализации эффектов адреналина необходимо присутствие малых количеств кортизола, инсулин обладает пермиссивным действием для соматотропина (гормона роста) и др. Особенностью гормональной регуляции является то, что реактогенное действие гормоны могут реализовать не только в тканях — мишенях, где концентрация рецепторов к ним высока, но и в других тканях и органах, имеющих единичные рецепторы к гормону.
Пути действия гормонов на клетки-мишени.
Пути действия гормонов рассматриваются в виде двух альтернативных возможностей: 1) действия гормона с поверхности клеточной мембраны после связывания со специфическим мембранным рецептором и запуска тем самым цепочки биохимических превращений в мембране и цитоплазме (эффекты пептидных гормонов и катехола-минов); 2) действия гормона путем проникновения через мембрану и связывания с рецептором цитоплазмы, после чего гормон-рецеп-торный комплекс проникает в ядро и органоиды клетки, где и реализует свой регуляторный эффект (стероидные Гормоны, гормоны щитовидной железы). Считается, что функция распознавания предназначенного определенным клеткам специфического гормонального сигнала у всех клеток для всех гормонов осуществляется мембранным рецептором, а после связывания гормона с соответствующим ему рецептором, дальнейшая роль гормон- рецепторного комплекса для пептидных и стероидных гормонов различна.
Молекулярные механизмы действия гормонов разной химической природы на клетки-мишени.
Система «аденилатциклаза – цАМФ»
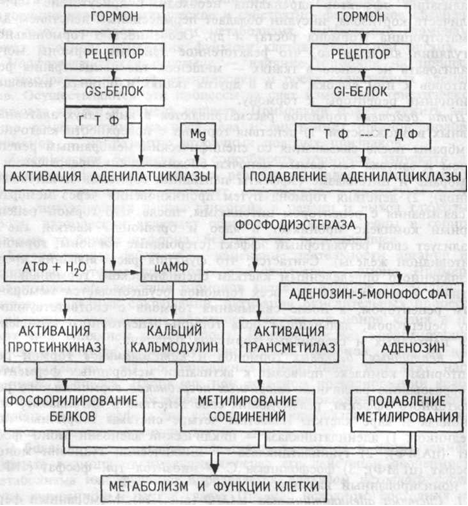
Мембранный фермент аденилатциклаза может находиться в двух формах — активированной и неактивированной. Активация аденилатциклазы происходит под влиянием гормон-рецепторного комплекса, образование которого приводит к связыванию гуанилового нуклеотида (ГТФ) с особым регуляторным стимулирующим белком (GS-белок), после чего GS-белок вызывает присоединение Mg к аденилатциклазе и ее активацию. ак действуют активирующие аденилатциклазу гормоны — глюкагон, тиротропин, паратирин, вазопрессин (через V-2-рецепторы), гонадотропин и др. Ряд гормонов, напротив, подавляет аденилатциклазу — соматостатин, ангиотензин- II и др. Гормон-рецепторные комплексы этих гормонов взаимодействуют в мембране клетки с другим регуляторным ингибирующим белком (GI-белок), который вызывает гидролиз ГТФ до ГДФ и, соответственно, подавление активности аденилатциклазы. Адреналин через бета-адренорецепторы активирует аденилатциклазу, а через альфа-1-адренорецепторы ее подавляет.
Под влиянием аденилатциклазы из АТФ синтезируется цАМФ, вызывающий активацию двух типов протеинкиназ в цитоплазме клетки, ведущих к фосфорилированию многочисленных внутриклеточных белков. Это меняет проницаемость мембран, активность и количество ферментов, т.е. вызывает типичные для гормона метаболические и, соответственно, функциональные сдвиги. В табл.3.3 приведены основные эффекты активации цАМФ-зависимых протеинкиназ. Секреторный, двигательный эффекты или изменение конфигурации клетки
Кроме активации протеинкиназ внутриклеточные эффекты цАМФ реализуются также через три других механизма:
1) Систему кальций-кальмодулин,
2) Трансметилазную систему,
3) Аденозин-5-монофосфат — аденозин.
О роли системы кальций-кальмодулин будет сказано ниже. Трансметилазная система обеспечивает метилирование ДНК, всех типов РНК, белков хроматина и мембран, ряда гормонов на уровне тканей, фосфолипидов мембран. Это способствует реализации многих гормональных влияний на процессы пролиферации, дифференцировки, состояние проницаемости мембран и свойства их ионных каналов и, что важно подчеркнуть особо, влияет на доступность мембранных реиепторных белков молекулам гормонов.
Прекращение гормонального эффекта, реализуемого через систему аденилатциклаза-цАМФ, осуществляется с помощью специального фермента фосфодиэстеразы цАМФ, вызывающей гидролиз этого вторичного посредника с образованием аденозин-5-монофосфата. Однако, этот продукт гидролиза превращается в клетке в аденозин, обладающий четким эффектом подавления процессов метилирования, что также играет роль в реализации определенных гормональных влияний.
Система гуанилатциклаза-цГМФ.
Активация мембранной гу-анилатциклазы происходит не под непосредственным влиянием гормон-рецепторного комплекса, а опосредованно через ионизированный кальций и оксидантные системы мембран. Типичная стимуляция активности гуанилатциклазы ацетилхолином также реализуется опосредованно через Са++ . Через активацию гуанилатциклазы реализует эффект и натриуретический гормон предсердий — атриопептид. Путем активации перекисного окисления стимулирует гу-анилатциклазу биологически активное вещество (тканевой гормон) сосудистой стенки — расслабляющий эндотелиальный фактор. Под влиянием гуанилатциклазы из ГТФ синтезируется цГМФ, активирующий цГМФ-зависимые протеинкиназы, которые уменьшают скорость фосфорилирования легких цепей миозина в гладких мышцах стенок сосудов, приводя к их расслаблению. В большинстве тканей биохимические и физиологические эффекты цАМФ и цГМФ проти-воложны. Примерами могут служить стимуляция сокращений сердца под влиянием цАМФ и торможение их цГМФ, стимуляция сокращения гладких мышц кишечника цГМФ и подавление цАМФ. цГМФ играет роль в гиперполяризации рецепторов сетчатки глаза под влиянием фотонов света. Ферментативный гидролиз цГМФ осуществляется с помощью специфической фосфодиэстеразы.2. Система «гуанилатциклаза – цГМФ»
Системы «фосфолипаза С – ИТФ» и «Са – кальмодулин».
Гормонрецепторный комплекс с участием регуляторного G-белка ведет к активации мембранного фермента фосфолипазы С, вызывающей гидролиз фосфолигшдов мембраны с образованием двух вторичных посредников: инозитол-3-фосфата и диадилглицерола. Инозитол-3-фосфат вызывает выход Са++ из внутриклеточных депо, в основном из эндоплазматического ретикулума, ионизированный кальций связывается со специализированным белком кальмодулином, что обеспечивает активацию ряда протеинкиназ и фосфорилирование внутриклеточных структурных белков и ферментов
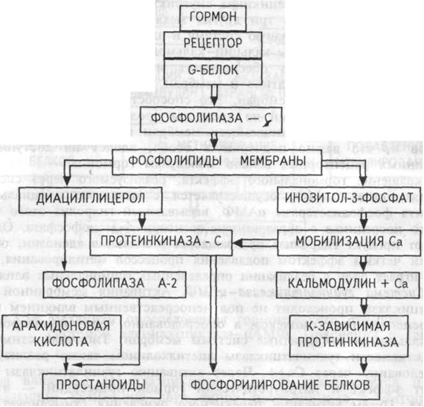
Механизм опосредования гормонального стимула системой фосфолипаза С — инозитол-3-фосфат. Пояснения в тексте.
В свою очередь диацилглицерол способствует резкому повышению сродства протеинкиназы С к ионизированному кальцию, последний без участия кальмодулина ее активирует, что также завершается процессами фосфорилирования других белков. Диацилглицерол одновременно может реализовывать и другой путь опосредования гормонального эффекта, так как он активирует фосфолипазу А-2. Под влиянием последней из мембранных фосфолипидов образуется арахидоновая кислота, являющаяся источником мощных по метаболическим и физиологическим эффектам веществ — простагландинов и лейкотриенов. Необходимо указать, что в разных клетках превалирует один или другой пути образования вторичных посредников, что в конечном счете и определяет физиологический эффект гормона. Через рассмотренные системы вторичных посредников реализуются эффекты адреналина (при связи с альфа-адренорецептором), вазопрессина (при связи с V- 1-рецептором), ангиотензина- II, соматостатина, окситоцина и других гормонов.
Система «фосфолипаза А2 – ДАГ».
гормон-рецептор - G-белок - фосфолипаза А2 - ДАГ - киназа С - фосфорилирование белка - физиологический ответ.
Нейросекреторная функция гипоталамуса. Рилизинг-факторы, их характеристика. Гипоталамо-гипофизарные связи.
Нейросекреторная функция гипоталламуса
Многочисленные исследования показали важную роль нейросекреторных клеток гипоталамуса в регуляции функций внутренних органов. Эта регуляция может осуществляться либо прямым путем, либо посредством желез внутренней секреции.
Особое значение нейросекреторные элементы имеют в осуществлении защитных и приспособительных реакций организма.
В супраоптическом и паравентрикулярном ядрах располагаются клеточные тела, отростки которых образуют гипоталамо-гипофизарный тракт, идущий в заднюю долю гипофиза.
Последняя выступает в роли гемального органа, где наполненные секретом аксонные терминали функционально взаимодействуют с выносящими секрет сосудами. Клетки супраоптического и паравентрикулярных ядер получают синаптический вход от разных структур мозга. Это типичные нейроны.
Они генерируют потенциалы действия, распространяющиеся по аксону. Достигая аксонной терминали, потенциал вызывает секрецию пептидного гормона, которая осуществляется по механизму экзоцитоза, т. е. того самого механизма, с помощью которого выделяются и медиаторы.По своей ультраструктуре эти клетки отличаются от других нейронов наличием крупных (до 190 нм) электронно-плотных секреторных гранул, которые окружены специальной мембраной. Особенно много гранул в аксональных терминалях.
В области секреторной мембраны аксона локализуются мелкие пузырьки, не имеющие плотного содержимого. Они являются, по-видимому, либо продуктами пиноцитоза, либо остатками изливших содержимое секреторных гранул.
Благодаря специальным исследованиям установлено, что клетки супраоптического ядра вырабатывают вазопрессин, паравентрикулярного — окситоцин.
Секретируемый нервными клетками материал перемещается по аксонам гипофизарно-гипоталамического тракта в форме коллоидных гранул. Перерезка тракта сопровождается накоплением нейросекрета в его проксимальном конце и истощением в дистальном. Различного рода стрессорные воздействия, жажда, обезвоживание также ведут к истощению нейросекрета. У крыс, например, стресс вызывает истощение запаса нейросекрета в течение 10 мин.
Не менее важна роль гипоталамуса и в секреции аденогипофизарных гормонов. В состав мелкоклеточных ядер вентральной гипоталамической области входят клетки, которые вырабатывают нейрогормоны, регулирующие секреторную активность тройных желез аденогипофиза.
С ними они связаны посредством специальной портальной системы кровеносных сосудов. Сейчас различается 7 эффектов, которые оказывают эти клетки на железистые образования аденогипофиза. Последнее дает основание говорить о 7 гипоталамических факторах: CRF — фактор, вызывающий выделение кортикотропного гормона; LRF— лютеинизирующего гормона; FSHRF — фолликулостимулирующего гормона; TRF — тиреотропного гормона; GRF или SRF — соматотропного гормона; PIF — фактор, тормозящий выделение пролактина; MIF — тормозящий выделение меланоцитстимулирующего гормона.
Все эти факторы имеют пептидную природу. Следовательно, гипоталамус выполняет роль своеобразного реле, включающего гипофизарную гормональную цепь в регуляцию различных висцеральных
Рилизинг-факторы, их характеристика
Риллизинг-факторы-класс пептидных гормонов гипоталламуса, общим свойством которых является реализафия их эффектовчерез стимуляцию синтеза и секреции в кровь тех или иных тропных гормонов передней доли гипофиза. Подразделяются на 2 группы:
1)Либерины- гормоны белковой природы. Вырабатываются в гипоталамусе, далее поступают в гипофиз и активируют синтез и выделение в кровь гормонов передней доли гипофиза. Основными либеринами являются соматолиберины, кортиколиберины, тиреолиберины и т.д.
2) Статины- гормоны белковой природы. Вырабатываются в гипоталамусе, далее поступают в гипофиз и подавляют синтез и выделение в кровь гормонов передней доли гипофиза. Основными статинами являются соматостатины, кортикостатины, тиреостатины и т.д.
Гипоталамо-гипофизарные связи. Гормоны гипофиза.
Гипоталамо-гипофизарная система — объединение структур гипофиза и гипоталамуса, выполняющее функции, как нервной системы, так и эндокринной. Этот нейроэндокринный комплекс является примером того, насколько тесно связаны в организме млекопитающих нервный и гуморальный способы регуляции.
Строение:Гипоталамо-гипофизарная система состоит из ножки гипофиза, начинающейся в вентромедиальной области гипоталамуса, и трёх долей гипофиза: аденогипофиз (передняя доля), нейрогипофиз (задняя доля) и вставочная доля гипофиза. Работа всех трёх долей управляется гипоталамусом с помощью особых нейросекреторных клеток. Эти клетки выделяют специальные гормоны — рилизинг-гормоны. Релизинг-факторы попадают в гипофиз, а точнее в аденогипофиз через воротную вену гипофиза.
Гормоны гипоталамо-гипофизарной системы:
Под влиянием того или иного типа воздействия гипоталамуса, доли гипофиза выделяют различные гормоны, управляющие работой почти всей эндокринной системы человека. Исключение составляет поджелудочная железа и мозговая часть надпочечников. У них есть своя собственная система регуляции.
Гормоны нейрогипофиза, их функции.
Задняя доля гипофиза (нейрогипофиз)
Гормонами нейрогипофиза являются антидиуретический гормон (АДГ) или вазопрессин и окситоцин. Образование гормонов задней доли гипофиза происходит в основном в ядрах гипоталамуса в результате процессов нейросекреции. АДГ, по-видимому, секретируется в супраоптическом ядре, а окситоцин - в паравентрикулярном ядре гипоталамуса. По аксонам нервных клеток эти гормоны поступают в заднюю долю гипофиза. Этому способствует наличие прямой нервной связи нейрогипофиза с ядрами гипоталамуса.
Механизм действия АДГ состоит в том, что под его воздействием усиливается реабсорбция воды в собирательных трубках почек. При снижении секреции АДГ возникает несахарный диабет, который сопровождается выделением больших количеств мочи (иногда десятки литров в сутки), что связано с нарушением реабсорбции воды в собирательных трубках. В больших дозах он вызывает сокращение гладких мышц сосудов (особенно артериол), что приводит к повышению артериального давления.
Окситоцин стимулирует сокращение гладких мышц матки и, таким образом, обеспечивает нормальное течение родового акта, влияет на отделение молока.
Гормоны аденогипофиза, их функции.
Гормоны передней доли гипофиза(аденогипофиз)
Соматотропин Гормон роста Обладает анаболическим воздействием, следовательно, как любой анаболик, СТ усиливает процессы синтеза (в особенности — белкового). Поэтому соматотропин называют часто «гормоном роста».
При нарушении секреции соматотропина возникает три типа патологий.
При снижении концентрации соматотропина человек развивается нормально, однако его рост не превышает 120 см - «гипофизарный нанизм». Такие люди (гормональные карлики) способны к деторождению и их гормональный фон не сильно нарушен.
При повышении концентрации соматотропина человек так же развивается нормально, однако его рост превышает 195 см. Такая патология называется «гигантизм»
После 20 лет выработка соматотропина снижается, следовательно, и формирование хрящевой ткани (как один из аспектов роста) замедляется и уменьшается. Поэтому костная ткань потихоньку «съедает» хрящевую ткань, следовательно кости некуда расти, кроме как в диаметре. Если выработка соматотропина не прекращается после 20, то кости начинают расти в диаметре. За счёт такого утолщения кости утолщаются например пальцы, и из-за этого утолщения они почти теряют подвижность. При этом соматотропин так же стимулирует выработку соединительной ткани, вследствие чего увеличиваются губы, нос, ушные раковины, язык и т. д. Эта патология называется «акромегалия».
Тиреотропин
Мишенью тиреотропина является щитовидная железа. Он регулирует рост щитовидной железы и выработку её основного гормона — тироксина. Пример действия релизинг-фактора: Тироксин необходим для повышения эффективности кислородного дыхания, для тироксина нужен тиреотропин, а для тиреотропина нужен тиреолиберин, который является релизинг-фактором тиреотропина.
Гонадотропины
Название гонадотропины (ГТ) обозначает два разным гормона — фолликулостимулирующий гормон и лютеинизирующий гормон. Они регулируют деятельность половых желез — гонад. Как и другие тропные гормоны, гонадотропины в первую очередь влияют на эндокринные клетки гонад, регулируя выработку половых гормонов. Кроме того, они оказывают влияние на созревание гамет, менструальный цикл и связанные с ним физиологические процессы.
Кортикотропные гормоны
Мишень КТ — кора надпочечников. Следует отметить, что паращитовидная железа регулирует минеральный обмен (с помощью парат-гормона), как и кора надпочечников, так что можно поставить регуляцию только на кору надпочечников, а паращитовидная железа автоматически будет работать в соответствии с корой надпочечников.
Эндокринная деятельность щитовидной железы. Гипоталамо-гипофизарная система регуляции эндокринной деятельности щитовидной железы.
Основной структурно-функциональной единицей щитовидной железы являются фолликулы. Фолликулы заполнены коллоидом и содержат гормоны тироксин и трийодтиронин, которые связаны с белком тиреоглобулином. В межфолликулярном пространстве находятся также С-клетки, в к-рых вырабатывается тиреокальцитонин. Действие гормонов щитовидной железы проявляется резким усилением метаболической активности организма. При этом ускоряются все виды обмена в-в , что приводит к увеличению энергообразования и повышению основного обмена.
В детском возрасте недостаток гормонов щитовидной железы приводит к задержке умственного и физического развития. У взрослых при гипофункции щитовидной железы наблюдается торможение нервно-психической активности; при избытке гормонов наблюдаются эмоциональная лабильность, возбуждение, бессонница.
Секреция гормонов щит. железы регулируется гипоталамическим тиреолиберином. Выработка тироксина и трийодтиронина резко усиливается в условиях длительного эмоционального возбуждения. Также секреция этих гормонов ускоряется при снижении температуры тела.
Йодсодержащие гормоны щитовидной железы, биосинтез и физиологическое действие йодсодержащих гормонов щитовидной железы.
Йодированные гормоны образуются в фолликулах железистой ткани, его образование происходит в три этапа:
1) образование коллоида, синтез тиреоглобулина;
2) йодирование коллоида, поступление йода в организм, всасывание в виде йодидов. Йодиды поглощаются щитовидной железой, окисляются в элементарный йод и включаются в состав тиреоглобулина, процесс стимулируется ферментом – тиреоидпероксиказой;
3) выделение в кровоток происходит после гидролиза тиреоглобулина под действием катепсина, при этом освобождаются активные гормоны – тироксин, трийодтиронин.
Роль йодированных гормонов:
1) влияние на функции ЦНС. Гипофункция ведет к резкому снижению двигательной возбудимости, ослаблению активных и оборонительных реакций;
2) влияние на высшую нервную деятельность. Включаются в процесс выработки условных рефлексов, дифференцировки процессов торможения;
3) влияние на рост и развитие. Стимулируют рост и развитие скелета, половых желез;
4) влияние на обмен веществ. Происходит воздействие на обмен белков, жиров, углеводов, минеральный обмен. Усиление энергетических процессов и увеличение окислительных процессов приводят к повышению потребления тканями глюкозы, что заметно снижает запасы жира и гликогена в печени;
5) влияние на вегетативную систему. Увеличивается число сердечных сокращений, дыхательных движений, повышается потоотделение;
6) влияние на свертывающую систему крови. Снижают способность крови к свертыванию (уменьшают образование факторов свертывания крови), повышают ее фибринолитическую активность (увеличивают синтез антикоагулянтов). Тироксин угнетает функциональные свойства тромбоцитов – адгезию и агрегацию.
Кальцитонин, паратирин, кальцитриол как компоненты системы гормональной регуляции кальциевого гомеостаза.
Кальцитонин - пептидный гормон щитовидной железы. Он получил свое название благодаря способности снижать концентрацию кальция в крови. Секретируется парафолликулярными С-клетками.
Кальцитонин - это главный антагонист паратиреодиного гормона, основным механизмом действия которого является торможение остеокластической костной резорбции.
Паратгормон
Человек имеет 2 пары околощитовидных желез, расположенных на задней поверхности или погруженных внутри щитовидной железы. Главные, или оксифильные, клетки этих желез вырабатывают паратгормон, или паратирин, или паратиреоидный гормон (ПТГ).
•паратгормон регулирует обмен кальция в организме и поддерживаетего уровень в крови.
•в костной ткани паратгормон усиливает функцию остеокластов, что приводит к деминерализации кости и повышению содержания кальция в плазме крови (гиперкальциемия).
•в почках паратгормон усиливает реабсорбцию кальция.
•в кишечнике повышение реабсорбции кальция происходит благодаря стимулирующему действию паратгормона на синтез кальцитриола –активного метаболита витамина D3.
Кальцитриол