Материал: Voprosy_s_otvetami_na_ekz_po_fize
Положение кривой диссоциации оксигемоглобина зависит от сродства гемоглобина с кислородом. При снижении сродства гемоглобина к О2, т.е. облегчении перехода О2 в ткани, кривая сдвигается вправо. Повышение сродства гемоглобина к О2 означает меньшее высвобождение кислорода в тканях, при этом кривая диссоциации сдвигается влево. Важным показате¬ лем, отражающем сдвиги кривой диссоциации оксигемоглобина, является параметр Р50, т.е. такое РО2, при котором гемоглобин насыщен кислоро¬ дом на 50 % (см. рис. 7.9). В нормальных условиях у человека (при t 37 °С, рН 7,40 и РаСО2= 40 мм рт.ст.) Р5о - 27 мм рт.ст. При сдвиге кривой дис¬ социации вправо Р50 увеличивается, а при сдвиге влево — снижается. На сродство гемоглобина к О2оказывают влияние большое количество метаболических факторов, к числу которых относятся рН, РСО2 темпера¬ тура, концентрация в эритроцитах 2,3-дифосфоглицерата (2,3-ДФГ). Сни¬ жение рН, повышение РСО2 и температуры снижают сродство гемоглоби¬ на к О2 и смещению кривой вправо. Такие метаболические условия созда¬ ются в работающих мышцах, и такой сдвиг кривой является физиологиче¬ ски выгодным, так как повышенное высвобождение О2необходимо для активной мышечной работы. В противоположность этому повышение рН, снижение температуры и снижение РСО2(такие условиях создаются в лег¬ ких) смещают кривую диссоциации оксигемоглобина влево (рис. 7.10).
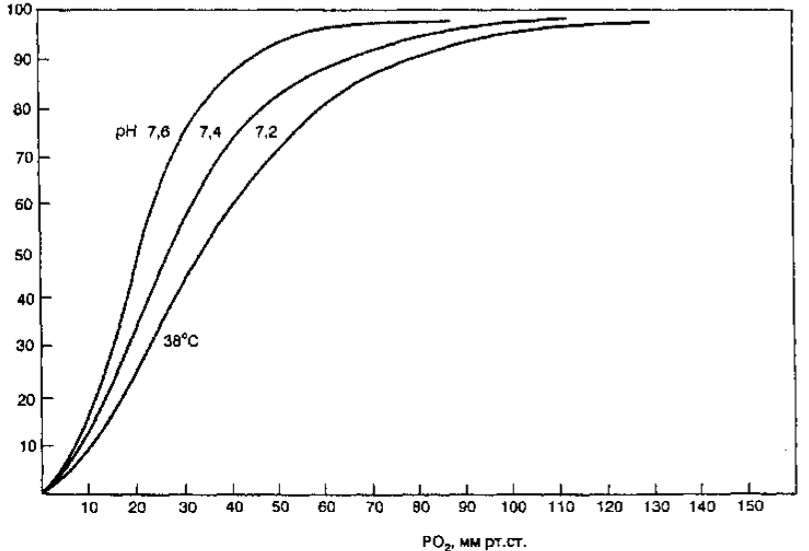
Влияние рН и РаСО2 на кривую диссоциации называется эффектом Бора. 2,3-ДФГ образуется в эритроцитах в процессе гликолиза и выполняет функцию главного энергетического субстрата (в эритроцитах отсутствуют митохондрии, поэтому не происходят реакции окислительного фосфорилирования, и АТФ не имеет большого значения как источник энергии). В условиях продолжительной гипоксии увеличивается содержание 2,3-ДФГ в эритроцитах, что приводит к снижению сродства гемоглобина к O2 и более интенсивному переходу его из крови в ткани. Снижение концентра¬ ции 2,3-ДФГ в эритроцитах приводит к сдвигу кривой диссоциации влево. На кривую диссоциации оксигемоглобина может оказать влияние и окись углерода (СО). СО имеет сродство к гемоглобину в 240 раз выше, чем О2, и, связываясь с гемоглобином, образует карбоксигемоглобин (НЬСО). При этом даже небольшие количества СО могут связать большую часть НЬ крови и значительно уменьшить содержание О2 крови. Кроме того, СО сдвигает кривую диссоциации влево, что препятствует высвобож¬ дению О2 в тканях и также усугубляет гипоксию. Еще одним фактором, влияющим на сродство НЬ к кислороду, является метгемоглобин — гемоглобин, содержащий железо, окисленное до Fе3+. У здорового человека общее содержание метгемоглобина не превышает 3 %, однако при приеме некоторых лекарств (например, фенацетин, суль¬ фаниламиды, нитроглицерин) и дефиците фермента метгемоглобин-редуктазы происходит образование значительных количеств метгемоглобина. Метгемоглобинемия вызывает смещение кривой диссоциации влево, т.е препятствует высвобождению в тканях, а при повышении концентрации метгемоглобина более 60 % происходит также и уменьшение нормального НЬ, что приводит к тяжелой гипоксии.
Транспорт углекислого газа кровью.
Углекислый газ является конечным продуктом клеточного метаболизма. СО2 образуется в тканях, диффундирует в кровь и переносится кровью к легким в трех формах: растворенной в плазме, в составе бикарбоната и в виде карбаминовых соединений эритроцитов. Количество СОг, растворимого в плазме, как и для О2 определяется за¬ коном Генри, однако его растворимость в 20 раз выше, поэтому количест¬ во растворенного СО2 довольно значительно и составляет до 5—10 % от общего количества СО2крови. Реакция образования бикарбоната описывается следующей формулой:
СО2 + Н2О <-> Н2СО3<-» Н+ + HCO3-.
Первая реакция протекает медленно в плазме и быстро — в эритроцитах, что связано с содержанием в клетках фермента карбоангидразы. Вторая ре¬ акция — диссоциация угольной кислоты — протекает быстро, без участия ферментов. При повышении в эритроците ионов HCO3- происходит их диффузия в кровь через клеточную мембрану, в то время как для ионов Н+ мембрана эритроцита относительно непроницаема и они остаются внутри клетки. Поэтому для обеспечения электронейтральности клетки в нее из плазмы входят ионы СГ (так называемый хлоридный сдвиг) (рис. 7.11). Высвобождающиеся ионы Н+ связываются с гемоглобином: Н+ + НЬО2 <-> Н+ • НЬ + O2.
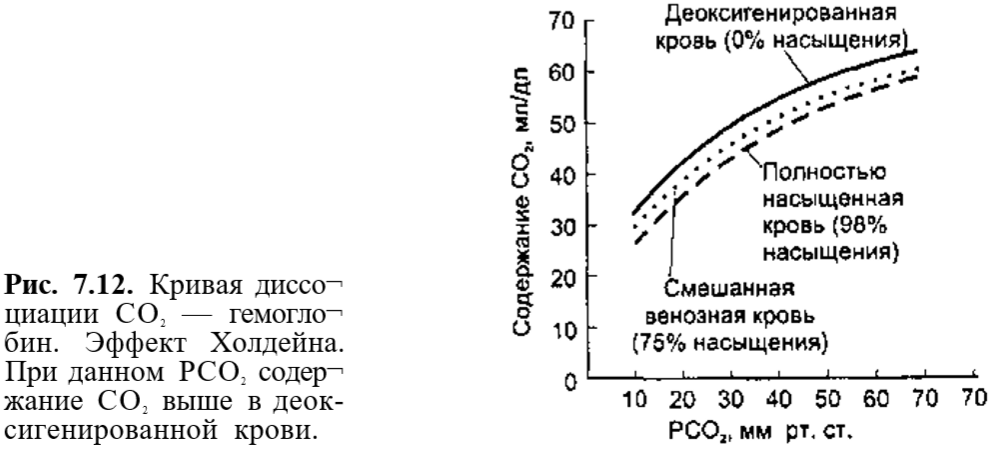
Восстановленный гемоглобин является более слабой кислотой, чем оксигемоглобин. Таким образом, наличие восстановленного НЬ в венозной крови способствует связыванию СО2, тогда как окисление НЬ в сосудах легких облегчает его высвобождение. Такое повышение сродства СО2 к ге¬ моглобину называется эффектом Холдейна. На долю бикарбоната прихо¬ дится до 90 % всего СОг, транспортируемого кровью. Карбаминовые соединения образуются в результате связывания СО2 с концевыми группами аминокислот белков крови, важнейшим из которых является гемоглобин (его глобиновая часть): НЬ • NH2 + СО2 ----- НЬ • NH • СООН. В ходе этой реакции образуется карбаминогемоглобин. Реакция протека¬ ет быстро и не требует участия ферментов. Как и в случае с ионами Н+, вос¬ становленный НЬ обладает большим сродством к СО2, чем оксигемоглобин.
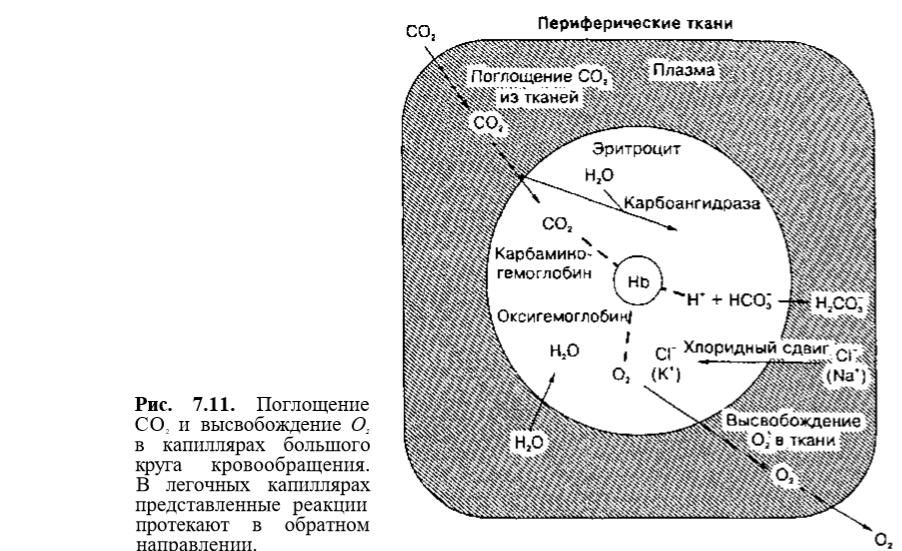
Поэтому деоксигенированный гемоглобин облегчает связывание СО2 в тка¬ нях, а соединение НЬ с О2 способствует высвобождению СО2. В виде карбаминовых соединений содержится до 5 % общего количества СО2 крови. Кривая диссоциации СО2 — гемоглобин значительно отличается от кривой диссоциации оксигемоглобина — она более линейна (рис. 7.12). Концентрация СО2 при любой величине РСО2 зависит от степени насы¬ щения гемоглобина кислородом: чем выше насыщение, тем меньше кон¬ центрация СО2 (эффект Холдейна). Определение парциального напряжения О2 и СО2 крови проводится при помощи автоматических газоанализаторов, использующих для каждого из измеряемых газов специальный электрод.
Дыхательный центр продолговатого мозга, его функции. Локализация и функциональные свойства дыхательных нейронов продолговатого мозга.
Ритмическая последовательность вдоха и выдоха, а также изменение характера дыхательных движений в зависимости от состояния организма (покой, работа различной интенсивности, эмоциональные проявления и т. д.) регулируются дыхательным центром, расположенным в продолговатом мозге. Дыхательным центром называется совокупность нейронов, обеспечивающих деятельность аппарата дыхания и его приспособление к изменяющимся условиям внешней и внутренней среды.
В дыхательном центре имеются две группы нейронов: инспираторные и экспираторные. Обнаружены некоторые особенности в работе дыхательного центра. При спокойном дыхании активна только небольшая часть дыхательных нейронов, и, следовательно, в дыхательном центре есть резерв нейронов, который используется при повышенной потребности организма в кислороде. Установлено, что между инспираторными и экспираторными нейронами дыхательного центра существуют функциональные взаимосвязи. Они выражаются в том, что при возбуждении инспираторных нейронов, обеспечивающих вдох, деятельность экспираторных нервных клеток заторможена, и наоборот. Таким образом, одной из причин ритмичной, автоматической деятельности дыхательного центра являются взаимосвязанные функциональные отношения между этими группами нейронов.
Дыхательный центр, расположенный в продолговатом мозге, посылает импульсы к мотонейронам спинного мозга, иннервирующим дыхательные мышцы. Диафрагма иннервируется аксонами мотонейронов, расположенных на уровне III—IV шейных сегментов спинного мозга. Мотонейроны, отростки которых образуют межреберные нервы, иннервирующие межреберные мышцы, расположены в передних рогах (III—XII) грудных сегментов спинного мозга.
Регуляция деятельности дыхательного центра
Механизм первого вдоха новорожденного. В организме матери газообмен плода происходит через пупочные сосуды, тесно контактирующие с плацентарной кровью матери. После рождения ребенка и отделения плаценты указанная связь нарушается. Метаболические процессы в организме новорожденного приводят к образованию и накоплению углекислого газа, который, так же как и недостаток кислорода, гуморально возбуждает дыхательный центр. Кроме того, изменение условий существования ребенка приводит к возбуждению экстеро- и проприорецепторов, что также является одним из механизмов, принимающих участие в осуществлении первого вдоха новорожденного.
Влияние клеток коры большого мозга на активность дыхательного центра.
Учащение и углубление дыхания, которые наступают до начала физической работы или спортивных состязаний, осуществляются по механизму условных рефлексов. Эти изменения в дыхательных движениях отражают сдвиги в активности дыхательного центра и имеют приспособительное значение, способствуя подготовке организма к выполнению работы, требующей большой затраты энергии и усиления окислительных процессов.
По мнению М.Е. Маршака, корковая регуляция дыхания обеспечивает необходимый уровень легочной вентиляции, темп и ритм дыхания, постоянство уровня углекислого газа в альвеолярном воздухе и артериальной крови.
По М.В. Сергиевскому, регуляция активности дыхательного центра представлена тремя уровнями.
Первый уровень регуляции — спинной мозг. Здесь располагаются центры диафрагмальных и межреберных нервов, обусловливающие сокращение дыхательных мышц.
Второй уровень регуляции — продолговатый мозг. Здесь находится дыхательный центр, который перерабатывает разнообразные афферентные импульсы, идущие от дыхательного аппарата, а также от основных рефлексогенных сосудистых зон
Третий уровень регуляции — верхние отделы головного мозга, включающие и корковые нейроны. Только при участии коры большого мозга возможно адекватное приспособление реакций системы дыхания к изменяющимся условиям окружающей среды.
Локализация и функциональные свойства дыхательных нейронов продолговатого мозга.
Нейроны дыхательного центра локализованы в дорсомедиальной и вентролатеральной областях продолговатого мозга и образуют так называемые дорсальную и вентральную дыхательную группу.
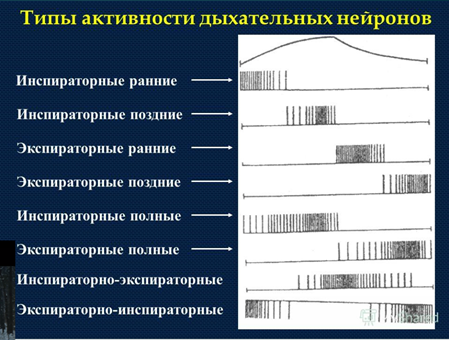
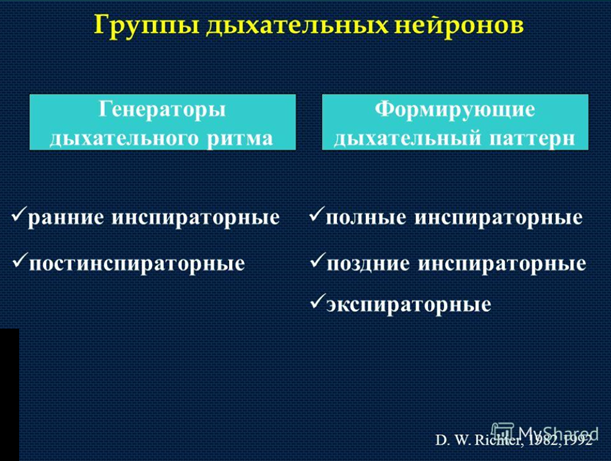
Дыхательные нейроны, активность которых вызывает инспирацию или экспирацию, называются соответственно инспираторными и экспираторными нейронами. Инспираторные и экспираторные нейроны иннервируют дыхательные мышцы. В дорсальной и вентральной дыхательной группах продолговатого мозга обнаружены следующие основные типы дыхательных нейронов: 1) ранние инспираторные, которые разряжаются с максимальной частотой в начале фазы вдоха; 2) поздние инспираторные, максимальная частота разрядов которых приходится на конец инспирации; 3) полные инспираторные с постоянной или постепенно нарастающей активностью в течение фазы вдоха; 4) постинспираторные, которые имеют максимальный разряд в начале фазы выдоха; 5) экспираторные с постоянной или постепенно нарастающей активностью, которую они проявляют во вторую часть фазы выдоха; 6) преинспираторные, которые имеют максимальный пик активности непосредственно перед началом вдоха. Тип нейронов определяется по проявлению его активности относительно фазы вдоха и выдоха.
Дыхательные нейроны спинного мозга и варолиевого моста, их роль в регуляции вентиляции легких.
В мосту находятся два ядра дыхательных нейронов: медиальное парабрахиальное ядро и ядро Келликера—Фюзе. Иногда эти ядра называют пневмотаксинеским центром. В первом ядре находятся преимущественно инспираторные, экспираторные, а также фазовопереходные нейроны, а во втором — инспираторные нейроны. Предполагают, что дыхательные нейроны моста регулируют смену фаз дыхания и скорость дыхательных движений. В сочетании с двусторонней перерезкой блуждающих нервов разрушение указанных ядер вызывает остановку дыхания на вдохе.
Диафрагмальные мотонейроны своими аксонами образуют диафрагмальный нерв. Нейроны расположены узким столбом в медиальной части вентральных рогов от С3 до С4. Диафрагмальный нерв состоит из 700—800 миелиновых и более 1500 безмиелиновых волокон. Подавляющее количество волокон является аксонами а-мотонейронов, а меньшая часть представлена афферентными волокнами мышечных и сухожильных веретен, локализованных в диафрагме, а также рецепторов плевры, брюшины и свободных нервных окончаний самой диафрагмы.
Мотонейроны сегментов спинного мозга, иннервирующие дыхательные мышцы. На уровне С1—С2 вблизи латерального края промежуточной зоны серого вещества находятся инспираторные нейроны, которые участвуют в регуляции активности межреберных и диафрагмальных мотонейронов (см. рис. 7.14).
Мотонейроны, иннервирующие межреберные мышцы, локализованы в сером веществе передних рогов на уровне от Тh4 до Тh10.
Мотонейроны, иннервирующие мышцы брюшной стенки, локализованы в пределах вентральных рогов спинного мозга на уровне Th4-L3.
Генерация дыхательного ритма. Классификация инспираторных и экспираторных нейронов дыхательного центра продолговатого мозга.
Ритмическое сокращение и расслабление дыхательных мышц обеспечивается циркуляцией возбуждения в дыхательных нейронах продолговатого мозга, а также взаимодействием импульсации нейронов продолговатого мозга с импульсацией дыхательных нейронов моста. Дыхательный цикл подразделяют на фазу вдоха и фазу выдоха относительно движения воздуха из атмосферы в сторону альвеол (вдох) и обратно (выдох). Двум фазам внешнего дыхания соответствуют три фазы активности нейронов дыхательного центра продолговатого мозга: инспираторная, которая соответствует вдоху; постинспираторная, которая соответствует первой половине выдоха и называется пассивной контролируемой экспирацией; экспираторная, которая соответствует второй половине фазы выдоха и называется фазой активной экспирации (рис. 24).
Дыхательный цикл начинается с возбуждения ранних инспираторных нейронов, которые полностью освобождаются от сильного торможения со стороны постинспираторных нейронов. Полное растормаживание ранних инспираторных нейронов происходит в момент, когда активируются преинспираторные нейроны дыхательного центра, которые окончательно блокируют разряд экспираторных нейронов. Далее возбуждение переходит на полные инспираторные нейроны, которые способны совозбуждать друг друга. Полные инспираторные нейроны, благодаря этому свойству, поддерживают и увеличивают частоту генерации потенциалов действия в течение фазы вдоха. Именно этот тип дыхательных нейронов создает нарастающую активность в диафрагмальном и межреберных нервах, вызывая увеличение силы сокращения диафрагмы и наружных межреберных мышц.
Ранние инспираторные нейроны в силу особых физиологических свойств их мембраны прекращают генерировать потенциалы действия к середине фазы вдоха. Это моносинаптически растормаживает поздние инспираторные нейроны, поэтому их активность появляется в конце вдоха.
Поздние инспираторные нейроны способны дополнительно активировать в конце вдоха сокращение диафрагмы и наружных межреберных мышц. Одновременно поздние инспираторные нейроны выполняют функцию начального выключения инспирации. В период своей активности они получают возбуждающие стимулы от легочных рецепторов растяжения, которые измеряют степень растяжения дыхательных путей во время вдоха. Максимальный по частоте разряд поздних инспираторных нейронов приходится на момент прекращения активности других типов инспираторных нейронов дыхательного центра.
Прекращение активности всех типов инспираторных нейронов дыхательного центра растормаживает постинспираторные нейроны. Причем процесс растормаживания постинспираторных нейронов начинается гораздо раньше, а именно в период убывания разрядов ранних инспираторных нейронов. С момента появления активности постинспираторных нейронов выключается инспирация и начинается фаза пассивной контролируемой экспирации. Постинспираторные нейроны регулируют степень расслабления диафрагмы в первую половину фазы выдоха. В эту фазу заторможены все другие типы нейронов дыхательного центра. Однако в постинспираторную фазу сохраняется активность респираторно-связанных нейронов дыхательного центра, которые регулируют тонус мышц верхних дыхательных путей, прежде всего гортани.
Вторая половина фазы выдоха, или фаза активной экспирации, полностью зависит от механизма ритмогенеза инспираторной и постинспираторной активности. Например, при быстрых дыхательных движениях постинспираторная фаза может непосредственно переходить в фазу следующей инспирации.
Активность дыхательных мышц в течение трех фаз нейронной активности дыхательного центра тоже изменяется (рис. 24). В инспирацию мышечные волокна диафрагмы и наружных межреберных мышц постепенно увеличивают силу сокращения. В этот же период активируются мышцы гортани, которые расширяют голосовую щель, что снижает сопротивление воздушному потоку на вдохе. Работа инспираторных мышц во время вдоха создает достаточный запас энергии, которая высвобождается в постинспираторную фазу, или в фазу пассивной контролируемой экспирации. В постинспираторную фазу дыхания объем выдыхаемого из легких воздуха контролируется медленным расслаблением диафрагмы и одновременным сокращением мышц гортани. Сужение голосовой щели в постинспираторную фазу увеличивает сопротивление воздушному потоку на выдохе. Это является очень важным физиологическим механизмом, который препятствует спадению воздухоносных путей легких при резком увеличении скорости воздушного потока на выдохе, например при форсированном дыхании или защитных рефлексах кашля и чиханья.
Во вторую фазу выдоха, или фазу активной экспирации, экспираторный поток воздуха усиливается за счет сокращения внутренних межреберных мышц и мышц брюшной стенки. В эту фазу отсутствует электрическая активность диафрагмы и наружных межреберных мышц.
Координация деятельности правой и левой половин дыхательного центра является еще одной функцией дыхательных нейронов. Дыхательный центр имеет дорсальную и вентральную группу нейронов как в правой, так и в левой половине продолговатого мозга и таким образом состоит из двух симметричных половин. Эта функция выполняется за счет синаптического взаимодействия различных типов дыхательных нейронов. Дыхательные нейроны взаимосвязаны как в пределах одной половины дыхательного центра, так и с нейронами противоположной стороны. При этом наибольшее значение в синхронизации деятельности правой и левой половин дыхательного центра имеют проприобульбарные дыхательные нейроны и экспираторные нейроны комплекса Бетцингера.
Рефлексы регуляции дыхания с рецепторов слизистой полости носа, гортани, трахеи, бронхиол и J-рецепторов.
Рефлекторные механизмы.
Рефлексы со слизистой оболочки носа. Раздражение ирритантных рецепторов слизистой оболочки носа вызывает сужение бронхов, голосовой щели, брадикардию, снижение сердечного выброса, сужение просвета сосудов кожи и мышц. Защитный рефлекс проявляется у новорожденных при кратковременном погружение в воду.
Рефлексы с глотки. Механическое раздражение рецепторов вызывает сильнейшее сокращение диафрагмы, наружных межреберных мышц, вдох, который открывает дыхательный путь через носовые ходы (аспирационный рефлекс). Этот рефлекс выражен у новорожденных.
Рефлексы с гортани и трахеи. Раздражение нервных окончаний вызывает кашлевой рефлекс, проявляющийся в резком выдохе на фоне сужения гортани, и сокращение гладких мышц бронхов, которые сохраняются долгое время после рефлекса. Кашлевой рефлекс - основной легочной рефлекс блуждающего нерва.
Рефлексы с рецепторов бронхиол. Многочисленные миелинизированные рецепторы находятся в эпителии внутрилегочных бронхов и бронхиол. Их раздражение вызывает гиперпноэ, бронхоконстрикцию, сокращение гортани, гиперсекрецию слизи, но никогда не сопровождается кашлем.
Рефлексы с J-рецепторов. В альвеолярных перегородках в контакте с капиллярами находятся особые J-рецепторы, которые чувствительны к интерстициальному отеку, легочной венозной гипертензии, раздражающим газам и ингаляц наркотическим веществам. Стимуляция J-рецепторов вызывает вначале апноэ, затем поверхностное тахипноэ, гипотензию и брадикардию.
Рефлексы регуляции дыхания с рецепторов растяжения легких (Геринга-Брейера) и проприорецепторов грудной клетки.
Различают постоянные и непостоянные (эпизодические) рефлекторные влияния на функциональное состояние дыхательного центра.
Постоянные рефлекторные влияния возникают в результате раздражения рецепторов альвеол (рефлекс Геринга—Брейера), корня легкого и плевры (пульмоторакальный рефлекс), хеморецепторов дуги аорты и сонных синусов (рефлекс Гейманса), проприорецепторов дыхательных мышц.
Наиболее важным рефлексом является рефлекс Геринга—Брейера. В альвеолах легких заложены механорецепторы растяжения и спадения, являющиеся чувствительными нервными окончаниями блуждающего нерва. Рецепторы растяжения возбуждаются при обычном и максимальном вдохе, т. е. любое увеличение объема легочных альвеол возбуждает эти рецепторы. Рецепторы спадения становятся активными только в условиях патологии (при максимальном спадении альвеол).
Пульмоторакальный рефлекс возникает при возбуждении рецепторов, заложенных в легочной ткани и плевре. Проявляется этот рефлекс при растяжении легких и плевры. Рефлекторная дуга замыкается на уровне шейных и грудных сегментов спинного мозга. Конечным эффектом рефлекса является изменение тонуса дыхательной мускулатуры, благодаря чему происходит увеличение или уменьшение среднего объема легких.