Материал: Меженська Л.О., Меженський В.М. Рід Глід (Crataegus L.) в Україні інтродукція, селекція, еколого-біологічні особливості
встановити філогенетичні відносини між родами Crataegus і Mespilus (Lo et al., 2007; Lo, 2008). Топології, що були виведені з аналізу ITS і LEAFY, не конфліктували між собою. Натомість аналіз хлоропластних даних виявив конфлікти у відношенні C. brachyacantha з M. germanica, M. canescens,а також трьох видів C. marshallii, C. phaenopyrum та C. spathulata. Останні види глоду належать до трьох різних секцій, відповідно, Crataegus, Cordatae та Microcarpae. Ядерна філогенія об'єднала їх в окремій кладі, тоді як аналіз хлоропластних даних розсіяв серед таксонів інших клад, через що їх було виключено з подальшого ана-
лізування. Асоціація C. brachyacantha, M. germanica та M. canescens в окремій кладі була зруйнована внаслідок аналізу хлоропластних даних методом найбільшої правдоподібності, і C. brachyacantha показав себе сестринським до всіх видів Crataegus. Пристосувати цей відносно ізольований вид секції Brevispinae в межах роду Crataegus можна перенесенням іншого виду цієї секції – C. saligna до секції Douglasianae (мал. 10).
Інконгруєнтність між ядерними і хлоропластними деревами може бути викликаною недавньою гібридизацією між таксонами, що рано дивергували. Найвірогіднішим є складне гібридне походження M. canescens внаслідок первинного запилення C. brachyacantha пилком інтродукованої M. germanica, яку культивували в тій місцевості в XIX сторіччі. Гібридні рослини, що виросли з гібридного насіння, згодом були запилені якимось іншим видом Crataegus. Гіпотези про зворотнє схрещування первинного гібриду з M. germanica або про походження M. canescens від іншого виду мушмули, що не зберігся до наших часів, є менш вірогідними. Так як C. brachyacantha займає сестринське положення до інших видів роду Crataegus, а не до M. germanica, виникає питання чи потрібно включати M. germanica в Crataegus. Різниця між цими двома родами менше ніж між ними і сестринським родом Amelanchier. У випадку вилучення M. canescens з даних, що аналізувалися на предмет філогенетичних відношень, гіпотеза що Crataegus и Mespilus є двома різними родами не виключається. Але, через те, що кількість морфологічних відмінностей між кладою Mespilus-Crataegus і Amelanchier є значно більшою, аніж тих за якими відрізняються Mespilus і Crataegus один від одного, за доцільне включити монотипний Mespilus як сек-
цію до роду Crataegus (Lo et al., 2007; Lo, 2008).
Наступне дослідження (Lo, 2008; Lo et al., 2009a) охоплювало 72 види, що репрезентували 15 секцій роду Crataegus. Метою роботи було встановлення взаємозв'язків між видами Нового і Старого світу, використовуючи комбінацію хлоропластних (ділянки trnG-trnS, psbA-trnH, trnH-rpl2, rpl20-rps12) і ядерних сегменті (ITS, інтрони LEAFY, 3’-PISTILLATA, 5’-PEPC). Хлоропластні дані визначають три головні клади – А, В, С (мал. 11a).
25

Мал. 10. Філогенетичні дерева, що базуються на комбінованих ядерних і хлоропластних даних, визначених методами (a) найбільшої економії (МР)
та (b) найбільшої правдоподібності (ML) (Lo et al., 2007; Lo, 2008)
Примітки: На малюнку (a) наведені бутстреп (над гілками) і апостеріорна вірогідність (під гілками) > 50%; пунктирною рискою позначено гілку, що руйнується методом МР. На малюнку (b) вузли з бутстрепом зі значенням > 50% наведено над гілками
26
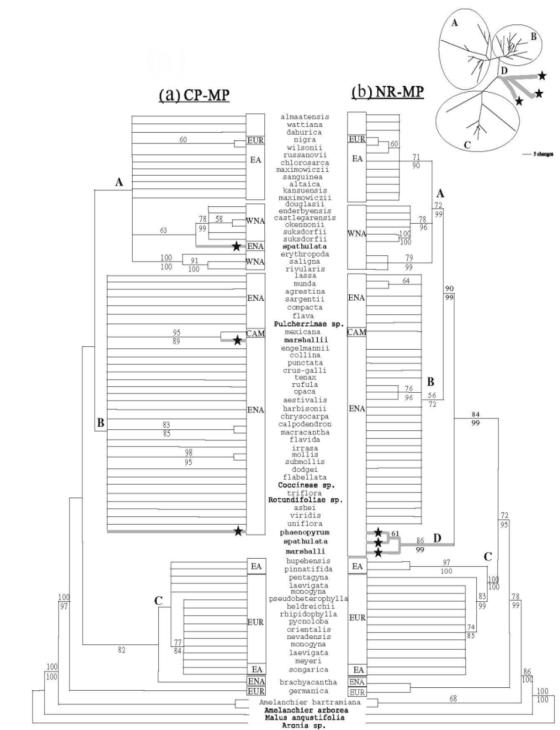
Мал. 11. Філогенетичні дерева, що базуються на комбінованих хлоропластних (a) і ядерних (b) даних, визначених методом найбільшої економії (МР)
(Lo, 2008; Lo et al., 2009a)
Примітки: На вставці у верхньому правому куті зображено філограму, що представляє одне з МР дерев з ядерного набору даних, для ілюстрації довжини гілок. Види Східної Азії (ЕА), заходу Північної Америки (WNA), сходу Північної Америки (ENA), Центральної Америки (САМ) і Європи (EUR) належать до трьох клад: (А) – таксони секції Douglasianae і секції Sanguineae; (В) – таксони секцій ENA; (С) – таксони серій Crataegus і Hupehensis. Значення бутстрепу й апостеріорної вірогідності > 50% наведено у вузлах, відповідно, над і під гілками. Зірочками позначено три таксони ENA, що мають конфліктне положення між хлоропластними і ядерними деревами.
27
Клада А містить східноазійські види секції Sanguineae і види секції Douglasianae, що поширені на заході Північної Америки. До неї належить також С. spathulata з моновидової секції Microcarpae, що трапляється на сході Північної Америки. Сестринська до клади А клада В складається з представників 8 секцій зі сходу Північної Америки, в тому числі моновидової секції Cordatae
(C. phaenopyrum) та моновидової серії Apiifoliae (C. marshallii) секції Crataegus.
До клади С, що є сестринською до клад А і В, належать європейські і східноазійські види секції Crataegus та східноазійський С. hupehensis з секції
Hupehenses.
Ядерні дані забезпечують сильнішу підтримку будстрепу і краще рішення для клад А–С, ніж хлоропластні дані (мал. 11b). Зокрема, вони забезпечують додаткову підтримку асоціації східноазійських і західно-північноамерикансь- ких видів у кладі А. Ядерні дані виокремлюють четверту кладу D, що є сестринською до видів клади В і містить три вищезазначені види C. marshallii, C. phaenopyrum, C. spathulata, які представляють моновидові групи.
Подальший аналіз молекулярних даних довів монофілетичність секції
Sanguineae, серій Douglasianae і Cerrones. У кладі В тільки секція Aestivales є
монофілетичною з підтримкою будстрепу й апостеріорної вірогідності <50%. Серед видів секції Coccineae ідентифіковано дві пари сестринських видів –
С. calpodendron і С. macracantha (серія Macracanthae) та С. mollis і С. submollis (серія Molles). Представники секцій Parvifoliae (С. uniflora) і Virides (С. viridis) є
перемішаними з представниками секцій Coccineae і Crus-galli без відповідності до існуючих систем класифікації. Внутрішні гілки філогенетичних дерев у кладі В значно коротші в порівнянні з кладою А, що свідчить про швидку дивергенцію видів глоду на сході Північної Америки. У кладі С сестринські відно-
шення мають С. hupehensis (секція Hupehenses) і С. pinnatifida (секція Crataegus). Ці два види виокремлені від інших видів клади С.
Аналіз молекулярних даних дозволив з'ясувати питання еволюції видів роду Crataegus. Європа і схід Північної Америки є найвірогіднішими предковими територіями для роду Сrataegus, з пропорційною правдоподібністю, відповідно, 0,74 і 0,23 (мал. 12). Інші біогеографічні території, такі як Східна Азія, захід Північної Америки і Центральна Америка, мають найменше значення пропорційної правдоподібності = 0,1. Сучасне поширення видів глоду можна пояснити на підставі принаймні чотирьох випадків розсіювання. Предки С. hupehensis, С. songarica і С. pinnatifida поширювалися з Європи до Східної Азії.
Предки видів зі сходу Північної Америки дивергували в Мексиці і Центральній Америці та на заході Північної Америки. Предки із заходу Північної Америки мігрували до Східної Азії або навпаки. Визначено, що С. brachyacantha відокремився від інших видів роду 16.5 ± 3.7 млн. років тому. Час
28

Мал. 12. Біогеографічна модель для Crataegus, що базується на молекулярних філогеніях та результатах, які отримано методами еволюційного аналізу та розсіювання і географічногозаміщення
(Lo, 2008; Lo et al., 2009a)
Примітки: Біогеографічні дослідження виконано на основі об'єднаного хлоропластноядерного дерева. Види позначено як п'ять біогеографічних територій, що наведені кружечками нижче малюнка. Потенціальне розсіювання і події географічного заміщення позначено великими чорними цятками. Сектора в колах кожного вузла вказують пропорційну правдоподібність біогеографічних територій до анцестрального стану кожної клади видів, які оцінено методом найбільшої правдоподібності. Найнедавніші спільні території (MRCA) для кожного вузла, як й для кореня Crataegus, що базується на методі найбільшої економії позначено в міжвузлях. Штриховою лінією позначено вірогідного нащадка по батьківській лінії гібридних таксонів клади D, який може бути вимерлим. Пунктирні лінії позначають вірогідну гібридизацію, що мала місце між північноамериканськими видами(A2 and B) і предками європейських нащадків, які тепер зникли. Вірогідні нащадки по материнській лінії гібридних таксонів позначено зірочками. Cb і Cg позначають, відповідно,С. brachyacantha і С. germanica.
дивергенції між європейськими (клада С) і азійсько-американськими (клади А і В) нащадками оцінюється в 14.3 ± 3 млн. років (приблизно в кінці міоцену). Він супроводжувався розколом між нащадками на сході Північної Америки та на заході Північної Америки разом зі Східною Азією приблизно 9.9 ± 1.7 млн. років (у ранньому пліоцені). Таксони сходу Північної Америки дивергували
29