Материал: Voprosy_s_otvetami_na_ekz_po_fize
Впервые это явление было обнаружено канадским нейрохирургом Уайлдером Пэнфилдом в ходе операций на головном мозге при местной анестезии. Чтобы убедиться, что те или иные иссечения мозга не приведут к катастрофическим последствиям, Пенфилд стимулировал кору в различных точках и спрашивал пациента, что он чувствует. Поскольку размеры РП кортикальных клеток варьируют так сильно, получившаяся карта чрезвычайно неизоморфна.
Интерорецепторы, их характеристика. Проводящие пути и центры висцеральной сенсорной системы.
Висцерорецепция – это восприятие висцерорецепторами изменений условий внутренней среды и состояния внутренних органов, передача информации в ЦНС и восприятие ее сенсорными нейронами коры больших полушарий.
Рецепторы висцеральной системы воспринимают разнообразные изменения внутренней среды организма, посылают информацию в ЦНС, участвуя таким образом в работе внутренних органов и поддержании гомеостаза в организме (химического состава, осмотического давления, температуры внутренней среды, давления крови в сосудах, давления и наполнения внутренних полых органов).
Периферический отдел висцеральной системы представлен соответствующими рецепторами. Висцероцепторы находятся во внутренних органах, тканях, сосудах (механо-, хемо-, термо- и осморецепторы).
Механорецепторы (баро- и волюморецепторы) расположены в сосудах, легких, ЖКТ и др. Для них адекватным стимулом является растяжение, деформация стенок органов.
Хеморецепторы находятся в аортальных и каротидных клубочках, в слизистых оболочках пищеварительного тракта, органов дыхания, в серозных оболочках, в головном мозгу.
Осморецепторы локализованы в аортальном и каротидном синусах, в интерстициальной ткани вблизи капилляров, внутри сосудов артериального русла, в печени и др. органах, а также в гипоталамусе (нейроны – осмометры). Часть осморецепторов является механорецепторами, часть – хеморецепторами (например, Na+ -рецепторы, гликорецепторы).
Терморецепторы находятся в слизистой оболочке пищеварительного тракта, органов дыхания, мочевого пузыря, в серозных оболочках, в стенках артерий и вен, в каротидном синусе, а также в ядрах гипоталамуса.
Все рецепторы висцеральной системы являются первично-чувствующими (за исключением вторично-чувствующих хеморецепторов каротидного клубочка).
Проводниковый отдел представлен в основном чувствительными волокнами вегетативных и соматических нервов, частично-смешанными нервами, в состав которых входят вегетативные волокна.
Чувствительные нейроны находятся в спинальных ганглиях или ганглиях черепно-мозговых нервов, промежуточные – в спинном мозге или в стволе мозга. Восходящие пути от них поступают к заднемедиальным ядрам таламуса и от него к лимбической системе. Проекции висцеральных нервов обнаружены также в мозжечке.
Корковый отдел локализуется в соматосенсорной области и в орбитальной части коры большого мозга. В коре замыкаются натуральные вегетативные условные рефлексы, являющиеся важным приспособительным ответом организма в различных условиях жизнедеятельности. Восприятие некоторых интероцептивных стимулов может сопровождаться возникновением четких локализованных ощущений:например, при растяжении стенок желудка, мочевого пузыря или прямой кишки. Но висцеральная импульсация от сердца, печени,почек обычно не вызывает ощущений, что является сигналом благополучного состояния организма.
Физиологическая роль боли. Теории происхождения боли.
Болевая (ноцицептивная) чувствительность – имеет большое значение для выживания организма, так как:
Сигнализует об опасности при действии различных агентов
Симптом многих заболеваний
Важный показатель диагностики
Ноцицептивная чувствительность — это восприятие стимулов, вызывающих в организме ощущение боли. Ощущение боли коренным. образом отличается от других сенсорных модальностей содержанием информации, которую она в себе заключает. Боль информирует организм об опасности, о нарушениях в процессах, протекающих в различных органах и тканях, поскольку вызывается повреждающими, вредными для организма стимулами. Трудно переоценить значение этой информации для клиники, так как именно болевое проявление действия вредных факторов чаще всего приводит пациента к врачу. Более того, ощущение боли, при всей его субъективности, оказывается часто решающим для диагноза заболевания.
Теории возникновения боли.
Теория специфичности утверждает, что боль представляет собой отдельную сенсорную систему, в которой любой повреждающий стимул активирует специальные болевые рецепторы (ноцицепторы), передающие болевой импульс по специальным нервным путям в спинной мозг и в болевые центры головного мозга, вызывая ответную защитную реакцию, направленную на удаление от раздражителя.
Теория интенсивности утверждает, что ощущение боли возникает при раздражении любого рецептора избыточным стимулом (шум, свет).
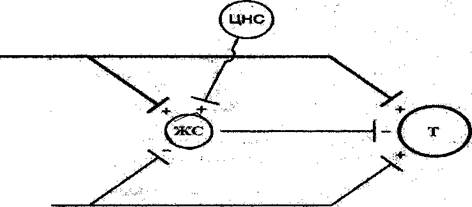
Теория воротного контроля Поток болевой импульсации с периферии идет в задний рог спинного мозга по большим миелинизированным (А-дельта) и малым немиелинизированным (С-волокнам) нервным волокнам. Оба типа волокон образуют синапсы с нейронами второго порядка (Т) ("передача/проекция"). Когда Т-нейроны активированы, они поставляют ноцицептивную информацию в мозг.
Периферические нервные волокна также образуют синапсы с интернейронами желатинозной сустанции (ЖС), которые при стимуляции угнетают Т-нейроны. А-дельта волокна стимулируют, а С-волокна угнетают интернейроны ЖС, соответственно снижая и повышая центральную передачу ноцицептивных входящих сигналов.
Кроме того, стимуляция интернейронов ЖС на подавление активности Т-нейронов происходит через нисходящие пути, начинающиеся в центральной нервной системе (это происходит при активации различными факторами). Баланс между возбуждающими и угнетающими сигналами определяет степень передачи ноцицептивной информации в головной мозг («+» - возбуждающий сигнал; «-» - угнетающий сигнал) (рис, 2.7.2.).
А-дельта волокна |
 С-вюлокна
Классификация физиологической боли. Отраженная и проецированная боль, механизмы их развития.
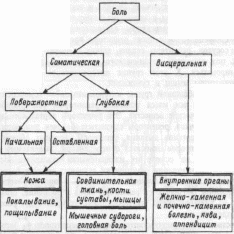
Существуют и особые виды боли — проецируемая и отраженная. В качестве примера причины проецируемой боли можно привести резкий удар по локтевому нерву, проходящему в области локтя у самой поверхности. Подобный удар вызывает очень неприятное, трудноописываемое ощущение, распространяющееся на те участи руки, которые обслуживаются этим нервом — на участок от локтя до кисти и на саму кисть. В принципе, проецируемые ощущения могут возникать в рамках любой сенсорной модальности, причем, многие длительные проецируемые боли, в отличие от боли от удара по локтевому нерву, имеют клиническое значение. Механизм их возникновения объясняется следующим. Сигналы, вызываемые ненормальной стимуляцией афферентного волокна, передаются обычно в мозг по латеральному спинно-таламическому тракту, порождая там ощущения, относимые к области, которую иннервирует данное афферентное волокно. Одна из распространенных причин проецируемых болей — это пережатие спинальных нервов в местах их вхождения в спинной мозг в результате повреждения межпозвонковых хрящевых дисков. Афферентные импульсы в ноцицептивных волокнах при такой патологии вызывают болевые ощущения, которые проецируются в область, связанную с травмируемым спинальным нервом.
Отраженная боль отличается от проецирумой боли тем, что она вызывается не прямой стимуляцией нервных волокон, а раздражением каких-либо рецептивных окончаний. Отраженными болями называются болевые ощущения не во внутренних органах, от которых поступают болевые сигналы, а в расположенных на некотором расстоянии от больного органа поверхностных областях. Хорошо известный пример отраженной боли — боль, возникающая в сердце, но ощущаемая в плече и в узкой полоске на медиальной поверхности руки. Так как взаимоотношения между отдельными участками кожи (дерматомами) и внутренними органами хорошо известны, подобные отраженные боли играют большую роль в диагностике различных заболеваний. Механизм возникновения отраженной боли сводится к следующему. Некоторые кожные болевые афференты и болевые эфференты, идущие от внутренних органов, при вхождении в один и тот же сегмент спинного мозга могут конвергировать на один и тот же нейрон. Возбуждение таких клеток на периферии интерпретируется человеком как боль.
Система подавления боли (антиноцицептивная система). Локальный и нисходящий контроль боли.
Характеристика антиноцицептивной системы. Функция антиноцицептивной системы заключается в контроле над активностью ноцицептивной системы и предотвращении ее перевозбуждения. Ограничительная функция проявляется увеличением тормозного влияния антиноцицептивной системы на ноцицептивную систему в ответ на нарастающий по силе болевой стимул. Первый уровень представлен комплексом структур среднего, продолговатого и спинного мозга, к которым относятся околоводопроводное серое вещество, ядра шва и ретикулярной формации, а также желатинозная субстанция спинного мозга. Структуры этого уровня объединяются в морфофункциональную «систему нисходящего тормозного контроля». Медиаторами являются серотонин и опиоиды. Второй уровень представлен гипоталамусом, который: 1) оказывает нисходящее тормозное влияние на ноцицептивные структуры спинного мозга; 2) активизирует систему «нисходящего тормозного контроля», т. е. первый уровень антиноцицептивной системы; 3) тормозит таламические ноцицептивные нейроны. Медиаторами этого уровня являются катехоламины, адренергические вещества и опиоиды. Третьим уровнем является кора больших полушарий, а именно II соматотропная зона. Этому уровню отводится ведущая роль в формировании активности других уровней антиноцицептивной системы формирование адекватных реакций на повреждающие факторы.
Механизм деятельности антиноцицептивной системы. Антиноцицептивная система оказывает свое действие посредством: 1) эндогенных опиоидных веществ: эндорфинов, энкефалинов, и динорфинов. Эти вещества, связываются с опиоидными рецепторами, имеющимися во многих тканях организма, особенно в ЦНС. 2) В механизме регуляции болевой чувствительности участвуют и неопиоидные пептиды: нейротензин, ангиотензин II, кальцитонин, бомбезин, холецистокинин, которые оказывают также тормозной эффект на проведение болевой импульсации. 3) В купировании определенных видов боли участвуют и непептидные вещества: серотонин, катехоламины.
Строение и функции вестибулярного аппарата. Характеристика рецепторов вестибулярного аппарата, механизм вестибулорецепии.
Функции вестибулярного анализатора. Организация вестибулярного аппарата.
Функции вестибулярного анализатора:
Пространственная ориентировка
Поддержание позы (равновесия)
Стабилизация взгляда (динамическая острота зрения)
Перераспределение тонуса скелетных мышц
Восприятие информации о ускорении, замедлении, изменении положения головы
!!Рецепторы вестибулярной системы не возбуждаются при:
Равномерном движении
В состоянии покоя
Строение вестибулярного анализатора
Периферический отдел – костный лабиринт пирамиды височной кости. Представлен:
3 полукружных канальца (взаимно перпендикулярное направление)
Отолитовый орган (преддверный орган) – мешочек и маточка
Перепончатый лабиринт (мешочек, маточка, полукружные канальца) – состоят из тонких перепонок, которые образуют замкнутые трубки (внутри эндолимфа)
Перилимфа – между костным и перепончатым лабиринтом
Мешочки преддверия
Функции- восприятие линейных ускорений, наклона головы или всего тела; силы тяжести.
Отолитовый аппарат – располагаются на макулах (возвышение в мешочках), это скопление рецепторных волосков и опорных клеток.
Волоски (цилии) – располагаются на поверхности рецепторных клеток и обращены в полость (просвет) перепончатого лабиринта. Различают:
Киноцилий – самый длинный, 1
Стереоцилий – тонкие, 60-80 шт
Волоски погружены в отолитовую мембрану (отолит – кристаллы карбоната кальция)
При наклоне за счёт силы тяжести отолит смещает мембрану относительно сенсорного эпителия и цилий, они погружаются в неё и сгибаются благодаря скольжению мембраны вдоль них.
Полукружные канальца
Функции – восприятие угловых ускорений
Рецепторные клетки сконцентрированы в ампулах (расширение в конце каждого полукружного канальца) в виде Крист
Купула – желеобразное образование, которое вдается в эндолимфу (в нем нет отолитов; удельный вес равен удельному весу эндолимфы)
Угловое ускорение воспринимается в силу иннервации эндолимфы
Купула сгибается, погружённые в неё Цилии рецепторных клеток оказываются под действием смещения и происходит их адекватное раздражение.
Вестибулярная сенсорная система состоит из следующих отделов:периферический отдел включает два образования, содержащие механорецепторы вестибулярной системы — преддверие (мешочек и маточка) и полукружные каналы;
проводниковый отдел начинается от рецепторов волокнами биполярной клетки (первого нейрона) вестибулярного узла, расположенного в височной кости, другие отростки этих нейронов образуют вестибулярный нерв и вместе со слуховым нервом в составе 8-ой пары черепно-мозговых нервов входят в продолговатый мозг; в вестибулярных ядрах продолговатого мозга находятся вторые нейроны, импульсы от которых поступают к третьим нейронам в таламусе (промежуточный мозг);
корковый отдел представляют четвертые нейроны, часть которых представлена в проекционном (первичном) поле вестибулярной системы в височной области коры, а другая часть — находится в непосредственной близости к пирамидным нейронам моторной области коры и в постцентральной извилине. Точная локализация коркового отдела вестибулярной сенсорной системы у человека в настоящее время не установлена.
Механизм возбуждения вестибулорецепторов.
Преддверие – при прямом положении тела; утрикулюс – горизонтально; саккулюс-вертик
Стимул (наклон)
Смещение мешочков
Сгибание цилия и погружение в отолитовую мембрану
Сгибание киноцилия – решающая роль в генерации импульса
В сторону киноцилия
Усиление импульса
Открытие механоупр. К-каналов
Деполяризация
Генерация РП
Выход кальция и АХ
Постсинаптическая мембрана вестибулярного нерва
Генеративный потенциал
Наоборот, если от киноцилия – уменьшение импульса и гиперполяризация
!!!Волокна вестибулярного нерва – находятся в постоянной активности, смещение киноцилия ведёт к изменению импульсации (частоты раздражения)
Волокна вестибулярного нерва (отростки биполярных нейронов) направляются в продолговатый мозг. Импульсы, приходящие по этим волокнам, активируют нейроны бульбарного вестибулярного комплекса, в состав которого входят ядра: преддверное верхнее, или Бехтерева, преддверное латеральное, или Дейтерса, Швальбе и Роллера. Отсюда сигналы направляются во многие отделы ЦНС: спинной мозг, мозжечок, глазодвигательные ядра, кору большого мозга, ретикулярную формацию и ганглии автономной нервной системы.
Электрические явления в вестибулярной системе.
Даже в полном покое в вестибулярном нерве регистрируется спонтанная импульсация. Частота разрядов в нерве повышается при поворотах головы в одну сторону и тормозится при поворотах в другую (детекция направления движения). Реже частота разрядов повышается или, наоборот, тормозится при любом движении. У 2/з волокон обнаруживают эффект адаптации (уменьшение частоты разрядов) во время длящегося действия углового ускорения. Нейроны вестибулярных ядер обладают способностью реагировать и на изменение положения конечностей, повороты тела, сигналы от внутренних органов, т. е. осуществлять синтез информации, поступающей из разных источников.
Характеристика рецепторов вестибулярного аппарата, механизм вестибулорецепии.
Они также снабжены волосками. При движении эндолимфы (во время угловых ускорений), когда волоски сгибаются в одну сторону, волосковые клетки возбуждаются, а при противоположно направленном движении - тормозятся. В волосковых клетках и преддверия, и ампулы при их сгибании генерируется рецепторный потенциал, который через синапсы (посредством выделения ацетилхолина) передает сигналы о раздражении волосковых клеток окончаниям волокон вестибулярного нерва. Возбуждение волосковых клеток преддверия происходит вследствие скольжения отолитовой мембраны по волоскам, т.е. их сгибания.
Проводниковый и корковый отделы вестибулярной сенсорной системы. Вестибулярные рефлексы, их характеристика. Нистагм глаз.
Проводниковый и корковый отделы вестибулярного анализатора.
Автоматический контроль
I нейрон – генерация ПД , дендриты афферентных биполярных клеток вестибулярного
ганглия (аксон идет к продолговатому мозгу)
II нейрон – вестибулярные ядра продолговатого мозга (ядра Бехтерева, Дейтриса,
Швальбе, Роллера)
III нейрон :
Мозжечок
Ядра глазодвигательного нерва
Tr.vestibulospinalis к мотонейронам мышц разгибателей
К ретикулярной формации
Гипоталамусу
Таламическими ядрами
Происходит без участия сознания (поддержание позы и равновесия, рефлексы)
Сознательный анализ
Прямой путь – таламокортикальный (осознание положения тела в пространстве, восприятие перемещений)
Первый и второй нейрон – как и в авт.контроле
III нейрон – таламус (дорсо-медиальная часть вентрального постлатерального ядра)
IV нейрон – задняя постцентральная извилина
Непрямой путь – вестибуло-церебелло-таламический (подержание тонуса мыщц, который связан с оценкой позы тела и схемы тела)
III нейрон – мозжечок
IV нейрон – таламус (медиальная часть вентрального ядра)
V нейрон – моторная кора спереди от нижней центральной извилины
проводниковый отдел. К рецепторам подходят периферическиеволокна биполярных нейронов вестибулярного ганглия, расположенного во вутреннем слуховом проходе (первый нейрон). Аксоны этих нейронов в составе вестибулярного нерва направляются квестибулярым ядрам продолговатогомозга (второй нейрон). Вестибулярные ядра продолговатого мозга (верхнее—ядро Бехтерева,медиальное—ядро Швальбе,латеральное—ядро Дейтерсаинижнее—ядро Роллера) получают дополнительную информацию по аф- ферентным нейронам от проприорецепторов; мышц или от суставных сочленений шейного отдела позвоночника. Эти ядра, где расположен второй нейрон вестибулярного анализатора, тесносвязаны с различными отделами центральной нервной системы.Благодаря этому обеспечиваются контроль и управление эффекторными реакциями соматического, вегетативного и сенсорного характера.
третий нейронрасположен вядрах зрительного бугра, откуда возбуждение направляется в кору большого полушария.
Центральный отдел вестибулярного анализатора локализуется ввисочной области коры большого мозга, несколько кпереди от слуховой проекционной зоны (21—22-е поля по Бродману, четвертый нейрон).
Нервные волокна, выходящие из вестибулярных ядер, образуют связи с другими отделами центральной нервной важнейшими из них являются следующие: вестибулоспинальные, вестибуловегетативныеивестибулоглазодвигательные. Эти связи обеспечивают контроль и управление различными двигательными реакциями, а также являются основой для рефлексов обеспечивающих равновесие.
а. Вестибулоспинальный тракт, волокна которого в конечном итоге оказывают влияние в основном наγ-мотонейроны мышц-разгибателей, хотя часть волокон оканчивается и наα-мотонейронах.