Материал: Voprosy_s_otvetami_na_ekz_po_fize
· Соответствующая конвергенция при взгляде с близкого расстояния;
· Наличие изейконии;
· Способность к фузии;
· Попадание изображения на корреспондирующие точки сетчатки.
Стимулом к бинокулярной фиксации объекта служит постоянная тенденция зрительной системы к преодолению диплопии, к одиночному видению.
Это свойство глаз уже давно обратило на себя внимание исследователей и вызвало к жизни теорию корреспонденции сетчаток (Muller, 1826; Hering, 1868). Суть ее состоит в том, что одиночное восприятие наблюдаемого объекта возможно только при условии одновременного раздражения центральных ямок сетчаток или точек сетчаток, удаленных от центральных ямок на одинаковое расстояние в одном и том же направлении. Это идентичные, соответственные или корреспондирующие точки сетчаток. Если изображение объекта попадает на неидентичные, несоответственные или диспаратные точки сетчаток, то возникает двоение. Таким образом, ядром теории корреспонденции сетчаток служит положение о наличии в зрительной системе функционально спаренных ретино-кортикальных элементов, представляющих оба глаза.
Свойство корреспонденции сетчаток определяется как особенностями морфологического строения зрительного анализатора, так и различием задач, осуществляемых в едином зрительном акте центральным и нецентральным (периферическим) зрением.
Цветовое зрение. Теории цветоощущения. Виды цветовой слепоты.
Цветовое зрение. Весь видимый нами спектр электромагнитных излучений заключен между коротковолновым (длина волны от 400 нм) излучением, которое мы называем фиолетовым цветом, и длинноволновым излучением (длина волны до 700 нм), называемым красным цветом. Остальные цвета видимого спектра (синий, зеленый, желтый, оранжевый) имеют промежуточные значения длины волны. Смешение лучей всех цветов дает белый цвет. Он может быть получен и при смешении двух так называемых парных дополнительных цветов: красного и синего, желтого и синего. Если произвести смешение трех основных цветов — красного, зеленого и синего, то могут быть получены любые цвета.
Теории цветоощущения. Наибольшим признанием пользуется трехкомпонентная теория (Г. Гельмгольц), согласно которой цветовое восприятие обеспечивается тремя типами колбочек с различной цветовой чувствительностью. Одни из них чувствительны к красному цвету, другие — к зеленому, а третьи — к синему. Всякий цвет оказывает действие на все три цветоощущающих элемента, но в разной степени. Эта теория прямо подтверждена в опытах, где микроспектрофотометром измеряли поглощение излучений с разной длиной волны у одиночных колбочек сетчатки человека.
Согласно другой теории, предложенной Э. Герингом, в колбочках есть вещества, чувствительные к бело-черному, красно-зеленому и желто-синему излучениям. В опытах, где микроэлектродом отводили импульсы ганглиозных клеток сетчатки животных при освещении монохроматическим светом, обнаружили, что разряды большинства нейронов (доминаторов) возникают при действии любого цвета. В других ганглиозных клетках (модуляторах) импульсы возникают при освещении только одним цветом. Выявлено 7 типов модуляторов, оптимально реагирующих на свет с разной длиной волны (от 400 до 600 нм).
В сетчатке и зрительных центрах найдено много так называемых цветооппонентных нейронов. Действие на глаз излучений в какой-то части спектра их возбуждает, а в других частях спектра — тормозит. Считают, что такие нейроны наиболее эффективно кодируют информацию о цвете.
Последовательные цветовые образы. Если долго смотреть на окрашенный предмет, а затем перевести взор на белую бумагу, то тот же предмет виден окрашенным в дополнительный цвет. Причина этого явления в цветовой адаптации, т. е. снижении чувствительности к этому цвету. Поэтому из белого света как бы вычитается тот, который действовал на глаз до этого, и возникает ощущение дополнительного цвета.
Цветовая слепота. Частичная цветовая слепота была описана в конце XVIII в. Д. Дальтоном, который сам ею страдал (поэтому аномалию цветовосприятия назвали дальтонизмом). Дальтонизм встречается у 8 % мужчин и намного реже у женщин: возникновение его связывают с отсутствием определенных генов в половой непарной у мужчин Х-хромосоме. Для диагностики дальтонизма, важной при профессиональном отборе, используют полихроматические таблицы. Люди, страдающие этим заболеванием, не могут быть полноценными водителями транспорта, так как они не могут различать цвет огней светофоров и дорожных знаков. Существует три разновидности частичной цветовой слепоты: протанопия, дейтеранопия и тританопия. Каждая из них характеризуется отсутствием восприятия одного из трех основных цветов.
Люди, страдающие протанопией («краснослепые»), не воспринимают красного цвета, сине-голубые лучи кажутся им бесцветными. Лица, страдающие дейтеранопией («зеленослепые»), не отличают зеленые цвета от темно-красных и голубых. При тританопии — редко встречающейся аномалии цветового зрения, не воспринимаются лучи синего и фиолетового цвета.
Все перечисленные виды частичной цветовой слепоты хорошо объясняются трехкомпонентной теорией цветоощущения. Каждый вид этой слепоты — результат отсутствия одного из трех колбочковых цветовоспринимающих веществ. Встречается и полная цветовая слепота — ахромазия, при которой в результате поражения колбочкового аппарата сетчатки человек видит все предметы лишь в разных оттенках серого
Острота зрения, поле зрения. Методы определения остроты и полей зрения.
Острота зрения.
Остротой зрения называется максимальная способность глаза различать отдельные детали объектов.
Остроту зрения определяют по наименьшему расстоянию между двумя точками, которые глаз различает, т. е. видит отдельно, а не слитно. Нормальный глаз различает две точки, видимые под углом в 1'. Максимальную остроту зрения имеет желтое пятно. К периферии от него острота зрения намного ниже (рис. 14.11). Острота зрения измеряется при помощи специальных таблиц, которые состоят из нескольких рядов букв или незамкнутых окружностей различной величины. Острота зрения, определенная по таблице, выражается обычно в относительных величинах, причем нормальная острота принимается за единицу. Встречаются люди, обладающие сверхостротой зрения (visus более 2).
Методика исследования остроты зрения следующая. Пациент сидит лицом к таблице (экрану) на расстоянии 5 метров от него. Один глаз прикрыт непрозрачным щитком или ладонью. Пациенту показывают и просят назвать знаки, соответствующие остроте зрения 1,0. Если он все их называет верно, то показывают более мелкие знаки. Так продолжают до тех пор, пока обследуемый не начнет ошибаться. Если пациент ошибался уже в знаках соответствующих остроте зрения 1,0, то показывают более крупные знаки, следующие за ними.
Остроту зрения оценивают по ряду, в котором пациент, правильно называет все знаки. При исследовании по таблицам допускается 1 ошибка в VII-X строчках. При использовании проекторов знаков расстояние до экрана можно варьировать от 3 до 6 метров, а пациент находится рядом с прибором, и ошибок в ответах не допускается.
Таким образом, можно проверить остроту зрения от 0,1 до 1,0-2,0.
Например: Vis OD = 0,7
Vis OS = 1,0.
Исследование остроты зрения ниже 0,1 проводится разными способами в зависимости от снижения зрительных функций:
1. Определение расстояния, с которого пациент читает оптотипы I ряда. Попросить пациента подойти к таблице и определить расстояние, с которого он видит первую строчку. Рассчитать Vis по формуле Снеллена-Дондерса
 ,
где  -
расстояние, с которого пациент видит
первую строчку,
 -
50 м, т.е. расстояние, с которого оптотипы
первой строчки видны под углом зрения
в 1 минуту.
2. Проверка способности считать пальцы. Пациенту демонстрируют пальцы на темном фоне (толщина пальцев приравнивается к толщине оптотипов первого ряда) и определяют расстояние, с которого он правильно их считает. Vis рассчитывают по формуле Снеллена-Дондерса.
3. Определение остроты зрения, используя оптотипы Поляка (при Vis=0,09–0,01). Они представляют собой набор кольцевых и линейных оптотипов (рис.25). Их показывают пациенту с разных расстояний, обозначенных под каждым тестом, и просят назвать направление линий или разрыва кольца. Каждому расстоянию соответствует определенная острота зрения.
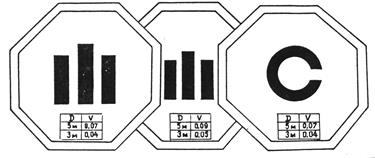
Рис. 25. Оптотипы Б.Л.Поляка для измерения остроты зрения ниже 0,1
4. При Vis<0,005 (т.е. счет пальцев с расстояния ближе 25 см) указывают расстояние, с которого пациент может правильно сосчитать пальцы.
Например: Vis = счет пальцев с 5 см.
5. Исследование способности различать направленное движение ладони у самого лица (в вертикальном и горизонтальном направлении). В случае, если направление движения определено верно: Vis=движению руки у лица.
6. При отсутствии предметного зрения, проверяют светопроек-цию при помощи направления пучка света от офтальмоскопа в зрачок пациента с четырех сторон.
При правильном определении пациентом всех четырех направлений:

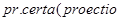
 ,
т.е. острота зрения равна светоощущению
с правильной проекцией света.
При неправильном определении пациентом хотя бы одного направления:
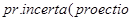
 ,
т.е. острота зрения равна светоощущению
с неправильной проекцией света.
Если
пациент света не видит:  .
К объективным методам исследования остроты зрения относятся нистагмовизометрия, электро-энцефалографический и условно-рефлекторный методы. Их обычно применяют в экспертных случаях при нежелании пациента правильно оценивать свои ощущения (симуляция), в раннем детском возрасте, при психических заболеваниях.
Нистагмовизометрия – метод, основанный на регистрации непроизвольных ритмических движений глазного яблока, т.е. нистагма. Оптокинетический нистагм (ОКН) возникает при наблюдении ряда однородных объектов, быстро перемещающихся в поле зрения. Он может быть вызван у всех людей за исключением тех случаев, когда острота зрения резко снижена, отмечается сужение поля зрения, а также при заболеваниях центральной нервной системы. Таким образом, ОКН возникает в тех случаях, когда глаз различает отдельно движущиеся предметы. Это и было положено в основу метода нистагмовизометрии.
В настоящее время наиболее широкое применение получил прибор «Малыш».
Он представляет собой прямоугольный корпус с экраном 10х10 см. Тест-объекты – движущиеся в горизонтальном или вертикальном направлении чередующиеся светлые и темные полосы разной ширины (от 2 до 50 мм). Пациент может находиться от экрана на расстоянии от 0,5 до 3,3 метра.
Исследование начинают с минимальной ширины полосы (2 мм) и максимального расстояния (3,3 м). Если у пациента ОКН отсутствует, увеличивают ширину полосы и, в случае необходимости, уменьшают расстояние. При появлении ОКН снимают на цифровом табло показания остроты зрения, которые рассчитаны на основании данных ширины полосы и расстояния до экрана. Этот метод можно применять при остроте зрения 0,01-1,0.
Электро-энцефалографический метод основан на изменении биопотенциалов (a-ритма) в затылочных долях человеческого мозга. В ситуациях, когда человек не фиксирует взгляд, отмечаются высокие пики a-ритма, при появлении фиксации они снижаются.
Перед началом исследования пациента просят смотреть на световой фон без знаков и начинают запись фоновой электро-энцефалограммы (ЭЭГ) от затылочных долей головного мозга. Затем на этом фоне показывают тесты определенной величины. Если пациент видит знаки, то биопотенциалы меняют свой характер, что отражается на ЭЭГ. На основании этих данных определяют остроту зрения.
Поле зрения.
Если фиксировать взглядом небольшой предмет, то его изображение проецируется на желтое пятно сетчатки. В этом случае мы видим предмет центральным зрением. Его угловой размер у человека 1,5—2°. Предметы, изображения которых падают на остальные места сетчатки, воспринимаются периферическим зрением. Пространство, видимое глазом при фиксации взгляда в одной точке, называется полем зрения. Измерение границы поля зрения производят периметром. Границы поля зрения для бесцветных предметов составляют книзу 70°, кверху — 60°, внутрь — 60° и кнаружи — 90°. Поля зрения обоих глаз у человека частично совпадают, что имеет большое значение для восприятия глубины пространства. Поля зрения для различных цветов неодинаковы и меньше, чем для черно-белых объектов.
Поле зрения измеряется в градусах, в норме его границы имеют следующие значения:
кверху – 55 градусов;
кнаружи – 90 градусов;
книзу – 65 градусов;
кнутри – 60 градусов.
Стоит отметить, что отличие на 5-10 градусов от данных значений принято считать нормой.
Два метода оценки поля зрения:
периметрия;
кампиметрия.
Контрольный способ
Это наиболее простой и достаточно неточный метод, с помощью которого выявляются сильные нарушения. Доктор (с заранее известным полем зрения, которое должно иметь нормальные границы) и пациент усаживаются друг напротив друга на расстоянии около полуметра. Врач закрывает правый глаз, исследуемый – левый (для исследования правого глаза пациента).
Затем доктор посередине между ним и пациентом проводит пальцем или белым предметом (например, карандашом) от периферии к центру. Когда больной начинает видеть объект, он говорит «да», когда предмет исчезает из поля видения, он говорит «нет».
Исследование можно проводить в четырех направлениях (медиальном, латеральном, верхнем и нижнем), но чаще проводят в восьми (четыре основные и 4 косые направления).
Если границы периферического зрения совпадают с таковыми врача, то они имеют нормальные значения. Этот метод называется контрольным, т.к. зрение врача является контролем зрения пациента.
Основным недостатком данного способа оценки периферического зрения является его неточность. Границы поля зрения приблизительны и не выражаются числовыми значениями. Такой метод наиболее часто применяется у лежачих пациентов, когда затруднительно использование различных приборов.
Инструментальный способ
Для более точного определения границ периферического зрения можно пользоваться специальными приборами – периметрами (для определения границ поля зрения на шарообразной поверхности) и кампиметрами (для исследования центрального участка поля зрения – проводится на плоскостной поверхности).
Наиболее популярны периметры Ферстера, сферические и проекционные периметры. В настоящее время большая роль принадлежит компьютерным периметрам.
Морфофункциональная организация спинного мозга. Нейронная организация сегментов спинного мозга. Функции задних и передних корешков сегментов спинного мозга. Закон Белла-Мажанди.
Морфофункциональная организация спинного мозга
Спинной мозг – наиболее древний отдел ЦНС позвоночных. Он уже есть у ланцетника, наиболее примитивного представителя хордовых.
Спинной мозг – каудальный отдел ЦНС. Он помещается в позвоночном канале и имеет неодинаковую длину у разных представителей позвоночных.
У человека в каудальном отделе позвоночного канала собираются корешки каудальных отделов спинного мозга, образуя так называемый конский хвост.
Спинной мозг характеризуется сегментарным строением. В спинном мозге выделяют шейный, грудной, поясничный, крестцовый и копчиковый отделы. Каждый отдел состоит из нескольких сегментов. Шейный отдел включает 8 сегментов (С1 – С8), грудной – 12 (Th1 – Th12), поясничный – 5 (L1 – L5), крестцовый – 5 (S1 – S5) и копчиковый – 1-3 (Со1 – Co3). От каждого сегмента отходят две пары корешков, которые соответствуют одному из позвонков и покидают позвоночный канал через отверстие между ними.
Различают дорсальные (задние) и вентральные (передние) корешки. Дорсальные корешки образованы центральными аксонами первичных афферентных нейронов, тела которых лежат в спинномозговых ганглиях. Вентральные корешки сформированы аксонами α- и γ-мотонейронов и немиелинизированными волокнами нейронов вегетативной нервной системы.
Нейронная организация сегментов спинного мозга
Нейроны спинного мозга образуют его серое вещество в виде симметрично расположенных двух передних и двух задних рогов в шейном, поясничном и крестцовом отделах. Серое вещество распределено на ядра, вытянутые по длине спинного мозга. В грудном отделе спинной мозг имеет, помимо названных, еще и боковые рога
Спинной мозг человека содержит около 13 млн. нейронов, из них 3% — мотонейроны, а 97% — вставочные. Функционально нейроны спинного мозга можно разделить на 4 основные группы:
1) мотонейроны, или двигательные, — клетки передних рогов, аксоны которых образуют передние корешки;
2) интернейроны — нейроны, получающие информацию от спинальных ганглиев и располагающиеся в задних рогах. Эти нейроны реагируют на болевые, температурные, тактильные, вибрационные, проприоцептивные раздражения;
3) симпатические, парасимпатические нейроны расположены преимущественно в боковых рогах. Аксоны этих нейронов выходят из спинного мозга в составе передних корешков;
4) ассоциативные клетки — нейроны собственного аппарата спинного мозга, устанавливающие связи внутри и между сегментами.
Мотонейроны. Аксон мотонейрона своими терминалами иннервирует сотни мышечных волокон, образуя мотонейронную единицу. Чем меньше мышечных волокон иннервирует один аксон (т. е. чем меньше количественно мотонейронная единица), тем более дифференцированные, точные движения выполняет мышца.
Несколько мотонейронов могут иннервировать одну мышцу, в этом случае они образуют так называемый мотонейронный пул. Возбудимость мотонейронов одного пула различна, поэтому при разной интенсивности раздражения в сокращение вовлекается разное количество волокон одной мышцы. При оптимальной силе раздражения сокращаются все волокна данной мышцы; в этом случае развивается максимальное сокращение мышцы.
Интернейроны. Эти промежуточные нейроны, генерирующие импульсы с частотй до 1000 в секунду, являются фоновоактивными и имеют на своих дендритах до 500 синапсов. Функция интернейронов заключается в организации связей между структурами спинного мозга и обеспечении влияния восходящих и нисходящих путей на клетки отдельных сегментов спинного мозга. Очень важной функцией интернейронов является торможение активности нейронов, что обеспечивает сохранение направленности пути возбуждения. Возбуждение интернейронов, связанных с моторными клетками, оказывает тормозящее влияние на мышцы-антагонисты.
Нейроны симпатического отдела автономной системы. Расположены в боковых рогах сегментов грудного отдела спинного мозга. Эти нейроны являются фоновоактивными, но имеют редкую частоту импульсации (3—5 в секунду).
Нейроны парасимпатического отдела автономной системы. Локализуются в сакральном отделе спинного мозга и являются фоновоактивными.
Задние корешки образуют чувствительные афферентные пути спинного мозга, а передние — двигательные эфферентные пути (рис. 1А). Такое расположение афферентных и эфферентных волокон было установлено еще в начале XX в. и получило название закона Белла-Мажанди, причем количество афферентных волокон больше количества двигательных волокон.